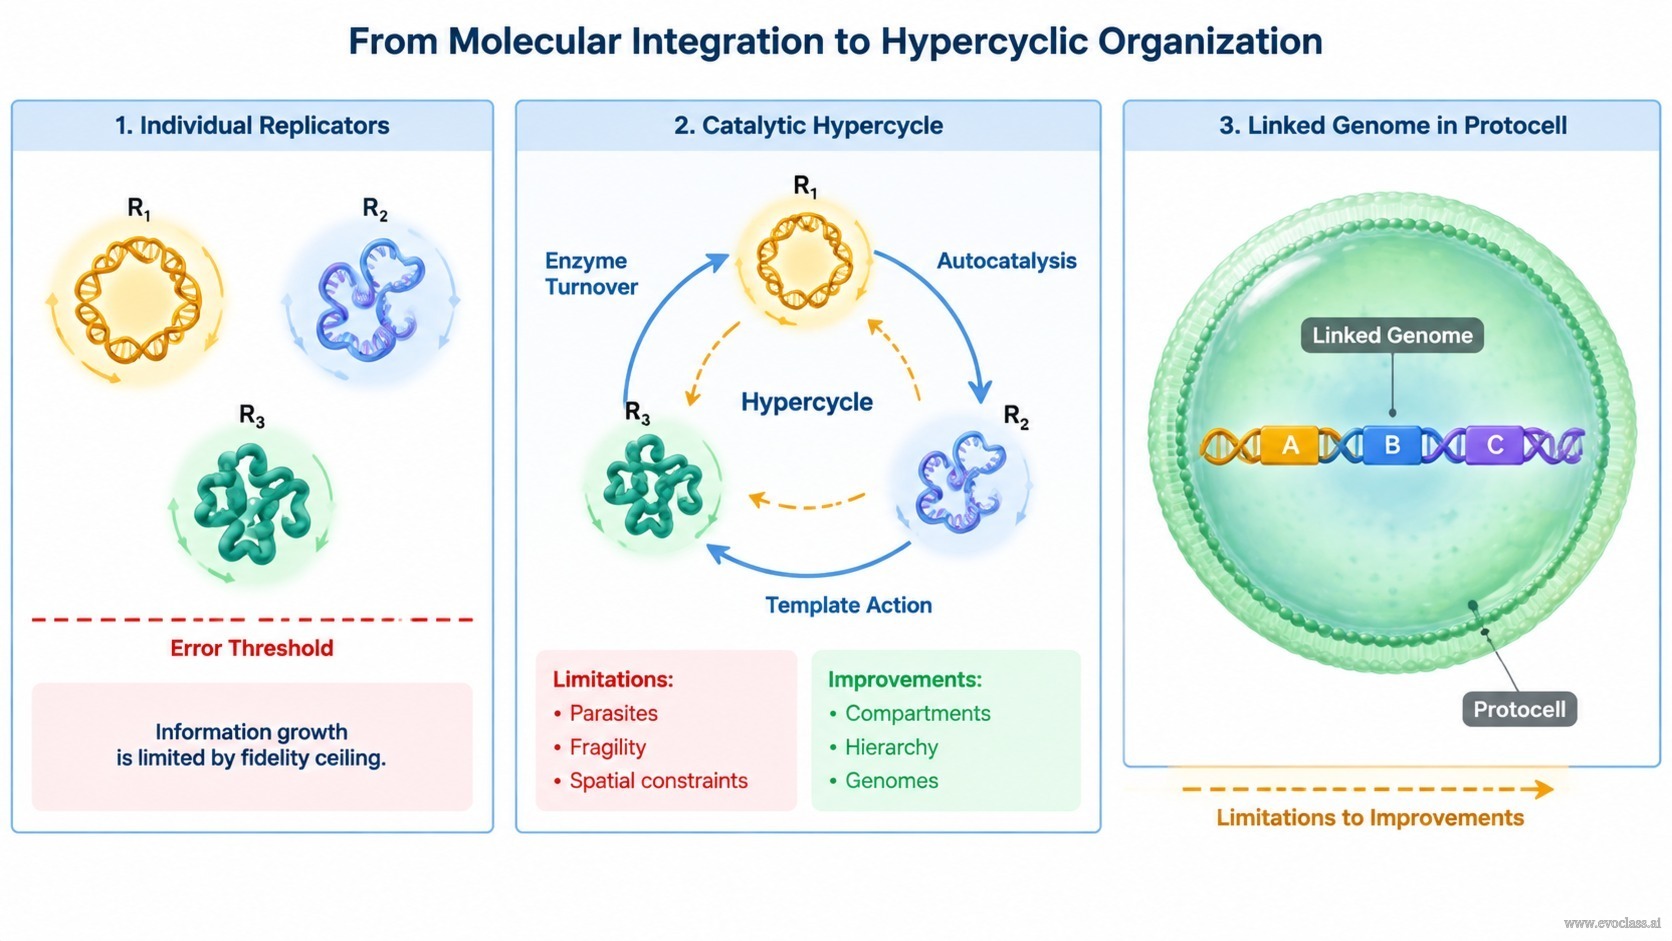
La diapositiva captura una transición decisiva en la evolución molecular temprana: cuando una unidad autorreplicativa ya no puede portar suficiente información, la selección puede favorecer la integración de varias entidades autorreplicativas. La razón es el umbral de error. La fidelidad de copia de un replicador establece un límite superior en la longitud de una secuencia que puede mantenerse frente al deterioro mutacional. Más allá de ese límite, producir más información en una sola unidad resulta contraproducente, porque la mayoría de las copias son erróneas y la secuencia maestra se pierde.
La organización hipercíclica resuelve esta restricción acoplando múltiples unidades autorreplicativas en una red catalítica cerrada y cooperativa. En esta red, cada unidad apoya la replicación de las demás mediante ciclos catalíticos, autocatálisis, acción de plantilla y renovación enzimática. El colectivo, y no una molécula individual, se convierte en la unidad de selección. Por lo tanto, la integración funcional no requiere que los genes estén físicamente ligados al principio; solo requiere que sus productos catalíticos retroalimenten la replicación de los miembros de la red.
Por qué el acoplamiento funcional es lo primero
Antes de que los genomas existan como estructuras ligadas, la selección puede actuar sobre un conjunto de replicadores que cooperan catalíticamente. Un hiperciclo convierte a competidores independientes en una red cooperativa que puede mantener más información colectiva que cualquier miembro por sí solo. Esto también puede ofrecer una ruta hacia las primeras funciones relacionadas con la traducción, porque varias unidades similares al ARN pueden aportar distintos roles catalíticos o de codificación sin que ninguna unidad supere su límite de fidelidad.
De la integración funcional a la estructural
A medida que los genomas evolucionan, el acoplamiento funcional puede ser reemplazado por la integración estructural completa de los genes. Incluso las células conocidas más primitivas tienen genomas que son unidades estructurales. La ligadura estructural convierte al conjunto cooperativo en una única entidad heredable, reduce la dependencia del acoplamiento catalítico difusible y puede proteger a los genes cooperantes de perderse o ser explotados por separado.
La lógica del espectro de mutantes
Una pregunta central es por qué usar la organización hipercíclica de muchos genes mutantes individuales en lugar de un único genoma en crecimiento constante. Para un conjunto de 100 genes, el número de mutantes con k errores es
Limitaciones y mejoras
La organización hipercíclica no es una solución final. Puede ser indirecta, dinámicamente frágil, vulnerable a replicadores parásitos o egoístas, y depender de restricciones espaciales o compartimentales. Las mejoras incluyen la compartimentación, los hiperciclos jerárquicos y la eventual formación de genomas estructurales. Estos cambios estabilizan la cooperación y reducen la dependencia del acoplamiento catalítico difusible.
Conclusión: El hiperciclo es un principio intermedio de autoorganización natural: enlaza unidades autorreplicativas mediante la cooperación catalítica para que un colectivo pueda mantener información más allá del límite de cualquier replicador individual, y prepara el camino para genomas estructuralmente integrados.
De la integración molecular a la organización hipercíclicaLa etapa 1 muestra unidades autorreplicativas individuales limitadas por un techo de fidelidad; la etapa 2 muestra ciclos catalíticos, autocatálisis, acción de plantilla y renovación enzimática formando una red hipercíclica cerrada; la etapa 3 muestra el acoplamiento funcional reemplazado por un genoma estructuralmente ligado en una protocélula, con una flecha ámbar discontinua que marca las limitaciones y las mejoras estabilizadoras.