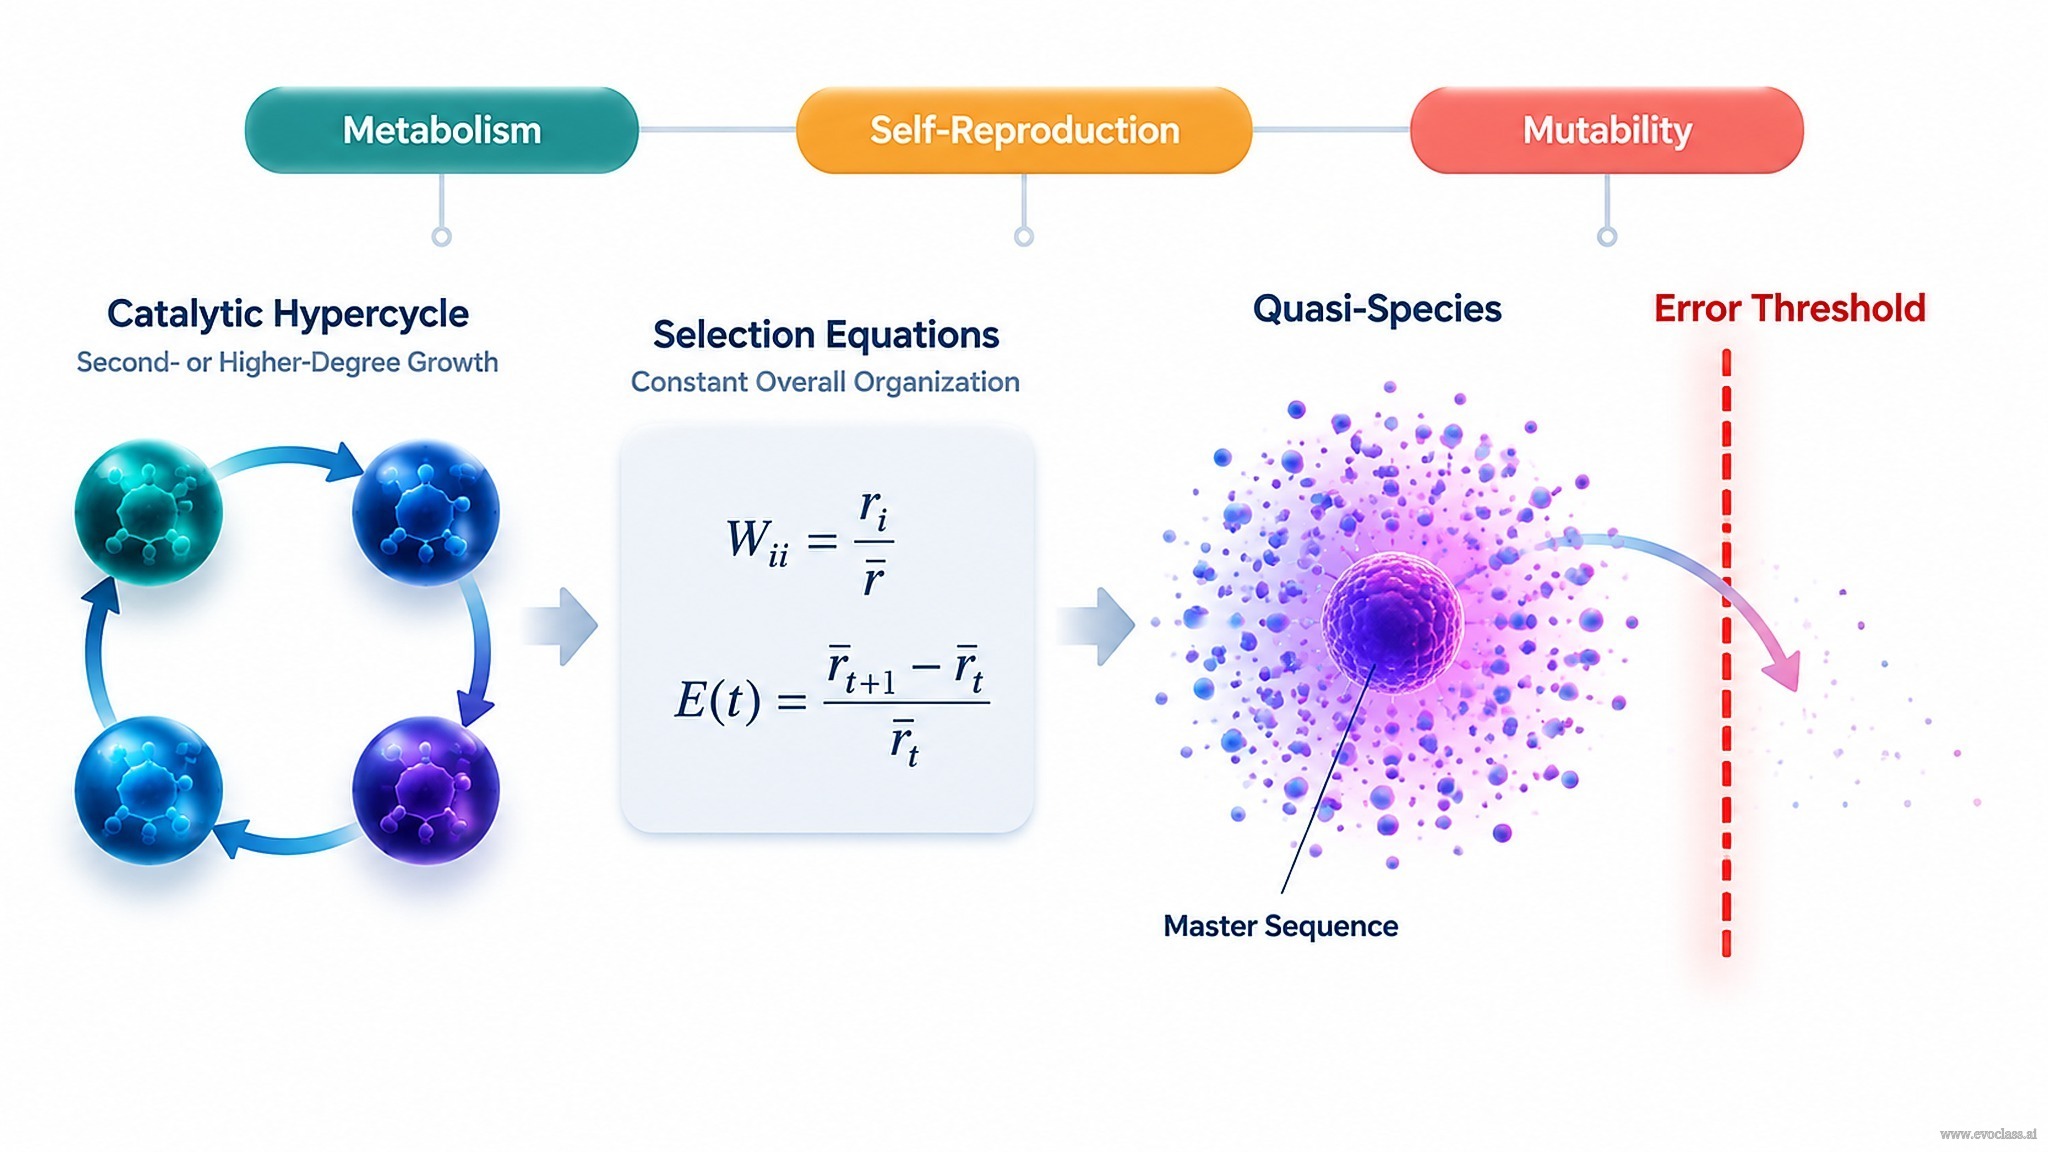
Esta lección se abre con una pregunta central para la teoría del origen de la vida: ¿cómo puede un conjunto de moléculas autorreplicativas generar selección molecular sin maquinaria celular preexistente? La respuesta que se desarrolla aquí es el hiperciclo catalítico: un encadenamiento cíclico de unidades autorreplicativas en el que la replicación de cada unidad recibe apoyo catalítico de otro miembro del ciclo. El resultado es una autoorganización colectiva, no una colección de replicadores independientes.
Tres organizaciones de crecimiento
- Crecimiento catalítico simple: un catalizador externo promueve la replicación de una plantilla, pero el catalizador no es producido por el mismo bucle. La ley de crecimiento no es autoamplificante.
- Crecimiento autocatalítico: una molécula cataliza su propia replicación o la de sus semejantes. La tasa de crecimiento contiene un término proporcional a la primera potencia de la concentración del replicador: autoamplificación de primer grado.
- Crecimiento hipercíclico: la replicación se organiza como un ciclo cerrado A → B → C → ... → A. Dado que cada miembro se produce bajo la catálisis de otro miembro, el crecimiento global depende de productos de al menos dos concentraciones. Por eso los hiperciclos catalíticos son sistemas de segundo grado o superior.
La distinción importa porque solo la organización hipercíclica acopla la autorreplicación a una dinámica colectiva y no lineal capaz de sustentar la selección a nivel molecular.
Requisitos darwinianos
Para que ocurra la selección molecular, deben cumplirse tres condiciones:
- Metabolismo: una fuente de energía libre y material para mantener el estado organizado fuera del equilibrio.
- Autorreproducción: la capacidad de las unidades de multiplicarse, de modo que las variantes ventajosas puedan aumentar en número.
- Mutabilidad: variación heredable, sin la cual no hay sustrato para la selección.
Estos tres requisitos son condiciones límite: por sí solos no especifican la dinámica cuantitativa, pero definen el dominio en el que una descripción darwiniana tiene sentido.
Ecuaciones de selección bajo organización global constante
Cuando la concentración total de replicadores se mantiene constante, las frecuencias
Aquí Wii es el valor selectivo del tipo de replicador i, que incorpora sus tasas de replicación y degradación. E(t) es el productividad excedente media, la media ponderada por la población de los valores selectivos. Un tipo aumenta en frecuencia cuando su W_ii supera a E(t) y disminuye cuando cae por debajo de E(t). La condición de organización constante convierte la selección en una comparación relativa en lugar de una carrera de crecimiento absoluto.
Equilibrio mutación-selección y las cuasiespecies
La replicación real es propensa a errores. El equilibrio mutación-selección no produce una única secuencia de tipo silvestre dominante; en su lugar genera una cuasiespecie, una distribución organizada de secuencias mutantes centrada en una secuencia maestra. El tipo silvestre es, por tanto, el miembro más probable de una nube de secuencias relacionadas, no el único objetivo de la selección. La distribución es estable cuando la ventaja selectiva de la secuencia maestra equilibra el flujo mutacional que se aleja de ella.
El umbral de error
La cuasiespecie solo puede persistir si la tasa de mutación por replicación es lo suficientemente baja. Más allá del umbral de error, la secuencia maestra no puede transmitir su información de forma fiable, la nube de mutantes se deslocaliza y la distribución organizada colapsa hacia un estado aleatorizado por mutaciones. Esto limita la cantidad de información que un hiperciclo o una cuasiespecie pueden mantener de forma reproducible. La hoja de ruta inicial —ciclo catalítico → ecuaciones de selección → cuasiespecies → umbral de error— vincula así la autoorganización molecular con el techo informativo fundamental de la evolución darwiniana a nivel molecular.
Hoja de ruta del hiperciclo catalíticoUn hiperciclo catalítico cerrado conduce a las ecuaciones de selección con el valor selectivo Wᵢᵢ y la productividad excedente media E(t), y después a la nube de cuasiespecies y a la barrera del umbral de error. Los tres requisitos darwinianos —metabolismo, autorreproducción y mutabilidad— enmarcan la transición de la autoorganización molecular a la selección molecular.