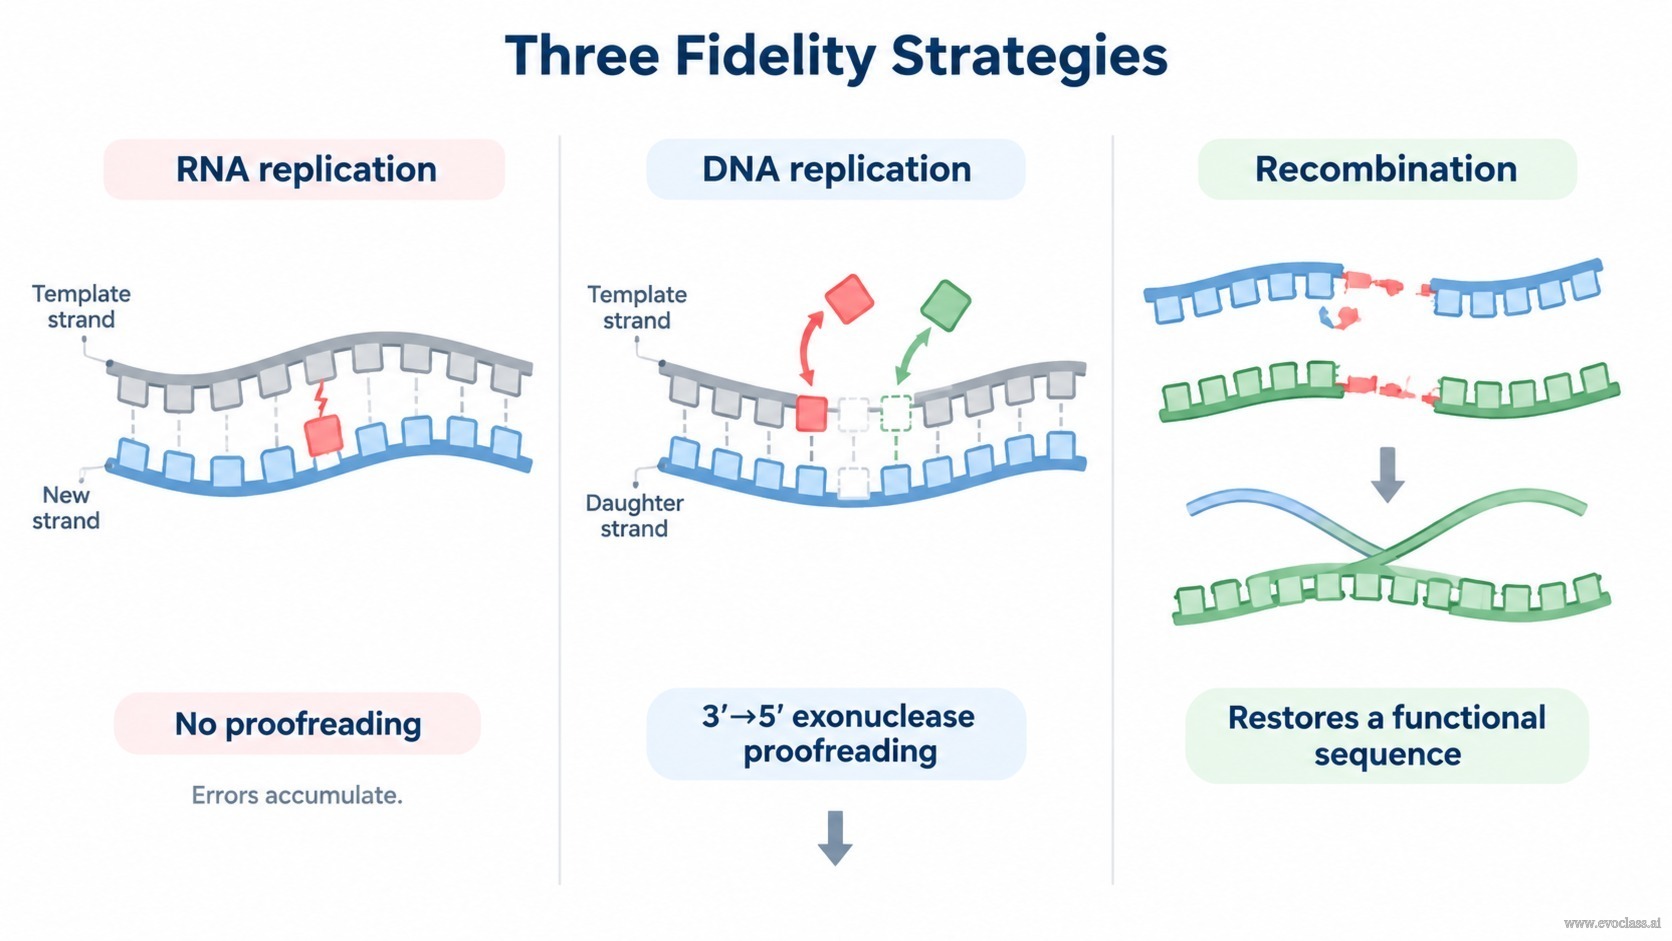
Tres estrategias distintas determinan cuánta información puede conservar un replicador: la fidelidad intrínseca de la replicación del ARN, la corrección de pruebas por exonucleasa que añade la replicación del ADN y la recombinación, que edita la información a nivel de moldes y poblaciones en lugar de pares de bases individuales. En conjunto, establecen la tasa de mutación efectiva —y, por tanto, dónde se sitúa el umbral de error y cuán estable puede mantenerse una cuasi especie.
Replicación del ARN: copia rápida sin corrección de pruebas
Las ARN replicasas generalmente extienden una cadena en crecimiento sin un dominio de exonucleasa 3′→5′. Por tanto, un nucleótido mal incorporado no se reconoce ni se elimina: la replicación es un único paso de síntesis sin edición, y el error se transmite a la cadena hija. El resultado es una alta tasa de error por base, del orden de un error por cada 10⁴ bases copiadas. Dado que la fracción de descendencia libre de errores decae a medida que crece la longitud del genoma, los genomas largos no pueden mantenerse, por lo que los genomas de ARN permanecen compactos y cerca del umbral de error. Los experimentos de mutagénesis del fago Qβ ilustran este régimen: en lugar de una única secuencia silvestre definida, la población aparece como una amplia nube de mutantes distribuida alrededor de una secuencia maestra.
Replicación del ADN: la corrección de pruebas permite ganar longitud de genoma
Las ADN polimerasas suelen portar una actividad de exonucleasa 3′→5′ que inspecciona el extremo 3′ recién añadido. Al detectar un apareamiento incorrecto, la enzima invierte la dirección e hidroliza el nucleótido incorrecto antes de que se reanude la extensión, de modo que el error se elimina y se inserta la base correcta. La corrección de pruebas superpuesta a la selectividad del apareamiento de bases reduce la tasa de error en dos o tres órdenes de magnitud. En términos del umbral de error, una mayor precisión por base q eleva el genoma más grande que la selección puede mantener: con νmax ≈ ln σm ⁄ (1 − q), una tasa de error menor (1 − q) relaja la restricción y permite genomas más grandes con herencia estable. Los mutantes de exonucleasa de la ADN polimerasa, que pierden la corrección de pruebas, muestran exactamente el aumento previsto de la tasa de mutación y un tamaño de genoma efectivo reducido.
Recombinación: reparación y reordenamiento a nivel de molde
La recombinación no mejora el apareamiento de bases en el sitio activo de la polimerasa. Actúa sobre los moldes y las poblaciones. La recombinación homóloga puede reconstruir una secuencia intacta a partir de dos moldes dañados de forma distinta; el cambio de molde puede rescatar una copia estancada o cargada de errores; y el reordenamiento puede combinar variantes beneficiosas en un mismo fondo mientras purga las deletéreas. Su beneficio depende de la coinfección, la homología disponible y la intensidad de la selección, por lo que, desde el punto de vista de las cuasi especies, la recombinación modifica la carga mutacional efectiva y el equilibrio mutación-selección a nivel poblacional, en lugar de la tasa de error por base en sí misma.
Umbral de error y consecuencias para las cuasi especies
La alta tasa de error del ARN restringe νmax y mantiene las poblaciones cerca del umbral de error; la corrección de pruebas del ADN reduce la tasa de error y relaja esa restricción; la recombinación puede disminuir la carga mutacional efectiva o regenerar secuencias aptas, desplazando la distribución de variantes sobre las que actúa la selección. El principio comparativo se deduce directamente: la fidelidad del ARN favorece la variación rápida y la información compacta, la corrección de pruebas del ADN favorece la expansión del genoma y la herencia estable, y la recombinación favorece la reparación a nivel poblacional y la innovación modular. Son estrategias complementarias, no mutuamente excluyentes, y los replicadores reales las combinan en distintos grados.
Principio comparativo. Fidelidad del ARN: variación rápida, genomas compactos, alta carga de error. Corrección de pruebas del ADN: tasa de error uno o varios órdenes de magnitud menor, νmax elevado, genomas grandes heredados de forma estable. Recombinación: sin cambios en la precisión del apareamiento de bases, pero con reparación a nivel poblacional, reordenamiento y purga de variantes deletéreas.
Tres estrategias de fidelidadIzquierda: la replicación del ARN inserta una base mal apareada y, al carecer de corrección de pruebas, la deja en la cadena hija, por lo que la tasa de error por base se mantiene alta. Centro: la exonucleasa 3′→5′ de una ADN polimerasa escinde el nucleótido 3′ mal apareado e inserta el correcto, reduciendo la tasa de error en varios órdenes de magnitud. Derecha: la recombinación une dos moldes dañados de forma distinta para restaurar una secuencia funcional, reparando la información a nivel poblacional en lugar de en un solo par de bases.