Una unidad replicativa temprana se enfrentaba a una dura restricción física. La copia nunca es perfecta, y el umbral de error vincula la cantidad de información que un replicador puede portar con la precisión de su replicación: cuanto más larga es la secuencia, más posiciones quedan expuestas a errores de copia en cada ronda, y más rápido se degrada el mensaje codificado. Por lo tanto, los replicadores tempranos tenían que mantenerse suficientemente pequeños como para copiarse con una fidelidad utilizable, pero a la vez suficientemente estructurados como para portar una función relevante. Las moléculas que satisfacen ambos requisitos a la vez son sorprendentemente modestas en tamaño: del orden del tRNA, aproximadamente 70–90 nucleótidos.
El compromiso entre tamaño y fidelidad
Escribe la condición para mantener una secuencia significativa como q̄m ·
Por qué las moléculas similares al tRNA encajan en la ventana
Un ARN similar al tRNA es pequeño, pero no carece de forma. Se pliega de manera reproducible en una hoja de trébol compacta que se condensa aún más en una estructura estable en forma de L, y puede cargarse con un aminoácido en su extremo 3′. La reproducibilidad del plegamiento es la propiedad decisiva: la misma secuencia siempre produce la misma forma, de modo que una sola molécula puede ser simultáneamente plantilla y objeto funcional. El tamaño pequeño la mantiene por debajo del umbral de error; un plegamiento estable le permite hacer química: reconocimiento, unión, manejo de aminoácidos y asistencia catalítica.
Integración sin ligación
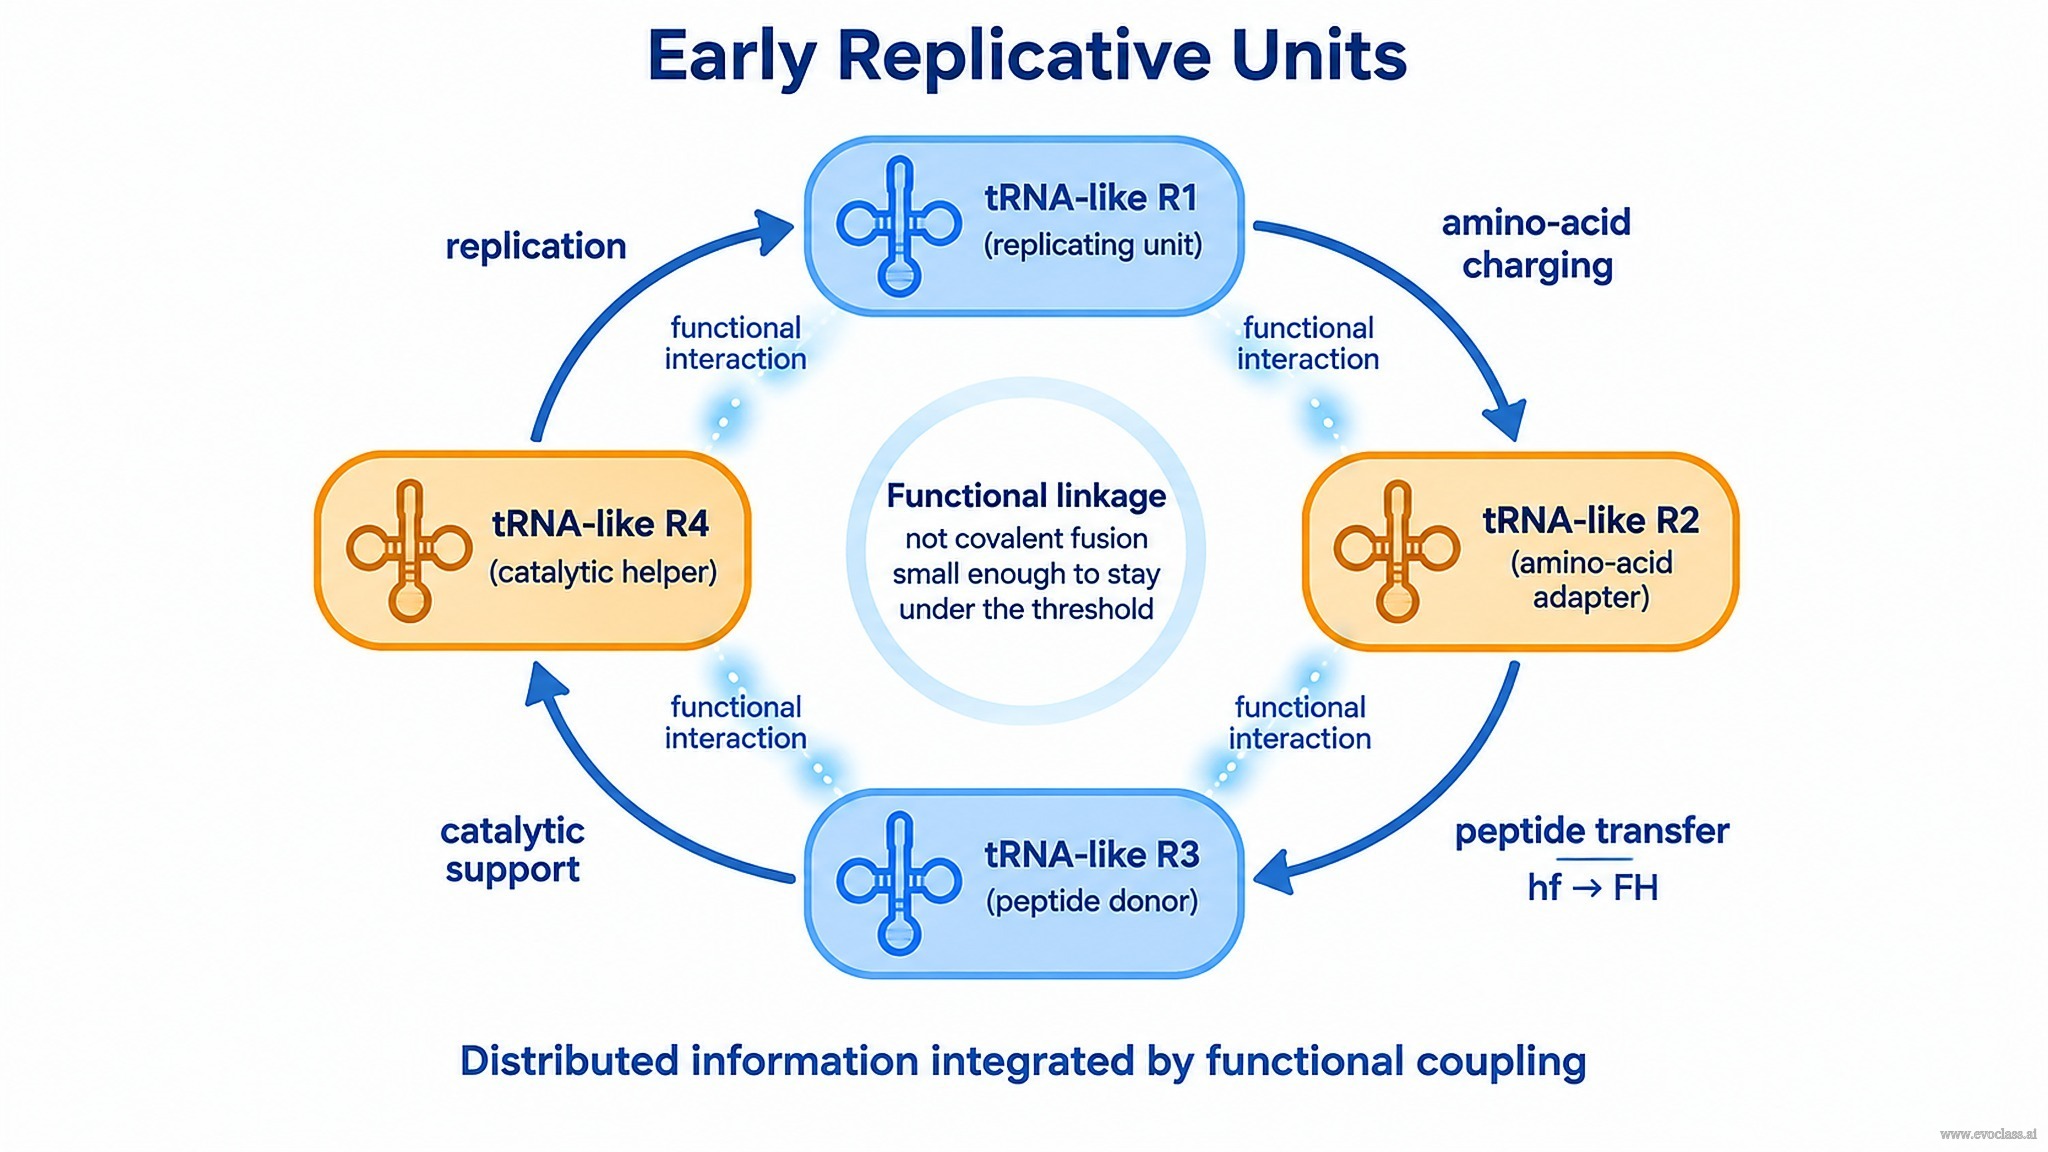
Dividir la información total entre varios replicadores pequeños resuelve el problema del tamaño, pero crea uno nuevo: un conjunto de replicadores independientes es un conjunto de competidores, y gana el más corto o el más rápido. El argumento clave de esta diapositiva es que la integración no requiere unir las moléculas en un único genoma grande. La integración puede ser funcional: el producto de cada molécula —un ARN, un aminoácido, un péptido, una superficie catalítica— se convierte en un recurso para otra molécula. Cuando esas dependencias se cierran en un ciclo, el conjunto se comporta como una unidad cooperativa, y este apoyo mutuo cíclico es la realización más simple de la organización hipercíclica. El acoplamiento funcional, no la fusión covalente, es lo que mantiene intacta la información distribuida.
Las moléculas similares al tRNA como adaptadores para la química peptídica primitiva
Las mismas moléculas proporcionan el puente hacia la síntesis de péptidos. Un ARN similar al tRNA puede actuar como adaptador o mensajero: porta un aminoácido específico y puede transferir ese aminoácido a una cadena peptídica en crecimiento sin ningún aparato sofisticado. Dado que solo hay que manejar un número limitado de aminoácidos suficientemente comunes, y que la especificidad puede residir en la propia secuencia del ARN, una química primitiva similar a la traducción se vuelve concebible utilizando replicadores que ya estaban presentes por otras razones.
El cambio de configuración hf → FH
Que un tRNA dado se encuentre en la configuración hf o en la FH depende de a qué esté unido: un aminoácido o una cadena peptídica. Transferir el aminoácido a la cadena peptídica hace que la molécula pase de hf a FH. El modelo explica bien cómo, en ausencia de un aparato de traducción sofisticado, puede leerse un mensaje: el propio estado del tRNA registra si ha ocurrido el paso de transferencia, lo que da al proceso una dirección que un simple equilibrio químico no proporcionaría.
Conclusión clave: moléculas pequeñas, plegamientos estables y acoplamiento funcional cíclico —no un genoma grande— son lo que permite que la información temprana sobreviva al umbral de error.
Unidades replicativas tempranasCuatro replicadores de ARN similares al tRNA se disponen en un ciclo y se conectan únicamente mediante interacciones funcionales: carga de aminoácidos, transferencia de péptidos (durante la cual el portador pasa de la configuración hf a la FH), apoyo catalítico y replicación. Como las dependencias se cierran sobre sí mismas, el conjunto se comporta como una unidad integrada, de modo que la información distribuida sobrevive sin necesidad de ligarse en un único genoma grande.