8
Límites de la organización hipercíclica y la dinámica de parásitos
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00

La organización hipercíclica puede integrar varias unidades catalíticas en una única red autorreproductora, pero esa integración tiene límites. Bajo una dinámica de acción de masas y organización constante, un hiperciclo enfrenta dos presiones distintas a la vez: parásitos autorreproductores que recogen la catálisis sin devolverla, y la carga mutante combinatoria que crece rápidamente a medida que se alarga el genoma. Juntas, definen un límite central de la organización hipercíclica.

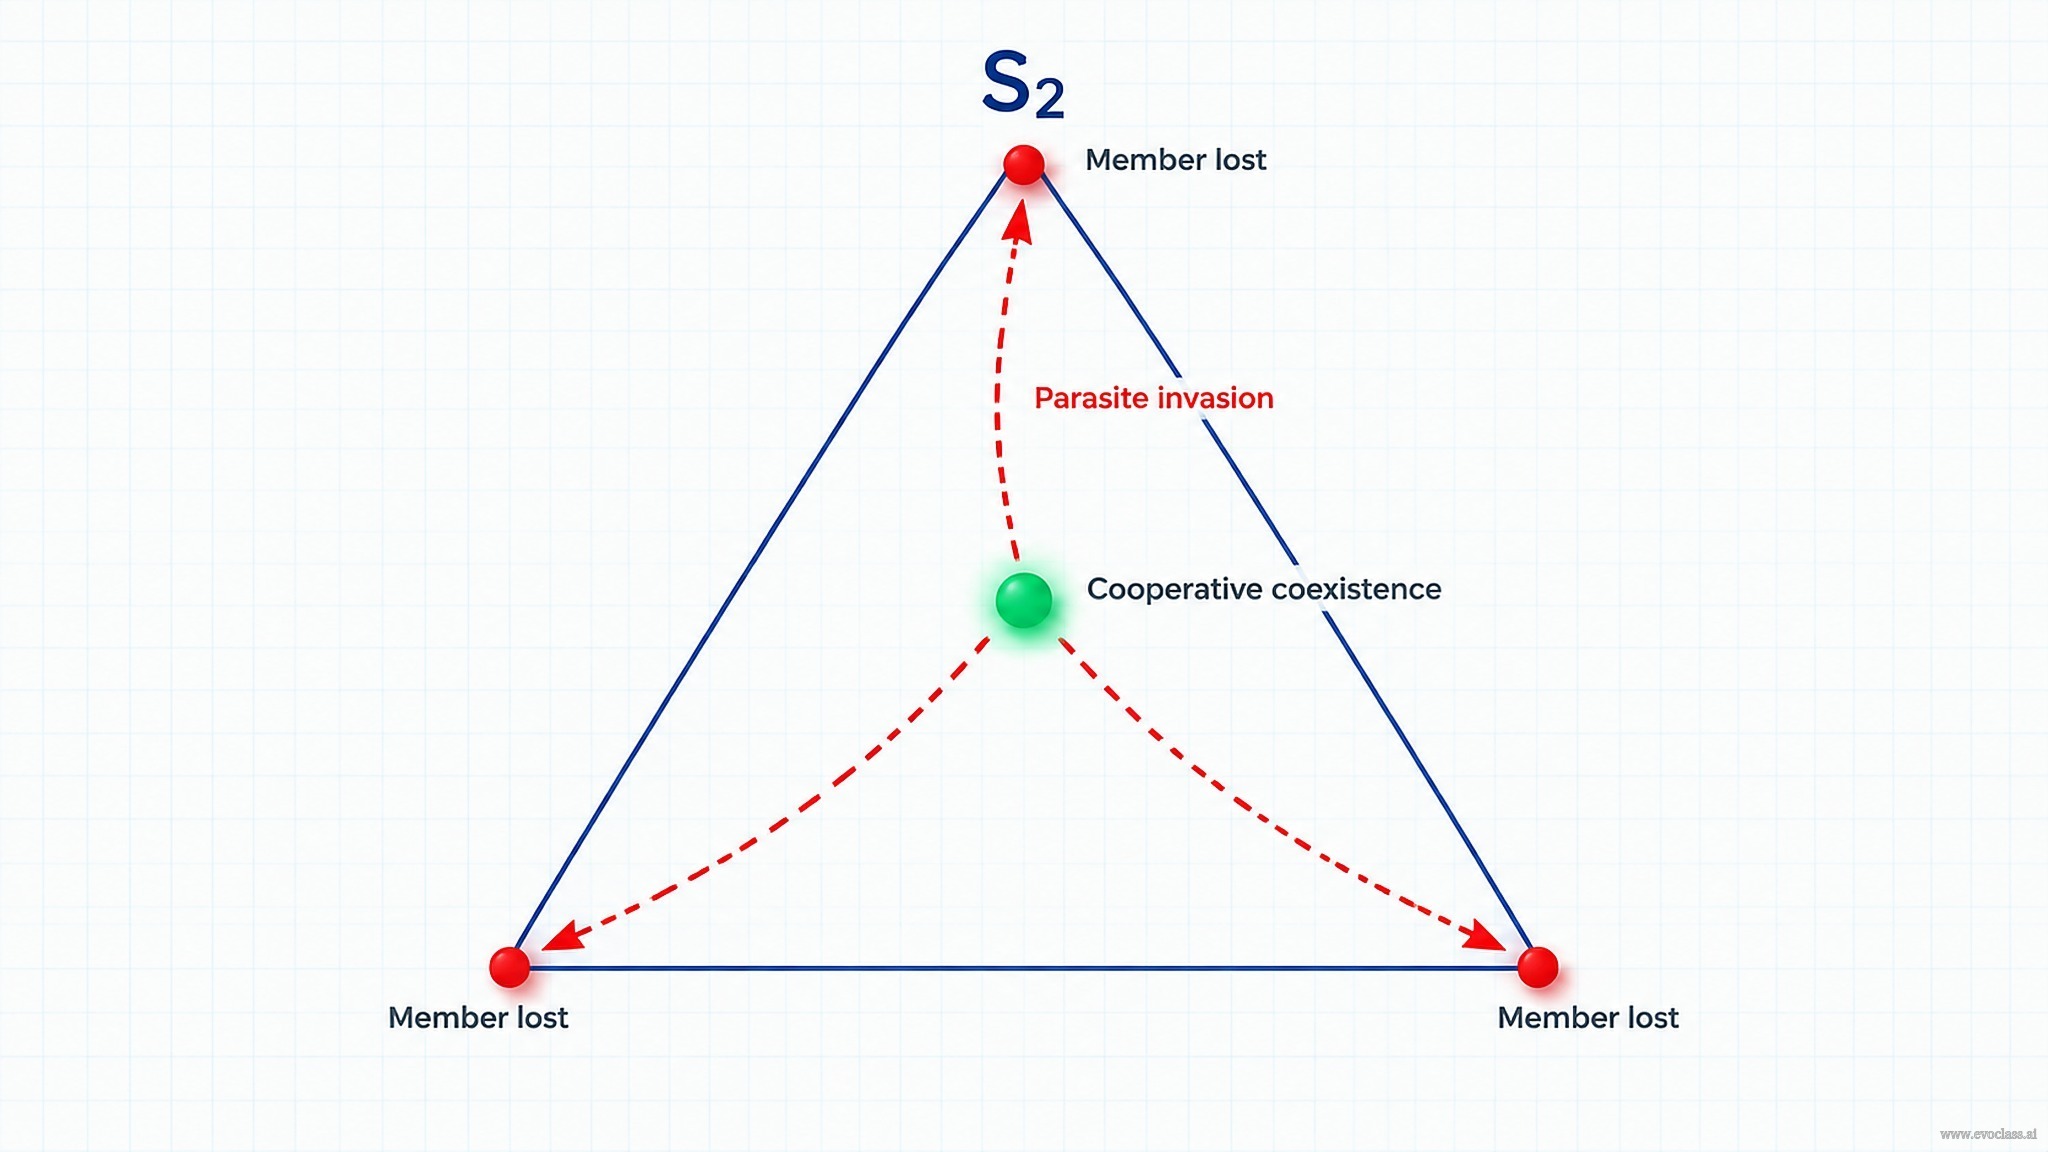
Símplex de concentración S2: coexistencia interior vs. colapso en las esquinasLa invasión de parásitos empuja el interior cooperativo hacia la fronterapunto fijo de esquinaesquina dominada por el parásitoesquina del miembro del ciclointerior: estado cooperativoLeyendaInterior: todos los miembros coexistenEsquina: se pierde un miembroDeriva hacia afuera impulsada por el parásitoUmbral de invasiónẋ > 0 para c0 < k / kAparásito contenidoẋ < 0 para c0 > k / kAmiembro perdido — el parásito invade

Parásitos en el símplex de concentración

Considera un sistema de dos componentes en el que un parásito y un miembro del hiperciclo x comparten una concentración total . El parásito se reproduce autocatalíticamente (constante de velocidad ) y se sostiene gracias a la catálisis que el ciclo le proporciona, mientras que el miembro x se reproduce mediante el acoplamiento . La dinámica de organización constante (T.13.8) es:

El signo de ẋ separa dos regímenes en el umbral : para el miembro crece y el parásito queda contenido; para el miembro decae y el parásito invade. Esta es la formulación cuantitativa de por qué un parásito autorreproductor puede desestabilizar un hiperciclo.

Estados de esquina frente a estados interiores

Un hiperciclo admite puntos fijos en las esquinas del símplex de concentración, cada uno correspondiente a la pérdida de un componente, y un estado interior que representa la coexistencia cooperativa de todos los miembros. El interior es productivo pero frágil: es la región desde la cual la invasión de parásitos puede empujar la trayectoria hacia afuera, hasta la frontera, donde un miembro se pierde de forma permanente.

El crecimiento del genoma es combinatoriamente costoso

Alargar el genoma incrementa abruptamente la carga de mutaciones. Para una secuencia de longitud 100 existen = (100 elegir k) mutantes con k errores: 100 mutantes con un error, 4.950 mutantes con dos errores, 161.700 mutantes con tres errores, y así sucesivamente. Cuando hay n de estos mutantes con n ≪ , el número de sus combinaciones crece como ( elegir n) ≈ ⁿ / n!. Por esto, un genoma único en crecimiento constante resulta desfavorecido frente a la organización hipercíclica de genes mutantes individuales: la cooperación distribuye la función catalítica de modo que ninguna secuencia larga deba absorber toda la carga mutante.

Por qué importa la estructura
Estos límites se derivan bajo los supuestos de selección con mezcla homogénea y organización constante. Sin una estructura espacial o compartimental adicional, los hiperciclos más grandes enfrentan una presión parasitaria y mutacional cada vez mayor, y el estado cooperativo interior no puede mantenerse indefinidamente.