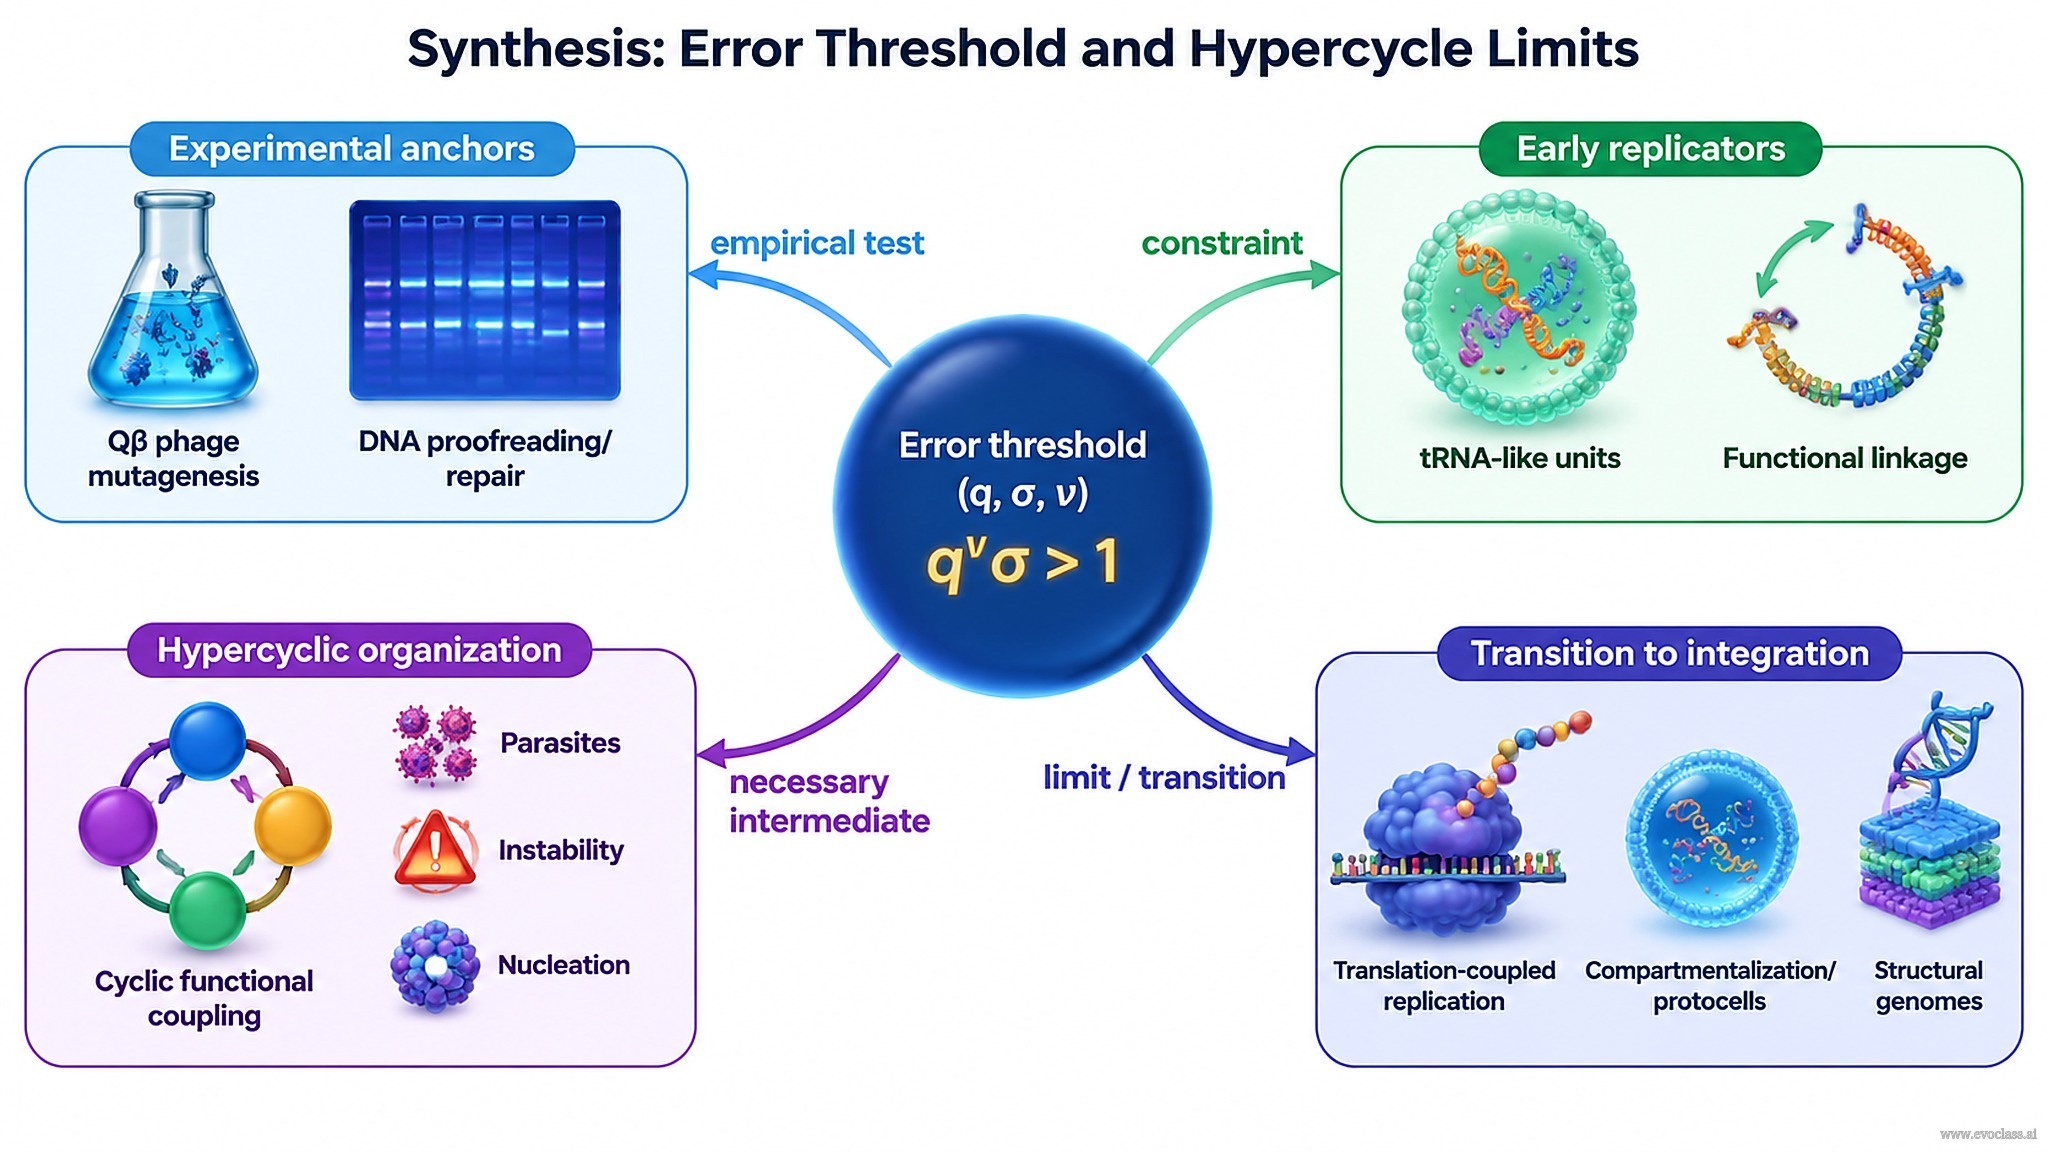
El umbral de error establece la máxima información estable que un replicador primitivo puede mantener bajo una fidelidad de replicación y una ventaja selectiva dadas. Para una longitud de secuencia ν y una superioridad selectiva σ, el mantenimiento estable requiere
El juego de la evolución de oraciones
El juego de la evolución de oraciones formaliza la misma restricción con tres variables: q̄m (precisión de copia), σm (ventaja selectiva), y vm (longitud de la secuencia). En conjunto predicen si una secuencia significativa se mantiene o se pierde. Aumentar vm sin mejorar q̄m o σm empuja al sistema más allá del umbral de error, por lo que la información estable solo sobrevive cuando la fidelidad, la selección y la longitud están equilibradas conjuntamente.
Anclajes experimentales: el fago Qβ y la corrección de pruebas del ADN
Los experimentos de mutagénesis del fago Qβ proporcionan un anclaje empírico: a medida que aumenta la carga mutacional, la distribución de mutantes se amplía y la dominancia del tipo silvestre se erosiona, ilustrando el acercamiento al umbral de error. En cambio, la corrección de pruebas y la reparación del ADN reducen la tasa de mutación efectiva μ, desplazando el límite y haciendo posibles genomas estables más grandes. Así, los replicadores de ARN tienden a acercarse al umbral de error, mientras que los organismos con corrección de pruebas pueden mantener más información.
Replicadores tempranos y acoplamiento funcional
Es probable que las primeras unidades replicativas permanecieran cortas y similares al tRNA. Su fidelidad limitaba tanto la capacidad codificante como la catalítica, por lo que no podían portar genomas grandes. En lugar de ligarse covalentemente, se vinculaban mediante acoplamiento funcional o catalítico: cada replicador sustentaba la replicación o la actividad de los demás, formando una red cooperativa en vez de un único cromosoma integrado.
La organización hipercíclica: un intermediario necesario
La organización hipercíclica acopla los replicadores de forma cíclica, lo que permite la selección colectiva, la integración de más funciones y una vía hacia la traducción. Por ello es un intermediario necesario bajo baja fidelidad. Sin embargo, los hiperciclos tienen límites: son vulnerables a la explotación por mutantes parásitos o egoístas, dependen de una estructura espacial o compartimental, sufren problemas de estabilidad y nucleación, pueden mostrar dinámicas oscilatorias o de ciclo límite, y no pueden integrar estructuralmente todos los genes.
Más allá de los hiperciclos: traducción, compartimentos y genomas estructurales
Las mejoras más allá de los hiperciclos implican la replicación acoplada a la traducción, la compartimentación o protocélulas, y la integración estructural en genomas unificados. Estos cambios alinean la herencia con la unidad integrada en su conjunto, permitiendo que la selección actúe sobre todo el conjunto de genes en lugar de sobre replicadores débilmente acoplados.
Mapa conceptual del umbral de errorEl mapa conceptual se centra en la condición del umbral de error . Se ramifica hacia anclajes experimentales como la mutagénesis del fago Qβ y la corrección de pruebas del ADN, los replicadores tempranos similares al tRNA con acoplamiento funcional, la organización hipercíclica con límites de parasitismo e inestabilidad, y la transición hacia la traducción, la compartimentación y los genomas estructurales. Las etiquetas de las flechas indican 'prueba empírica', 'restricción', 'intermediario necesario' y 'límite / transición'.