En los hiperciclos acoplados a la traducción, la plantilla de polinucleótido P no solo se replica, sino que también se traduce en un producto polipeptídico X. Estas dos especies pueden unirse de forma reversible para formar un complejo PX. La constante de asociación K fija el reparto en equilibrio entre las especies complejadas y libres y, por tanto, controla cuánta plantilla libre queda disponible para la replicación.
La reacción de unión es reversible: P + X ⇌ PX. Por convenio, la constante de asociación en equilibrio es K = [PX] / ([P][X]). Un valor mayor de K favorece el complejo unido PX, mientras que un valor menor de K favorece los componentes libres. En el equilibrio, [PX]/[P] = K[X] y [PX]/[X] = K[P], de modo que K y las concentraciones del compañero libre determinan conjuntamente la proporción entre complejo y forma libre.
Conservación de masa y plantilla libre
La conservación de masa exige que las concentraciones totales se repartan entre formas libres y unidas: [P]tot = [P]libre + [PX] y [X]tot = [X]libre + [PX]. El paso de replicación depende de la concentración de plantilla libre [P]libre, no de la concentración total de plantilla. Por tanto, la formación de complejos reduce la plantilla libre y puede disminuir el flujo efectivo de replicación.
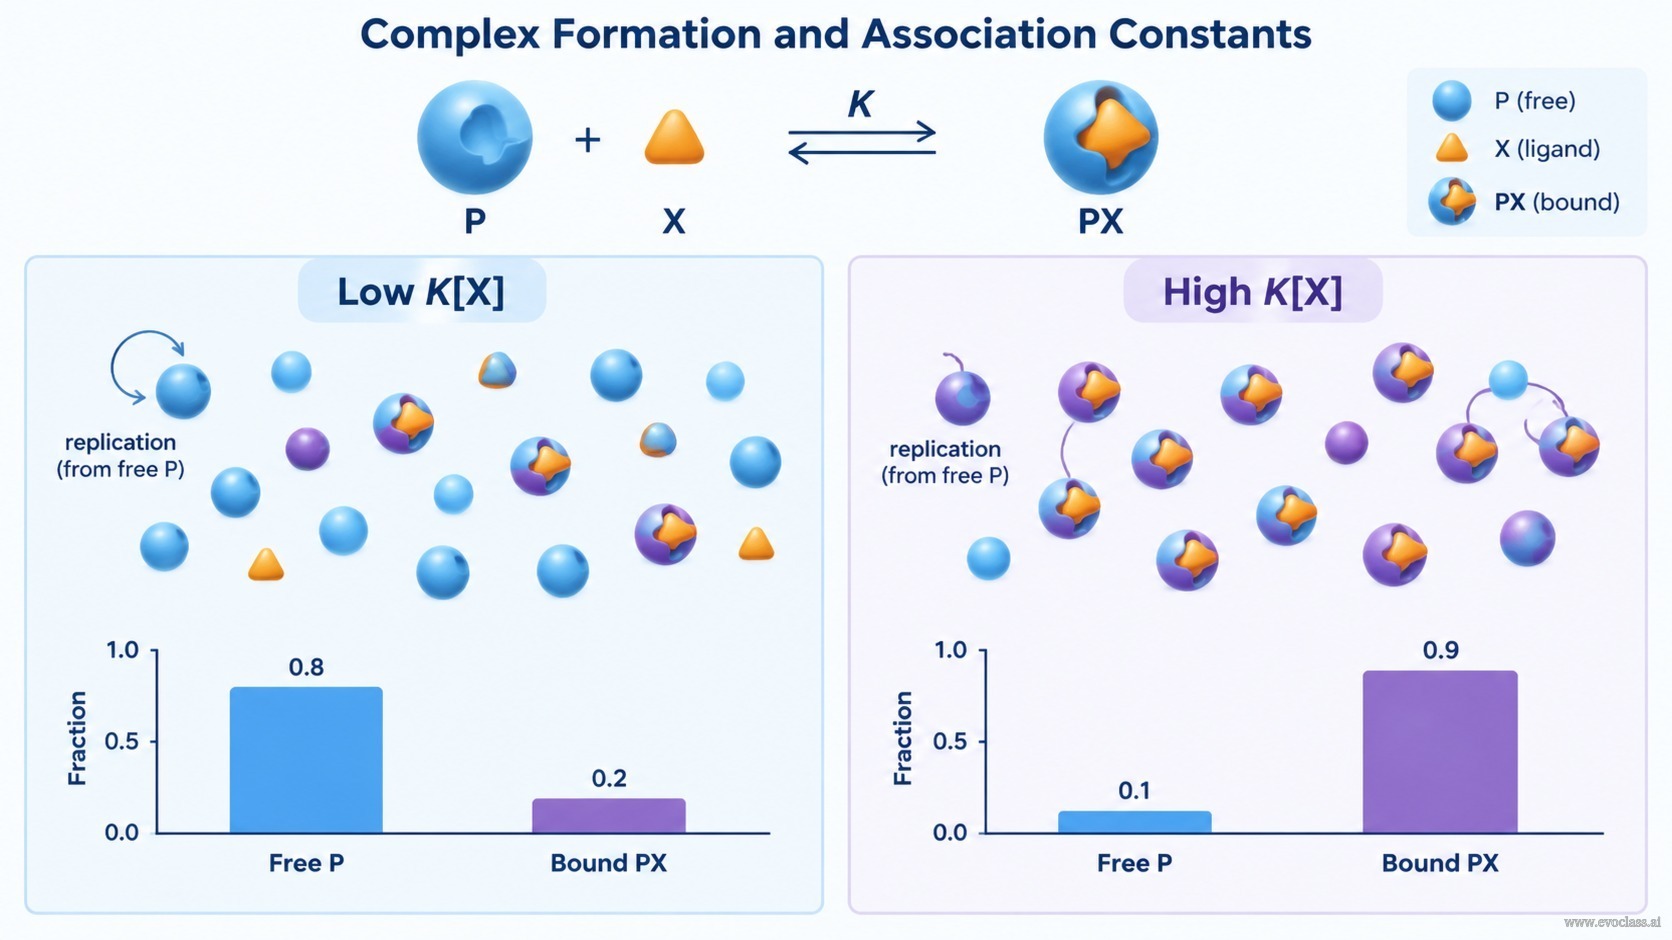
- La fracción unida aumenta con K y con X libre. Un K[X] bajo deja la mayor parte de la plantilla libre, mientras que un K[X] alto satura la formación de complejos.
- Como X se produce por traducción, la formación de complejos acopla la síntesis de polipéptidos a la disponibilidad de plantilla y, por tanto, a la dinámica de replicación hipercíclica.
En el panorama más amplio del hiperciclo, este secuestro reversible desplaza el sistema entre regímenes. Cuando K[X] es pequeño, la mayor parte de la plantilla está libre y el hiperciclo acoplado a la traducción puede comportarse como un hiperciclo elemental o un ciclo catalítico simple. Cuando K[X] es grande, la formación de complejos elimina plantilla libre de la replicación y puede amortiguar las oscilaciones, alterar las amplitudes del ciclo límite o empujar el sistema hacia un régimen de baja concentración. Cerca de una bifurcación de Hopf, tales cambios en la retroalimentación efectiva también pueden modificar la ralentización crítica y la estabilidad del estado oscilatorio.
Formación de complejos y constantes de asociaciónLa reacción P + X ⇌ PX con constante de asociación K reparte la plantilla total entre P libre y PX unido. El gráfico de barras muestra que al aumentar K[X] la fracción unida pasa de baja a casi la saturación, dejando menos P libre para la replicación.