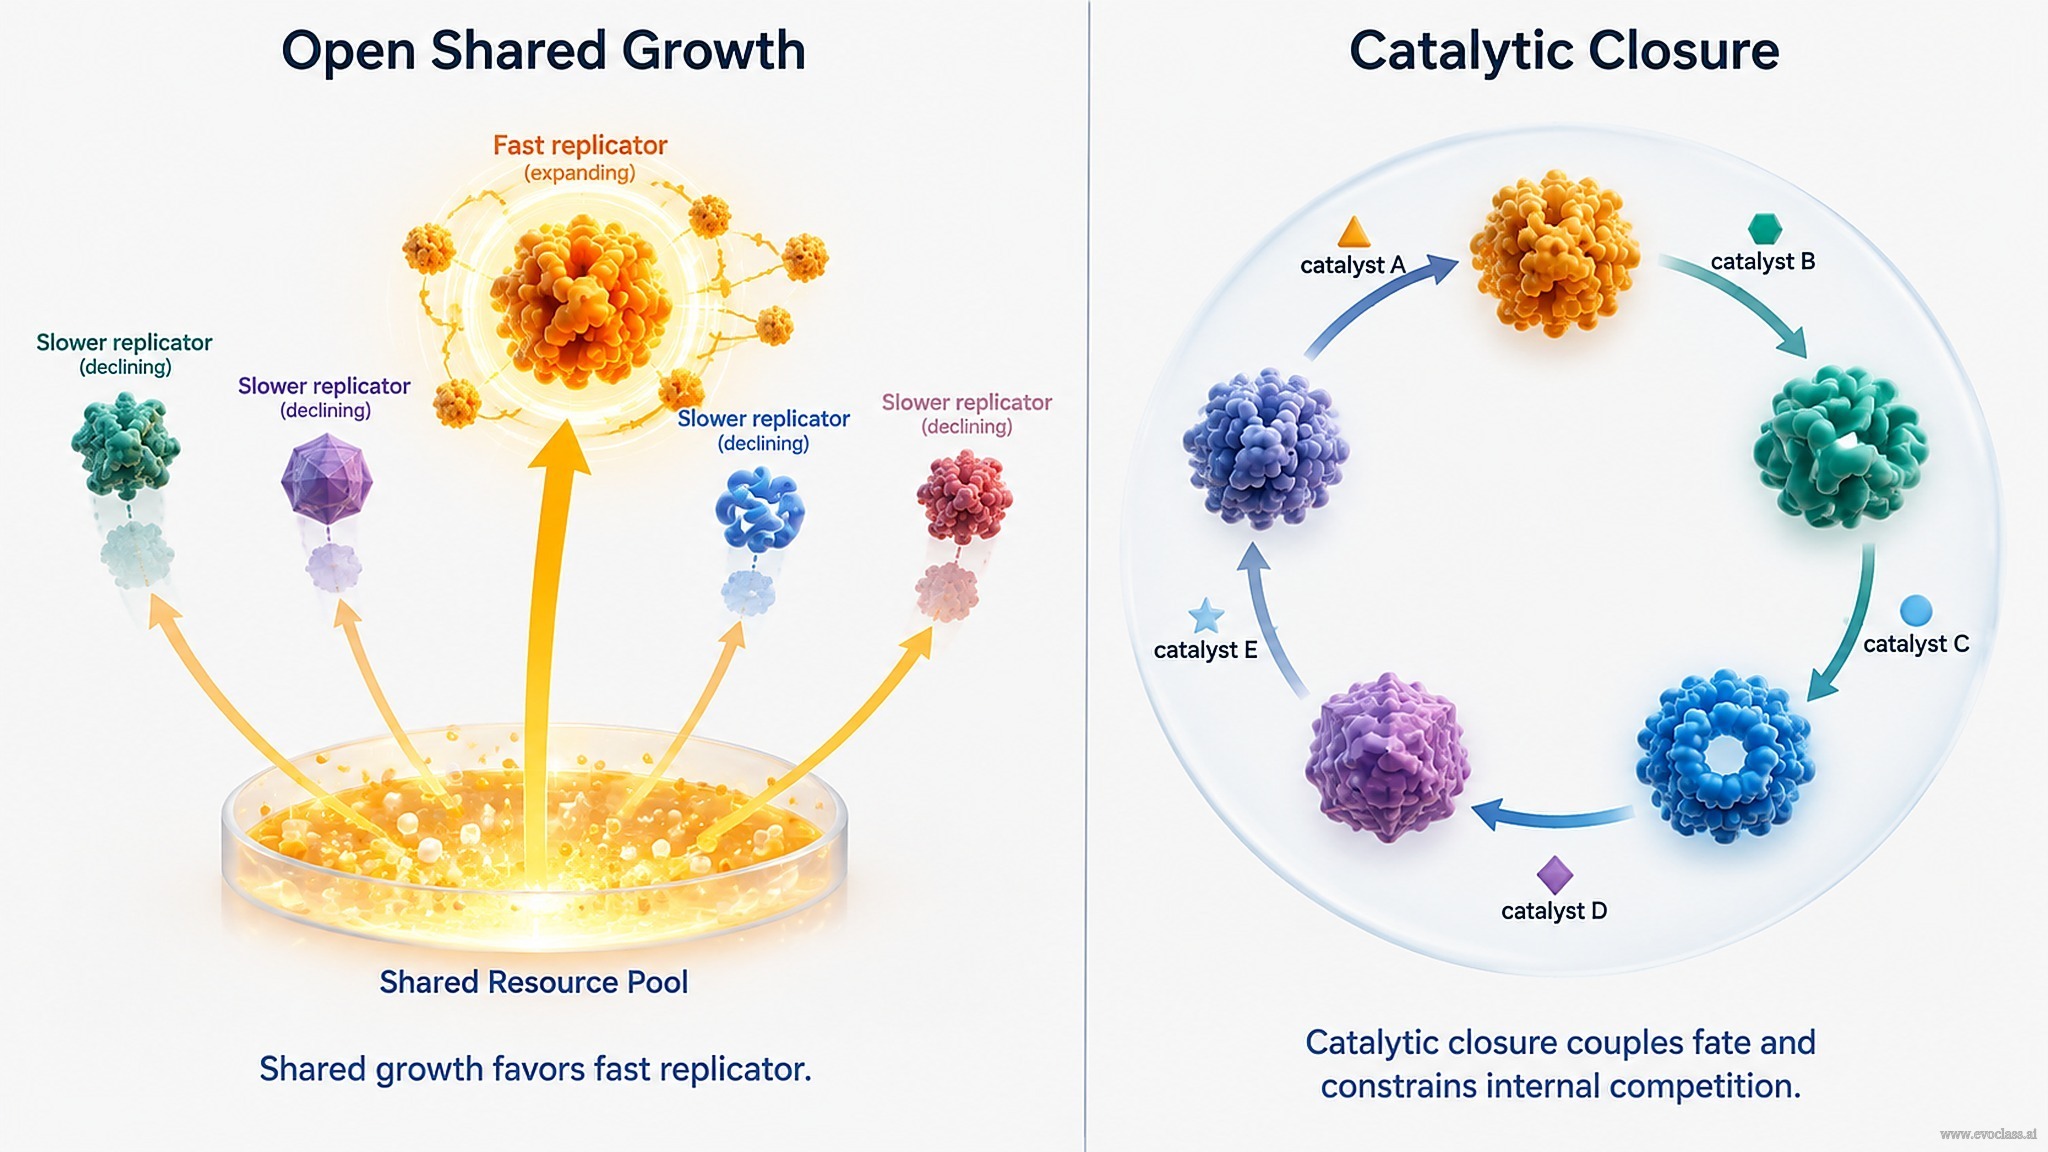
En un hiperciclo acoplado a la traducción, el acoplamiento funcional por sí solo no basta. Supongamos que un conjunto de cadenas de ARN codifica una replicasa y varias funciones de sintetasa, y que todas las cadenas comparten la misma maquinaria de replicación y traducción. Los términos compartidos se reducen a una función de crecimiento común. Entonces, una cadena que se replica más rápido —o se traduce con mayor eficiencia— puede expandirse a expensas de las demás, y el conjunto decae por competencia interna. Esto es crecimiento compartido, no cierre catalítico.
El cierre catalítico convierte el mismo conjunto en un ciclo de dependencia recíproca. La replicación o traducción de cada miembro es catalizada por al menos otro miembro. El crecimiento se vuelve colectivo: un replicador rápido no puede mantener un crecimiento acelerado indefinidamente si el catalizador que necesita solo lo produce el miembro al que, de otro modo, desplazaría. La competencia interna persiste por los precursores, la energía, la capacidad de traducción y la eficiencia catalítica, pero la dependencia cíclica la limita.
La estabilización depende de la fuerza de acoplamiento en relación con las diferencias de crecimiento intrínsecas. El análisis perturbativo del valor selectivo es válido cuando wkm ≪ Wmm − Wkk (cf. Tabla 2). Las aproximaciones de orden superior utilizan
Del cierre hipercíclico a la integración estructural
El cierre hipercíclico estabiliza la cooperación acoplada a la traducción, pero tiene límites. Los mutantes parásitos pueden aceptar la catálisis sin contribuir, y los desequilibrios internos entre los miembros pueden desestabilizar el ciclo. Estas limitaciones ayudan a explicar el posterior cambio hacia la integración estructural completa de genes/genomas: una vez que los genes se vinculan físicamente y se co-replican como un genoma, el enlace catalítico cerrado se reemplaza por una unidad estructural, lo que reduce la oportunidad para los parásitos y estabiliza la cooperación.
Crecimiento abierto vs. cierre catalíticoIzquierda: el crecimiento compartido abierto permite que un replicador rápido se expanda mientras los demás miembros decaen. Derecha: un ciclo catalítico cerrado acopla la replicación o traducción de cada miembro a otro miembro, de modo que ningún nodo aislado puede mantener un crecimiento acelerado por sí solo y la competencia interna queda limitada.