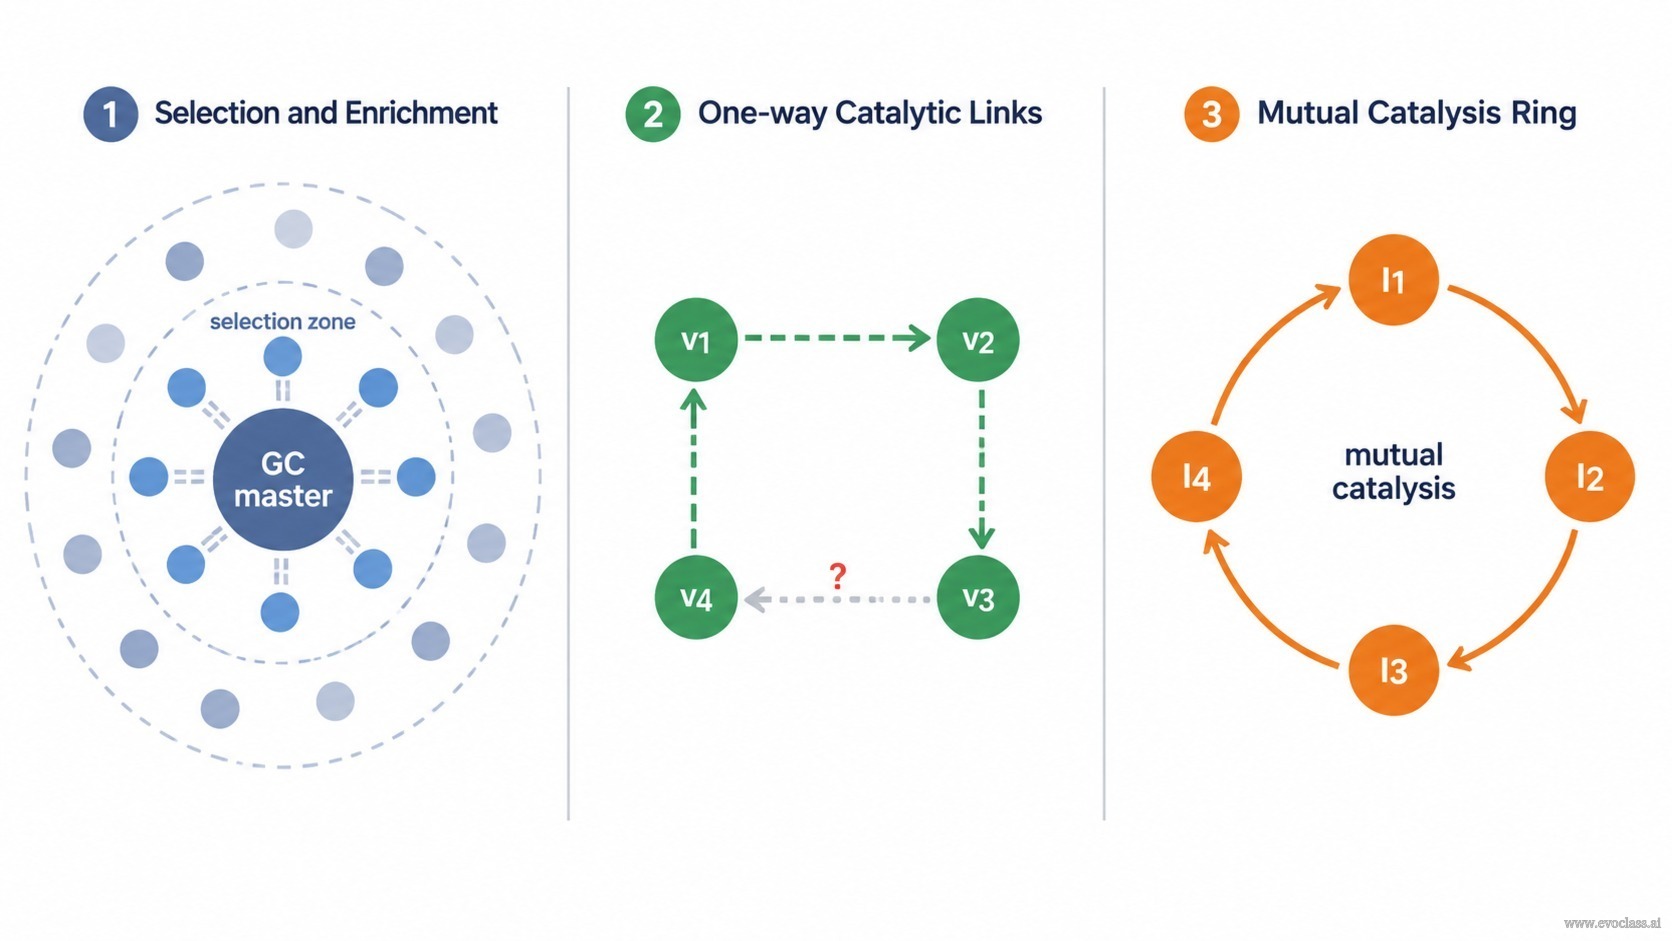
Un hiperciclo es un conjunto cerrado de replicadores que catalizan mutuamente su replicación. Dado que el ciclo se define por la mutua catálisis entre varias secuencias distintas, no puede nuclear a partir de una única copia molde: una molécula no contiene toda la función cíclica, y su primera copia no tiene compañeros catalíticos con los que cerrar un bucle. Por lo tanto, la organización hipercíclica no puede aparecer de forma abrupta; debe ensamblarse gradualmente a nivel de población, y la cuna más plausible para ese ensamblaje es una cuasi-especie rica en GC.
Por qué una sola plantilla no puede iniciar un ciclo
Un replicador autocatalítico es autosuficiente: una sola hebra que sirve de molde para su propia copia crece exponencialmente a partir de una molécula, porque la molécula y su producto cumplen la misma función. Un hiperciclo no es de este tipo. Su propiedad definitoria es un bucle cerrado de soporte catalítico en el que el miembro i potencia la replicación del miembro j, que a su vez potencia k, y así sucesivamente hasta que el bucle regresa a i. Si se elimina cualquier miembro, los restantes ya no lo regeneran. En consecuencia, la primera copia de cualquier miembro es un callejón sin salida: no tiene compañeros complementarios y no existe un ciclo catalítico cerrado que la amplifique de forma preferente.
Una cuasi-especie rica en GC aporta la materia prima
Una cuasi-especie no es una única secuencia, sino una nube de secuencias relacionadas, conectadas mutacionalmente, distribuidas alrededor de una secuencia dominante similar a la maestra. En un acervo rico en GC, esta nube está inusualmente bien dotada. Cada par G–C adicional aporta un tercer puente de hidrógeno, por lo que las horquillas ricas en GC se desnaturalizan a mayor temperatura, se pliegan de forma más fiable y toleran más mutaciones puntuales antes de que su estructura secundaria colapse. El reservorio combina, por tanto, dos cosas que el problema de la nucleación requiere a la vez: una elevada diversidad local de variantes con bucles, tallos y geometría de superficie alterados, y suficiente estabilidad estructural para que las variantes individuales permanezcan funcionales el tiempo suficiente como para ser sometidas a la selección.
La mutación explora el acoplamiento, la selección lo conserva
La exploración mutacional es lo que realmente explora el espacio de interacciones. Una sustitución puntual puede remodelar una horquilla, exponer una nueva superficie de unión o reclutar un centro catalítico dependiente de iones metálicos, modificando el coeficiente de acoplamiento débil
De la organización de cuasi-especie a la organización hipercíclica
A medida que se acumulan los enlaces, la distribución de mutantes cambia de forma. La diversidad ya no se reparte en torno a una única secuencia maestra; se condensa hacia un pequeño subconjunto de plantillas mutuamente catalíticas, y el cierre del anillo solo se produce cuando existen suficientes enlaces para que la red esté cerrada, y no meramente abierta o ramificada. Antes del cierre, el conjunto se comporta como una cuasi-especie con algunas variantes correlacionadas. Tras el cierre, el crecimiento es cooperativo y superaditivo: el ciclo se multiplica como una unidad y, como cada miembro alimenta al siguiente, el conjunto acoplado puede superar a una cuasi-especie aislada que compite por los mismos monómeros y la misma replicasa. Así es como un hiperciclo podría aparecer sin ningún genoma multigénico preformado: mediante el reclutamiento y la integración de genes mutantes ya presentes en el reservorio rico en GC. El análisis subyacente de puntos fijos para el caso de dos miembros plantea lo mismo en forma de coeficientes de tasa: que el par termine en exclusión competitiva, en la selección de uno de los miembros o en una coexistencia hipercíclica estable depende únicamente de las magnitudes relativas de la auto-potenciación y la potenciación mutua, y el criterio se generaliza a ciclos de tres y de n miembros.
Cuándo falla la ruta
- La fidelidad de replicación debe mantenerse por encima del umbral de error. Si la tasa de mutación es demasiado alta, el reservorio se disuelve en una nube difusa en la que ninguna variante persiste el tiempo suficiente para establecer un enlace.
- La compatibilidad funcional es importante: los miembros no deben interferir destructivamente con el plegamiento o la catálisis de los demás; de lo contrario, los enlaces que se acumulan se anulan en lugar de reforzarse.
- La carga de parásitos debe mantenerse baja. Una plantilla egoísta que se replica eficientemente gracias al ciclo emergente, pero que no cataliza nada a cambio, consume los recursos compartidos y puede desestabilizar la red antes de que se cierre.
Esbozo resuelto. En un acervo de ARN rico en GC, una secuencia dominante similar a GGC/GCC y sus mutantes forman una cuasi-especie. Un mutante puede asistir débilmente a la replicación de una secuencia vecina, y la selección conserva a ambos compañeros porque su rendimiento conjunto supera lo que cada uno alcanza por separado. Mutaciones posteriores generan asistencia recíproca, se completa la rama que faltaba y se cierra un ciclo de dos o más miembros. Una vez cerrado, el crecimiento hipercíclico supera a la cuasi-especie aislada que le dio origen.
Emergencia a partir de una cuasi-especie rica en GCTres etapas que se leen de izquierda a derecha. Primero, una secuencia maestra rica en GC se sitúa en el centro de una nube mutacional, con una zona de selección interna que marca las variantes que se enriquecen progresivamente mientras los pares de bases GC estables protegen sus estructuras plegadas. Segundo, las variantes supervivientes se unen mediante enlaces catalíticos débiles y unidireccionales, y una conexión aún está punteada porque la red todavía no está cerrada. Tercero, esos enlaces se vuelven recíprocos y la red se cierra formando un anillo hipercíclico en el que cada miembro cataliza al siguiente, de modo que el conjunto en su totalidad puede superar a una cuasi-especie aislada.