La diapositiva 69 reúne evidencia indirecta pero convergente de que una única hebra de ARN podría actuar a la vez como adaptador —un transportador similar al ARNt que entrega un aminoácido a una cadena en crecimiento— y como mensajero —una secuencia similar al ARNm que puede leerse. Si ambos roles pueden convivir en una misma molécula, la barrera entre la replicación hipercíclica del ARN y la traducción primitiva cae drásticamente: ni una clase separada de adaptadores ni, en el inicio mismo, una sintetasa tuvo que aparecer antes de que un mensaje pudiera ser descifrado.
Cuatro líneas convergentes de evidencia
- Secuencia del ARNt y alineamientos estructurales: las funciones de adaptador y mensajero pueden residir en la misma familia de ARN; una molécula porta tanto un rol de aceptación/transferencia de aminoácidos como información de secuencia legible.
- Síntesis de novo del midivariante de Qβ: el ARN puede reproducirse sin un aparato de traducción preexistente, por lo que moléculas de ARN grandes, reproducibles y del tamaño de un ARNt son plausibles antes de que exista una traducción sofisticada.
- Precursores enzimáticos simples de lámina β: las proteínas funcionales tempranas no requerían plegamientos complejos; péptidos mínimos podrían proporcionar una función primitiva sin una enzima completamente plegada.
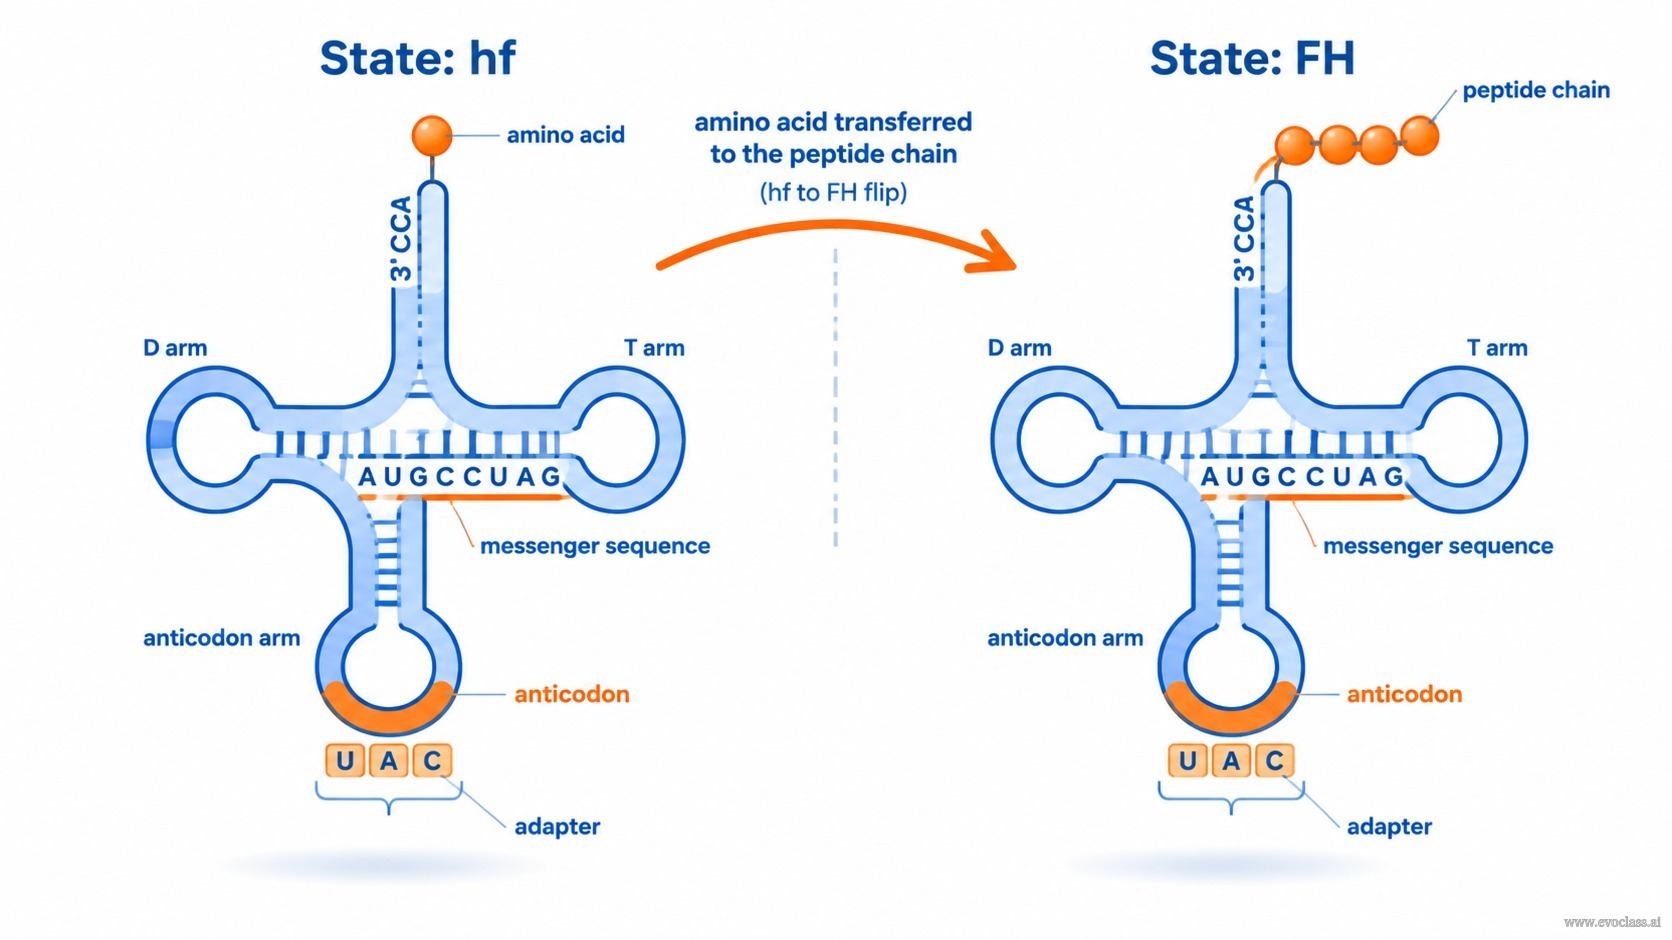
- Flexibilidad conformacional del ARNt (hf ↔ FH): los roles de adaptador y de molde no están completamente separados en clases distintas de ARN.
El cambio hf ↔ FH
Cuál de las dos configuraciones está realmente presente depende de si el ARNt está unido a un aminoácido o a una cadena peptídica. Al transferir un aminoácido a la cadena peptídica, el ARNt pasa de la hf a la FH configuración (cfr. Fig. 49). El modelo explica bien cómo, en ausencia de un aparato de traducción sofisticado, se puede leer un mensaje: la misma hebra que entrega un aminoácido también expone una secuencia legible.
La contrapregunta que hay que tomar en serio
¿Cómo podría concebirse un origen de la traducción, dadas moléculas de ARN reproducibles tan grandes como el ARNt y los requisitos previos para sintetizar proteínas de forma primitiva a partir de un número limitado de aminoácidos suficientemente comunes? La pregunta puede agudizarse hasta convertirse en una objeción: "Esta pregunta puede plantearse alternativamente como: ¿por qué no adaptadores oligonucleotídicos pequeños?" El modelo de doble función responde que la molécula debe ser lo suficientemente larga y estructurada como para sustentar tanto el reconocimiento del adaptador como la legibilidad del mensajero, por lo que un oligonucleótido diminuto no bastaría.
Cambio de hf a FH del ARNtUna sola hebra de ARNt mostrada en dos estados: hf, cuando porta un aminoácido, y FH, después de que ese aminoácido se transfiere a una cadena peptídica. Dado que la misma hebra también expone una secuencia legible, el rol de adaptador (reconocimiento del anticodón) y el rol de mensajero (molde legible) no se dividen en clases separadas de ARN, y es precisamente por eso que un mensaje puede leerse sin un aparato de traducción sofisticado.