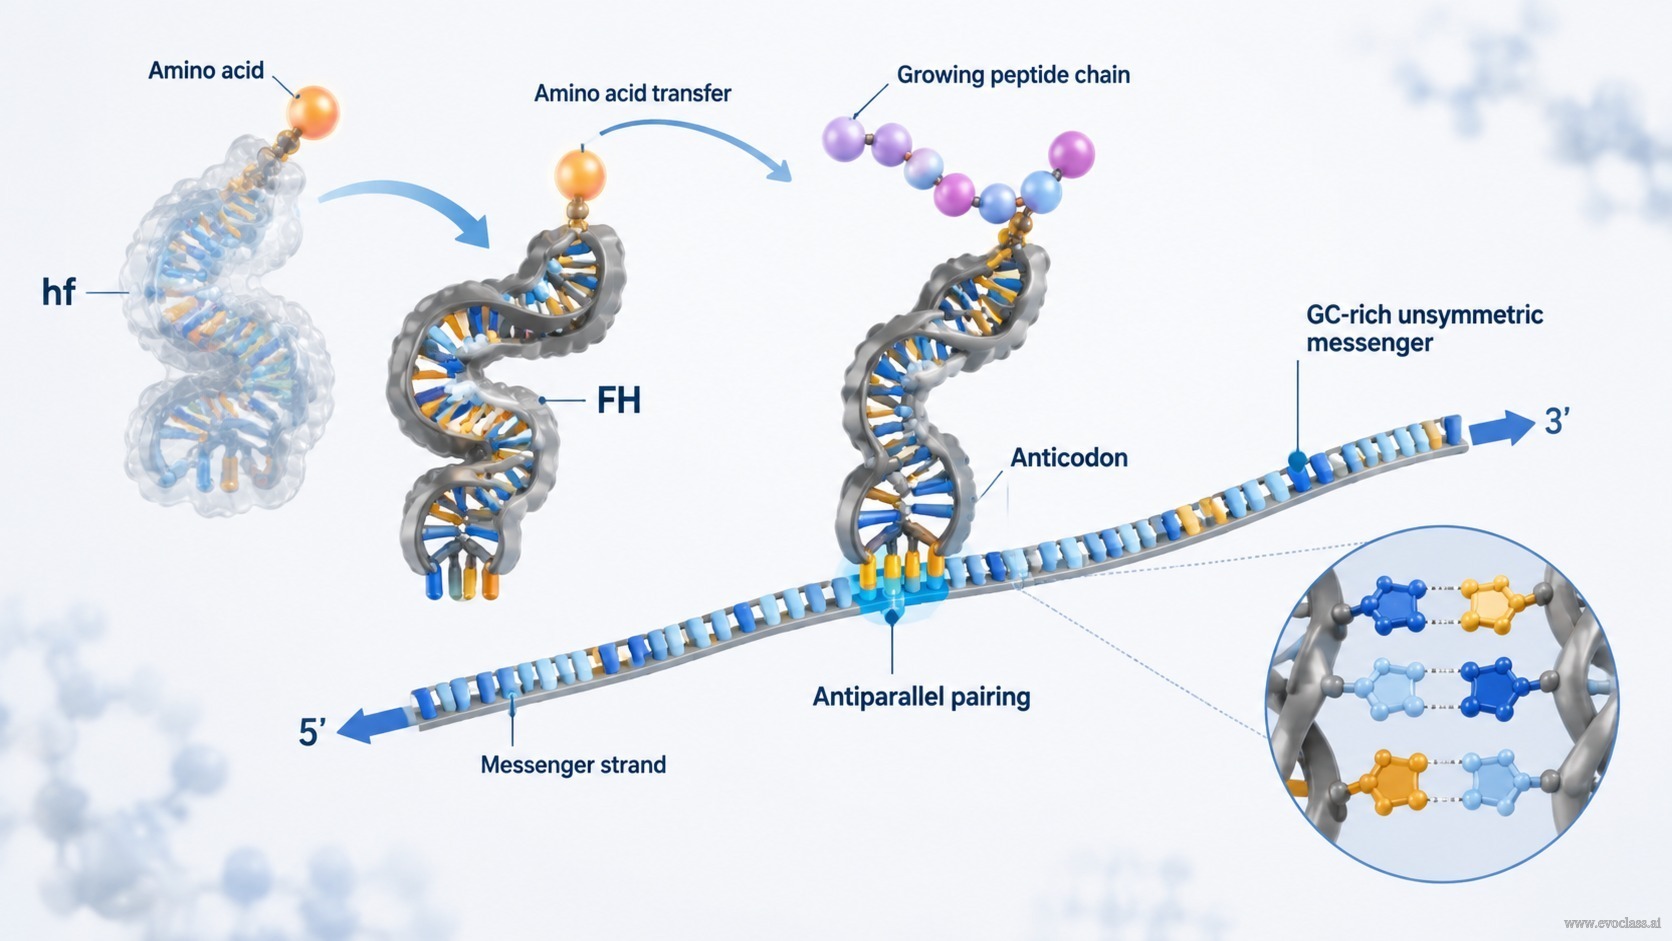
La traducción en la vida temprana no tuvo que comenzar con un ribosoma completamente formado. El modelo propone que adaptadores simples similares al tRNA podrían leer un mensajero mediante emparejamiento complementario y antiparalelo, siempre que exista soporte catalítico para la formación del enlace peptídico. La configuración del adaptador depende de su carga: adopta la configuración hf cuando transporta un aminoácido y la configuración FH cuando transporta una cadena peptídica. La transferencia del aminoácido a la cadena peptídica en crecimiento hace que el adaptador pase de hf a FH (cf. Fig. 49).
Dado que la alineación adaptador–mensajero es antiparalela, un mensaje puede leerse sin un aparato de traducción sofisticado. La elección de patrones iniciales ricos en GC está dictada por cuatro argumentos, entre ellos la estabilidad de la interacción adaptador–mensajero y la fidelidad de la replicación, que favorecen las combinaciones de GC como punto de partida, y la lectura sin comas en la traducción, que requiere un patrón de GC asimétrico. Así, los patrones de mensajero sin comas surgen de un patrón de GC asimétrico que permite la lectura sin separadores ni una maquinaria traduccional compleja.
Puntos mecanísticos clave
- Soporte catalítico sigue siendo necesario para las funciones de traducción, pero la traducción temprana puede usar adaptadores simples en lugar de un ribosoma completo.
- Conformación dependiente de la carga: la configuración del tRNA depende de si transporta un aminoácido o una cadena peptídica. La transferencia hace pasar de hf a FH.
- Emparejamiento antiparalelo: la alineación complementaria adaptador–mensajero es antiparalela, lo que permite la lectura sin un aparato sofisticado.
- Patrones ricos en GC y asimétricos: la estabilidad y la fidelidad de la replicación favorecen el GC; la lectura sin comas requiere GC asimétrico para evitar la ambigüedad por marcos superpuestos.
Lectura adaptador–mensajeroEste diagrama muestra adaptadores similares al tRNA en configuraciones hf y FH, el emparejamiento complementario antiparalelo con un mensajero asimétrico rico en GC, y la transferencia del aminoácido que hace pasar de hf a FH, lo que permite la lectura sin comas sin un ribosoma sofisticado.