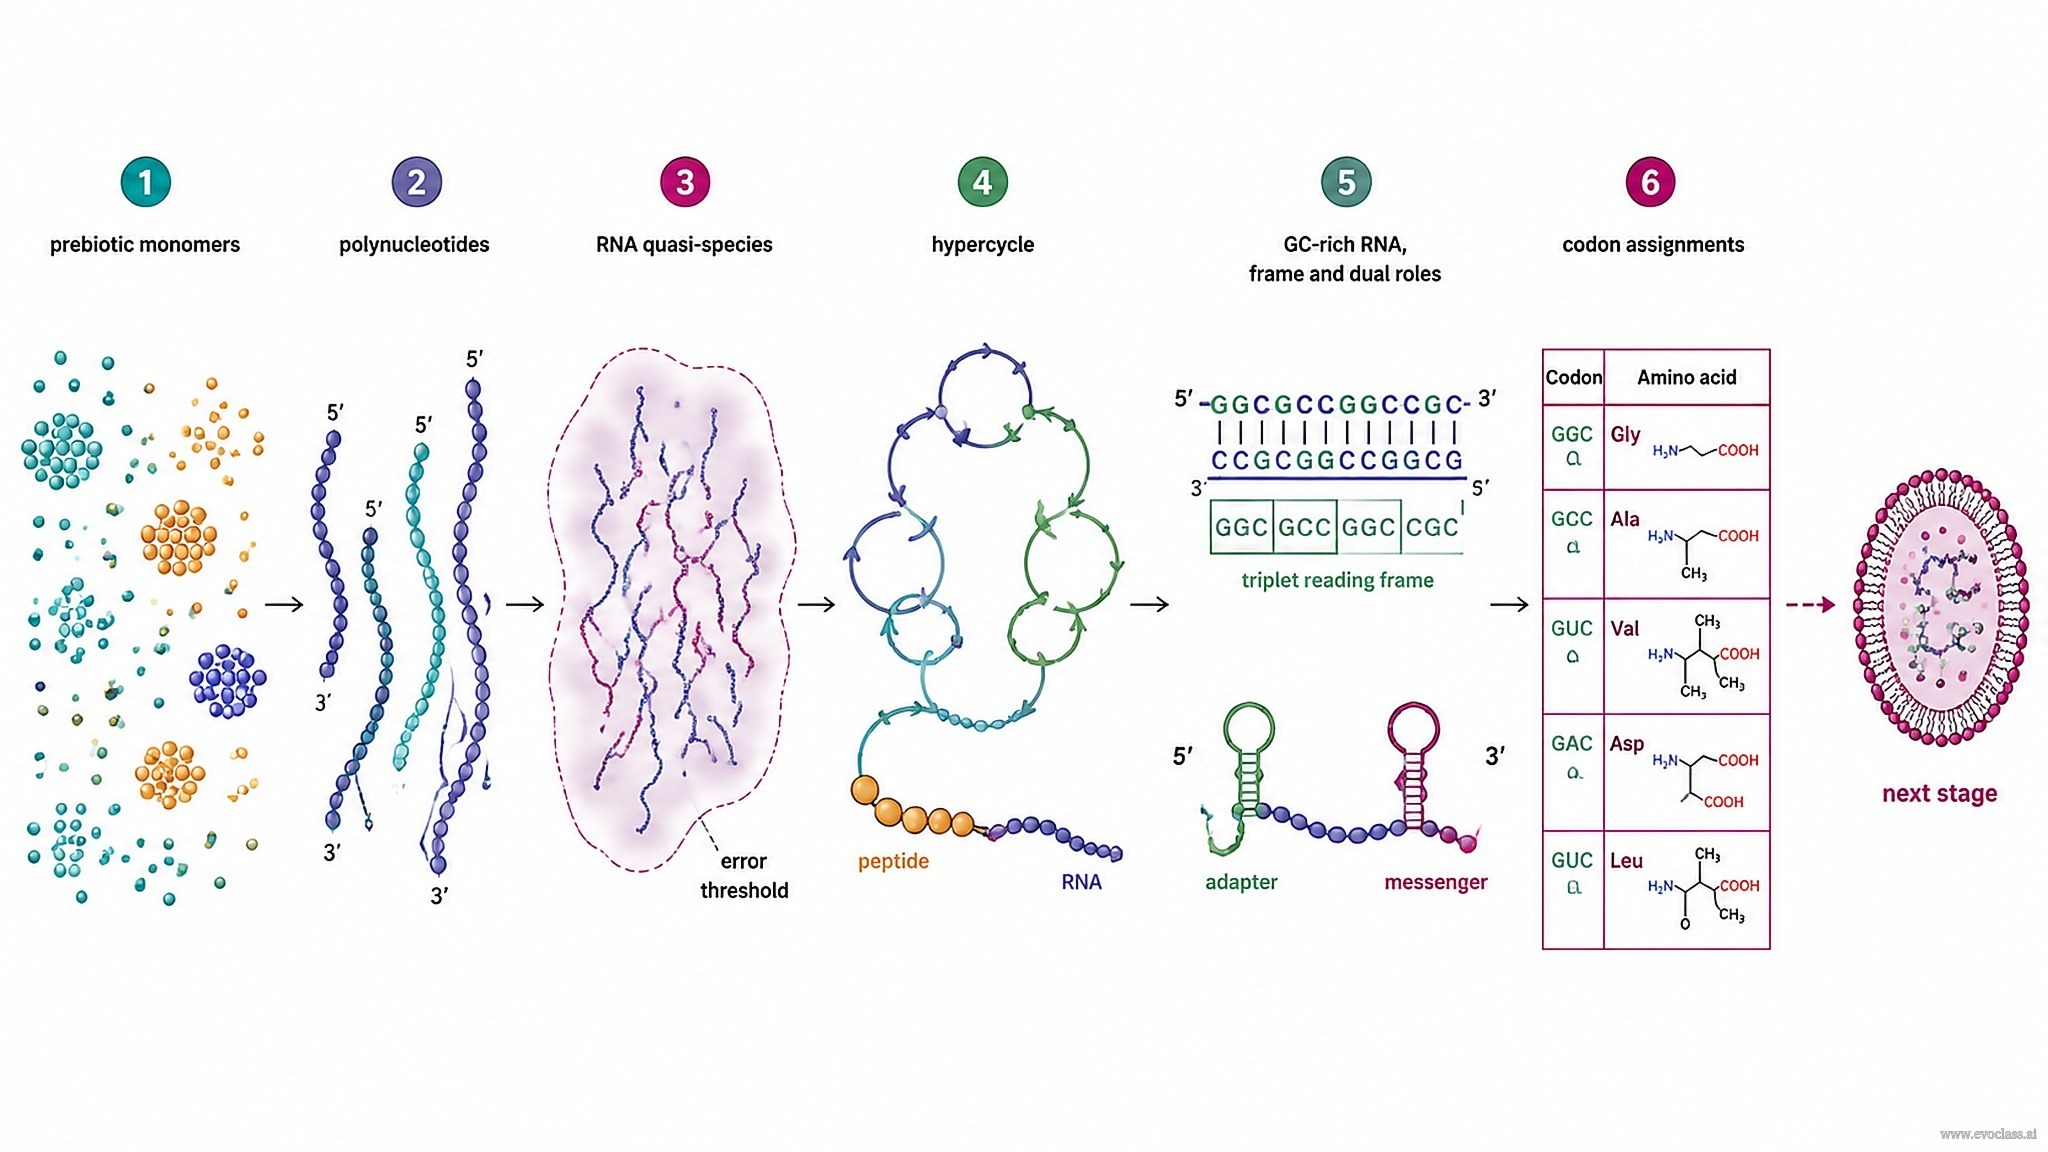
Esta página reúne la propuesta de continuidad desde las macromoléculas prebióticas hasta las primeras asignaciones de codones. La afirmación no es que un único evento produjera un código genético, sino que una serie de pasos físicos e informacionales fue reduciendo progresivamente el espacio de asignaciones posibles hasta que solo quedó un mapeo pequeño y viable de tripletes a aminoácidos.
1. Un conjunto inicial no aleatorio
La síntesis prebiótica no produce una mezcla uniforme. Los aminoácidos y los nucleótidos se acumulan con abundancias marcadamente no aleatorias, y esos sesgos se propagan hacia arriba: los monómeros que son abundantes y persistentes son los que realmente están disponibles para ser capturados por las primeras interacciones de codificación. La disponibilidad, no la optimización, establece el menú inicial del que debe extraerse cualquier asignación.
2. Los polinucleótidos como cuasiespecies, no como moléculas individuales
Los polinucleótidos tempranos no evolucionan como una única secuencia optimizada, sino como una cuasiespecie: una nube de variantes relacionadas mantenidas en equilibrio mutación-selección. Su contenido de información está limitado por el umbral de error; si la tasa de mutación por sitio es demasiado alta, la secuencia maestra se disuelve en una distribución mutante plana y poco informativa. La baja fidelidad de replicación también impone una carga mutante que suprime las moléculas más largas. Por lo tanto, la codificación temprana parte de secuencias cortas limitadas por el umbral de error, no de un protogenoma largo.
3. Acoplamiento funcional y organización hipercíclica
Acoplar la catálisis del ARN a la función de los péptidos permite que replicadores que de otro modo competirían se sostengan mutuamente. La organización hipercíclica es la forma propuesta de integrar estas funciones y de responder a las objeciones habituales: la nucleación (cómo comienza el ciclo), los parásitos (especies más cortas que explotan el ciclo sin contribuir) y la pérdida de información. El acoplamiento estabiliza interacciones de tipo codificante antes de que exista cualquier genoma.
4. Las restricciones que dan forma a la codificación temprana
- La replicación rica en GC sesga el espacio de secuencias accesible hacia moldes ricos en G/C.
- Los marcos sin comas evitan la ambigüedad por cambio de marco de lectura, por lo que solo ciertos códigos de tripletes pueden leerse sin delimitadores.
- ARN de doble función: la misma molécula puede servir como adaptador que transporta un aminoácido y como mensajero que se lee, por lo que cualquier asignación debe satisfacer ambos roles simultáneamente.
5. Las primeras asignaciones y la ruta posterior
Dentro de estas restricciones, las primeras asignaciones de codones probablemente implican tripletes similares a GGC/GCC emparejados con aminoácidos alifáticos relativamente abundantes. La transición es un gradiente, no un salto: presupone información limitada por el umbral de error, cierre catalítico y, solo más tarde, compartimentación, que unifica el genoma dentro de un único límite y da lugar a la protocélula integrada.
Objetivo de síntesis: ser capaz de relatar el orden propuesto de los eventos: macromoléculas y cuasiespecies, luego asignaciones de codones, después hiperciclos compartimentados y, finalmente, la protocélula integrada.
De macromoléculas a asignaciones de codonesUna ruta de continuidad lineal en la que las poblaciones no aleatorias de monómeros prebióticos alimentan poblaciones de polinucleótidos, que persisten como cuasiespecies de ARN en equilibrio mutación-selección acotado por el umbral de error. El acoplamiento funcional ARN-péptido y la organización hipercíclica sostienen entonces marcos sin comas ricos en GC, con adaptadores y mensajeros de doble función, a partir de los cuales surgen las primeras asignaciones de codones; los hiperciclos compartimentados, la protocélula integrada y el genoma unificado se señalan como la siguiente etapa, no como parte de este paso.