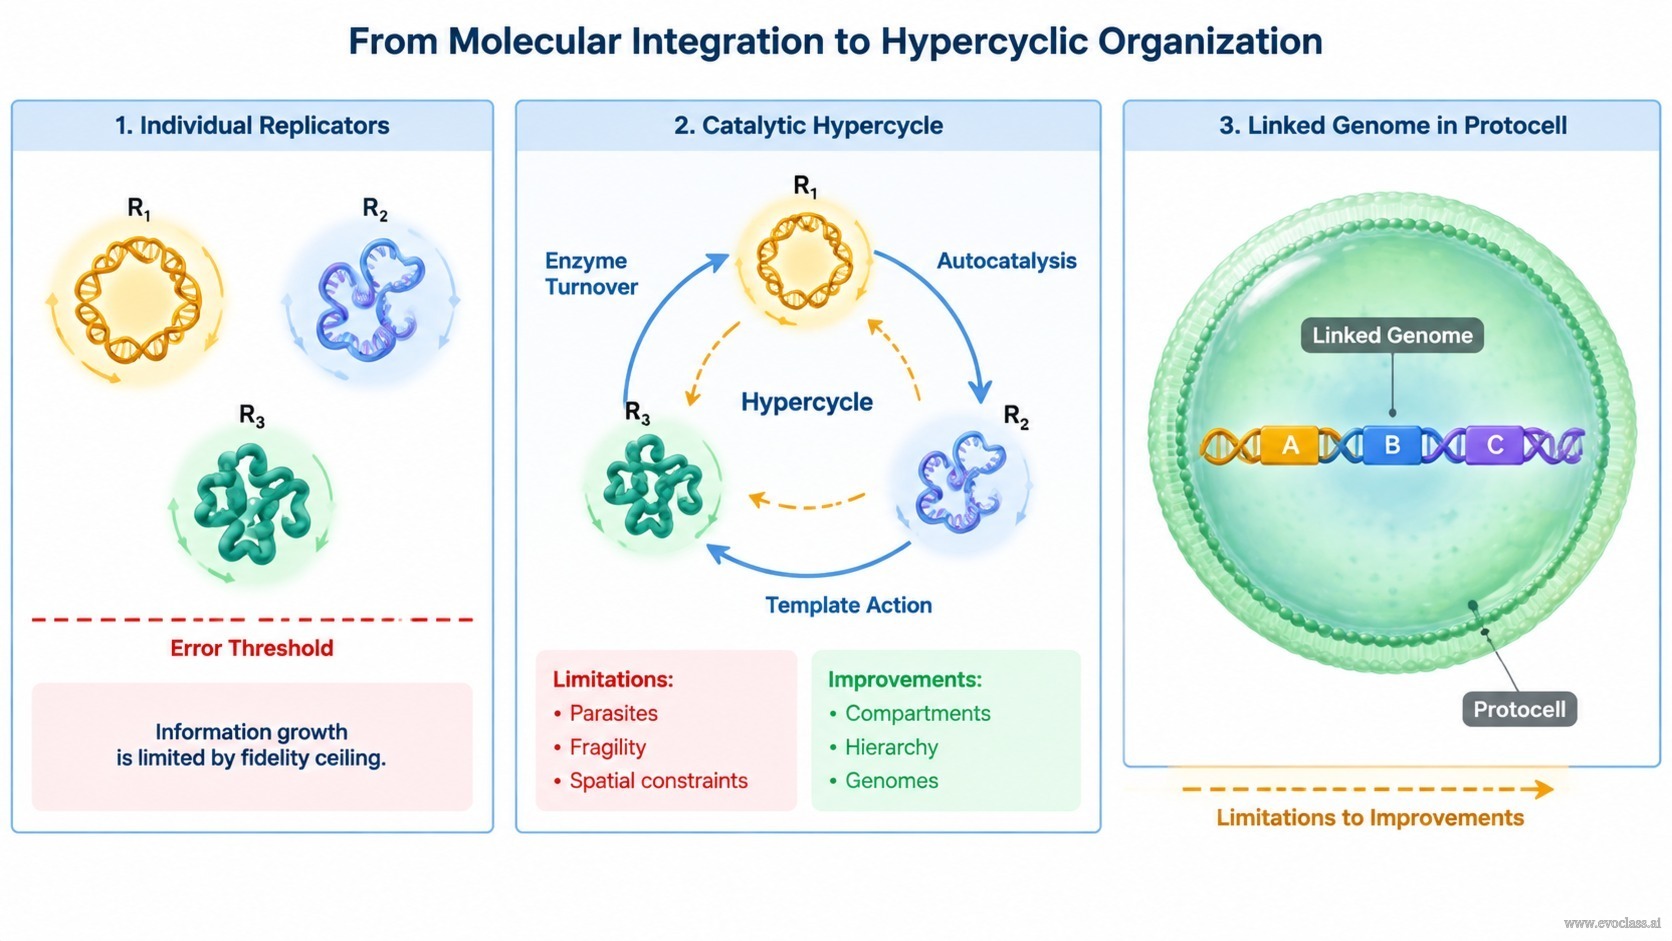
Cette diapositive saisit une transition décisive de l'évolution moléculaire précoce : lorsqu'une unité auto-réplicative ne peut plus porter suffisamment d'information, la sélection peut favoriser l'intégration de plusieurs entités auto-réplicatives. La raison en est le seuil d'erreur. La fidélité de copie d'un réplicateur fixe une limite supérieure à la longueur d'une séquence pouvant être maintenue face à la dégradation mutationnelle. Au-delà de cette limite, produire davantage d'information au sein d'une seule unité devient contre-productif, car la plupart des copies sont erronées et la séquence maîtresse est perdue.
L'organisation hypercyclique résout cette contrainte en couplant plusieurs unités auto-réplicatives au sein d'un réseau catalytique coopératif fermé. Dans ce réseau, chaque unité soutient la réplication des autres par des cycles catalytiques, l'autocatalyse, l'action matricielle et le renouvellement enzymatique. C'est le collectif, et non une molécule isolée, qui devient l' unité de sélection. L'intégration fonctionnelle n'exige donc pas, dans un premier temps, que les gènes soient physiquement liés ; elle requiert seulement que leurs produits catalytiques rétroagissent sur la réplication des membres du réseau.
Pourquoi le couplage fonctionnel vient en premier
Avant que les génomes n'existent sous forme de structures liées, la sélection peut agir sur un ensemble de réplicateurs qui coopèrent par voie catalytique. Un hypercycle transforme des compétiteurs indépendants en un réseau coopératif capable de maintenir plus d'informations collectives que n'importe quel membre isolé. Cela peut également ouvrir la voie à des fonctions précoces liées à la traduction, car plusieurs unités de type ARN peuvent assumer des rôles catalytiques ou codants différents sans qu'aucune n'excède sa limite de fidélité.
De l'intégration fonctionnelle à l'intégration structurelle
À mesure que les génomes évoluent, le couplage fonctionnel peut être remplacé par une intégration structurelle complète des gènes. Même les cellules connues les plus primitives possèdent des génomes qui constituent des unités structurelles. La liaison structurelle fait de l'ensemble coopératif une entité héréditaire unique, réduit la dépendance à un couplage catalytique diffusible et peut protéger les gènes coopérants contre la perte ou l'exploitation séparée.
La logique du spectre mutationnel
Une question centrale est de savoir pourquoi recourir à une organisation hypercyclique de nombreux gènes mutants isolés plutôt qu'à un seul génome en croissance continue. Pour un ensemble de 100 gènes, le nombre de mutants à k erreurs est
Limites et améliorations
L'organisation hypercyclique n'est pas une solution définitive. Elle peut être indirecte, dynamiquement fragile, vulnérable aux réplicateurs parasites ou égoïstes, et dépendante de contraintes spatiales ou compartimentales. Les améliorations incluent la compartimentation, les hypercycles hiérarchiques et, à terme, la formation de génomes structurels. Ces changements stabilisent la coopération et réduisent la dépendance à un couplage catalytique diffusible.
À retenir : L'hypercycle est un principe intermédiaire d'auto-organisation naturelle : il relie des unités auto-réplicatives par la coopération catalytique, de sorte qu'un collectif puisse maintenir de l'information au-delà de la limite de tout réplicateur isolé, et il prépare la voie à des génomes structurellement intégrés.
De l'intégration moléculaire à l'organisation hypercycliqueL'étape 1 montre des unités auto-réplicatives individuelles contraintes par un plafond de fidélité ; l'étape 2 montre des cycles catalytiques, l'autocatalyse, l'action matricielle et le renouvellement enzymatique formant un réseau hypercyclique fermé ; l'étape 3 montre le couplage fonctionnel remplacé par un génome structurellement lié au sein d'une protocellule, une flèche orange en pointillés indiquant les limites et les améliorations stabilisantes.