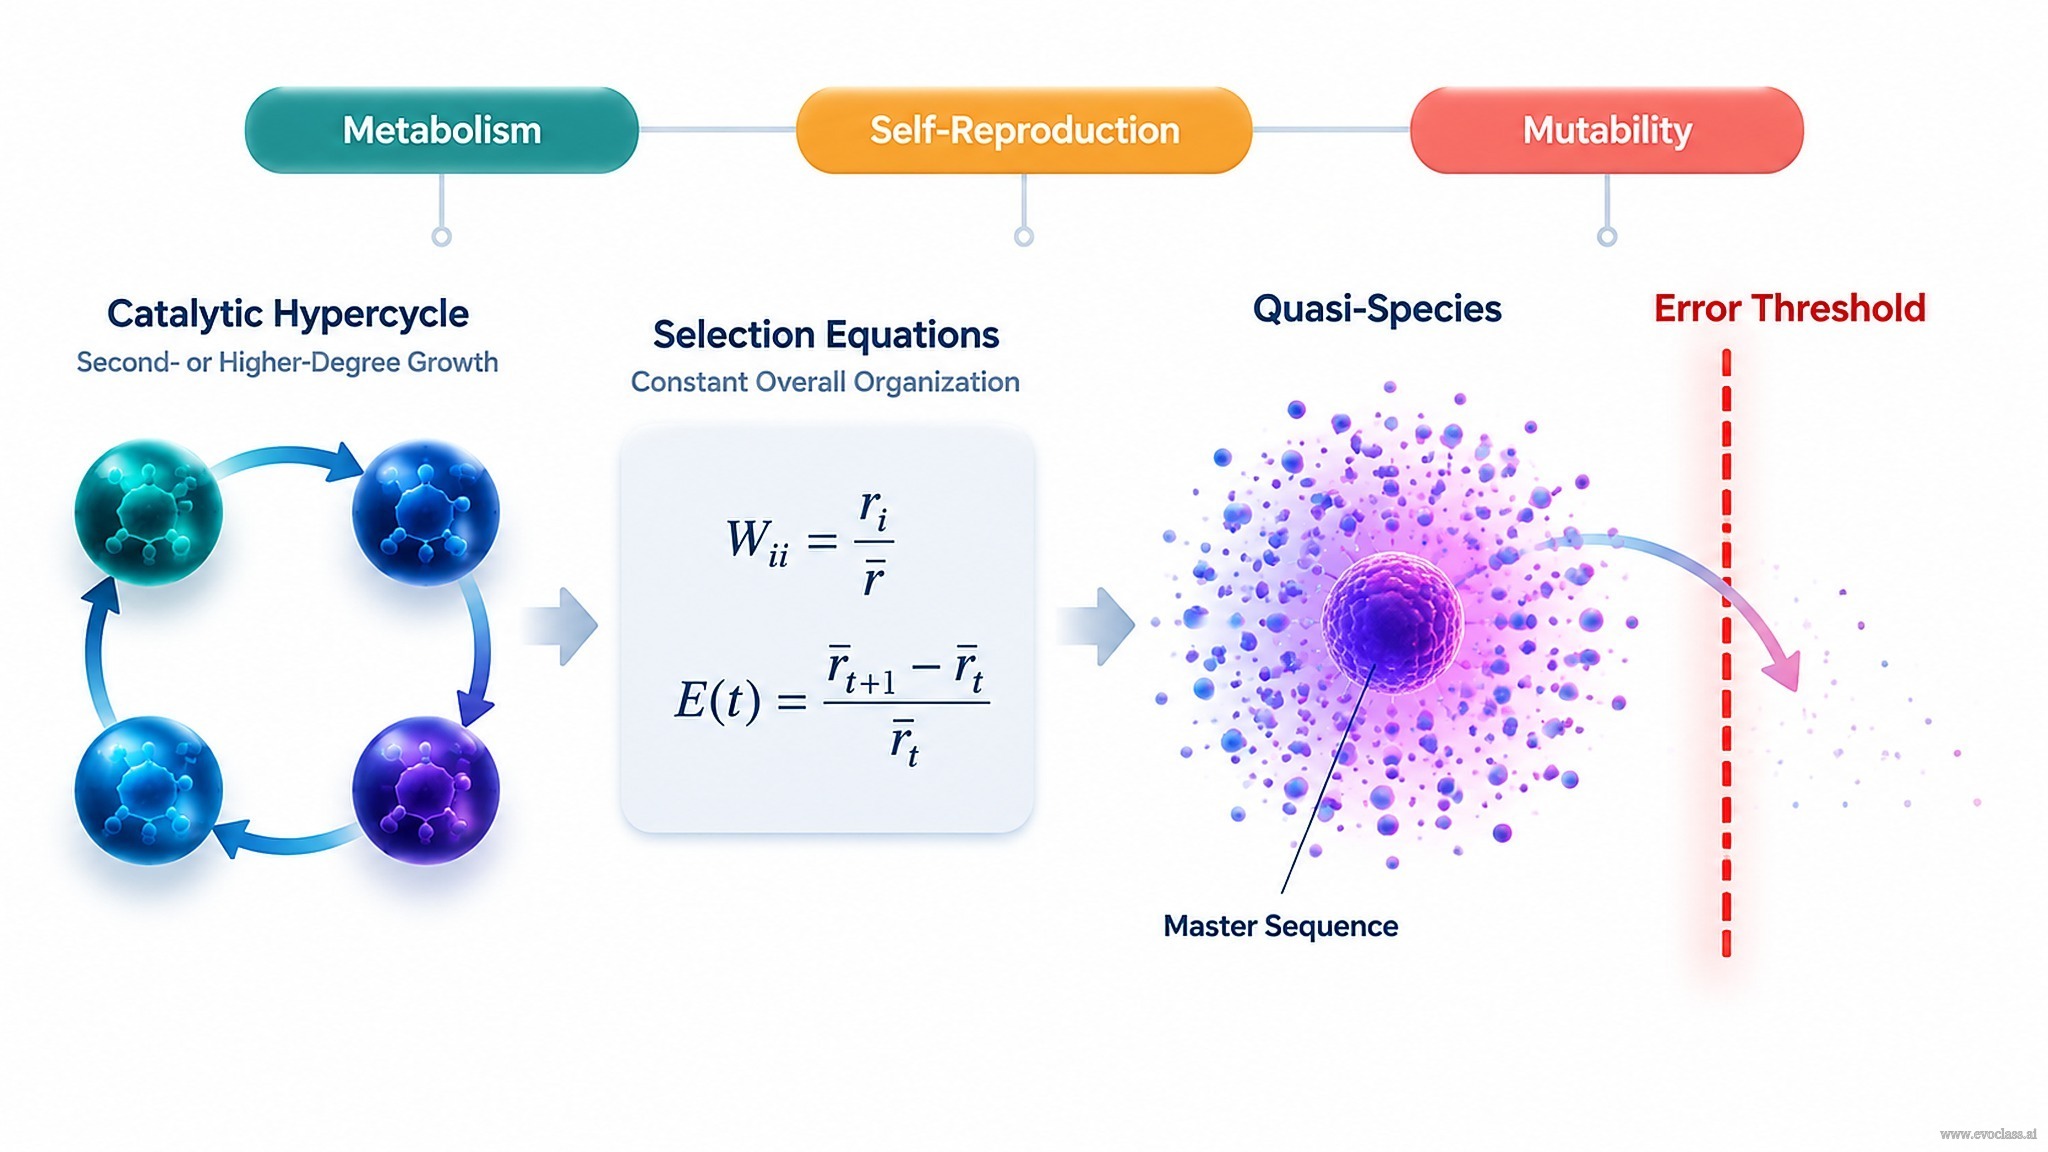
Cette leçon s'ouvre sur une question centrale pour la théorie des origines de la vie : comment un ensemble de molécules auto-réplicatives peut-il générer une sélection moléculaire sans machinerie cellulaire préexistante ? La réponse développée ici est l' hypercycle catalytique : un enchaînement cyclique d'unités auto-réplicatives dans lequel la réplication de chaque unité est catalytiquement soutenue par un autre membre du cycle. Le résultat est une auto-organisation collective, et non une collection de réplicateurs indépendants.
Trois organisations de croissance
- Croissance catalytique simple : un catalyseur externe favorise la réplication d'une matrice, mais le catalyseur n'est pas lui-même produit par la même boucle. La loi de croissance n'est pas auto-amplificatrice.
- Croissance autocatalytique : une molécule catalyse sa propre réplication ou celle de ses semblables. Le taux de croissance contient un terme proportionnel à la puissance première de la concentration du réplicateur — auto-amplification du premier degré.
- Croissance hypercyclique : la réplication est organisée en un cycle fermé A → B → C → ... → A. Comme chaque membre est produit sous la catalyse d'un autre membre, la croissance globale dépend du produit d'au moins deux concentrations. C'est pourquoi les hypercycles catalytiques sont des systèmes de degré deux ou plus.
Cette distinction est importante car seule l'organisation hypercyclique couple l'auto-réplication à une dynamique collective et non linéaire capable de soutenir la sélection au niveau moléculaire.
Prérequis darwiniens
Pour que la sélection moléculaire se produise, trois conditions doivent être remplies :
- Métabolisme : une source d'énergie libre et de matière pour maintenir l'état organisé hors d'équilibre.
- Auto-reproduction : la capacité des unités à se multiplier, afin que les variants avantageux puissent augmenter en nombre.
- Mutabilité : une variation héréditaire, sans laquelle il n'existe aucun substrat pour la sélection.
Ces trois prérequis sont des conditions aux limites : ils ne spécifient pas à eux seuls la dynamique quantitative, mais ils définissent le domaine dans lequel une description darwinienne a un sens.
Équations de sélection sous organisation globale constante
Lorsque la concentration totale de réplicateurs est maintenue constante, les fréquences
Ici Wii est la valeur sélective du type de réplicateur i, intégrant ses taux de réplication et de dégradation. E(t) est la productivité excédentaire moyenne, la moyenne pondérée par la population des valeurs sélectives. Un type augmente en fréquence lorsque son W_ii dépasse E(t) et diminue lorsqu'il passe en dessous de E(t). La condition d'organisation constante fait de la sélection une comparaison relative plutôt qu'une course à la croissance absolue.
Équilibre mutation-sélection et quasi-espèces
La réplication réelle est sujette aux erreurs. L'équilibre mutation-sélection ne produit pas une séquence de type sauvage unique et dominante ; il engendre plutôt une quasi-espèce : une distribution organisée de séquences mutantes centrée sur une séquence maîtresse. Le type sauvage est donc le membre le plus probable d'un nuage de séquences apparentées, et non la cible unique de la sélection. La distribution est stable lorsque l'avantage sélectif de la séquence maîtresse équilibre le flux mutationnel qui l'en éloigne.
Le seuil d'erreur
La quasi-espèce ne peut persister que si le taux de mutation par réplication est suffisamment faible. Au-delà du seuil d'erreur, la séquence maîtresse ne peut plus transmettre son information de manière fiable, le nuage de mutants se délocalise et la distribution organisée s'effondre en un état randomisé par les mutations. Cela limite la quantité d'information qu'un hypercycle ou une quasi-espèce peut maintenir de manière reproductible. La feuille de route d'ouverture — cycle catalytique → équations de sélection → quasi-espèces → seuil d'erreur — relie ainsi l'auto-organisation moléculaire au plafond informationnel fondamental de l'évolution darwinienne au niveau moléculaire.
Feuille de route de l'hypercycle catalytiqueUn hypercycle catalytique fermé mène aux équations de sélection avec la valeur sélective Wᵢᵢ et la productivité excédentaire moyenne E(t), puis au nuage de quasi-espèces et à la barrière du seuil d'erreur. Les trois prérequis darwiniens — métabolisme, auto-reproduction et mutabilité — encadrent la transition de l'auto-organisation moléculaire vers la sélection moléculaire.