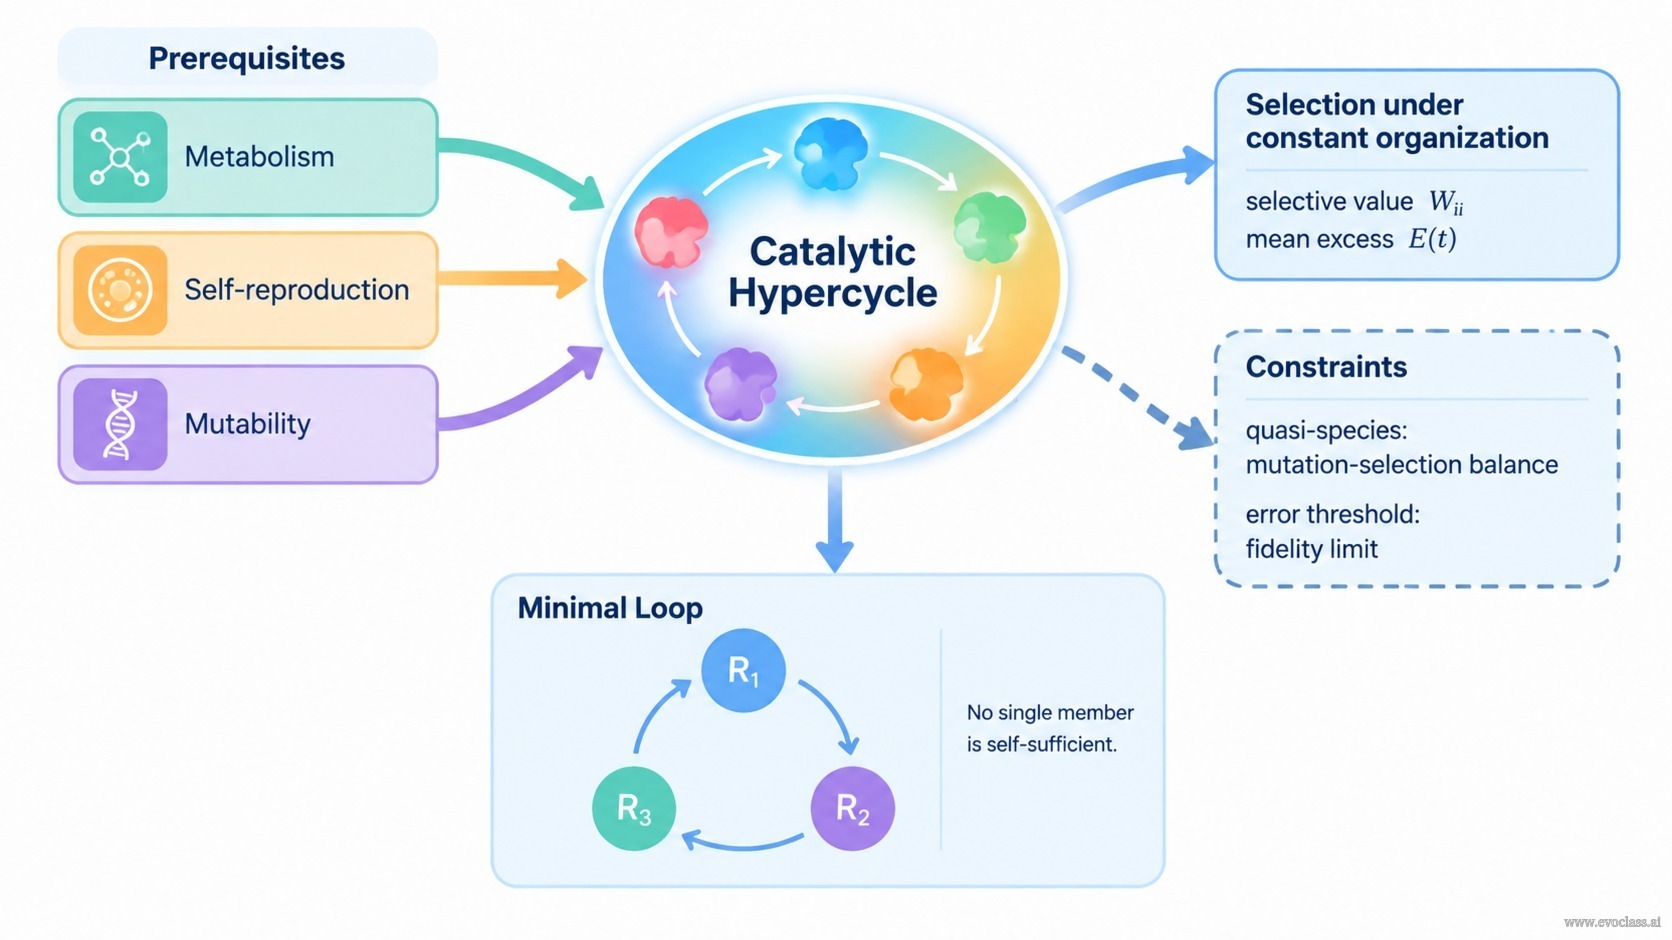
Les hypercycles catalytiques sont la réalisation moléculaire d'un système darwinien : un cycle fermé d'unités auto-réplicatives dans lequel chaque membre accélère catalytiquement la reproduction du suivant. Comme chaque unité dépend d'un partenaire en aval, l'entité qui se reproduit n'est pas une molécule isolée mais la boucle elle-même, qui se reproduit collectivement et peut donc être traitée comme un réplicateur d'ordre supérieur.
Pourquoi un cycle de réplicateurs constitue un système darwinien
L'évolution moléculaire n'est pas automatique. Elle exige que trois conditions soient réunies simultanément, et l'hypercycle est intéressant précisément parce qu'il les fournit toutes les trois grâce à un seul dispositif structurel : la boucle catalytique fermée.
- Métabolisme : le système doit capter de l'énergie libre et de la matière pour alimenter la synthèse de ses propres composants. Dans un hypercycle, le produit catalytique de chaque membre nourrit le travail de synthèse d'un autre membre, de sorte que la boucle maintient un renouvellement interne de matière et d'énergie.
- Auto-reproduction : le système doit produire des copies de lui-même. Ici, l'unité de reproduction est le cycle, et non la molécule isolée : chaque membre renforce la réplication du suivant, de sorte que la boucle dans son ensemble s'auto-reproduit collectivement, tandis que les membres individuels ne sont pas autosuffisants.
- Mutabilité : les matrices doivent être copiées avec des erreurs occasionnelles, générant une variation héréditaire. Sans variation de séquence, la sélection n'a rien sur quoi agir, et le cycle serait un état stationnaire chimique plutôt qu'un système en évolution.
Un hypercycle satisfait donc simultanément les conditions préalables de métabolisme, d'auto-reproduction et de mutabilité, et il est, en ce sens précis, un système darwinien au niveau moléculaire.
Sélection sous organisation globale constante
Pour décrire comment un tel système est sélectionné, le cycle est placé dans un régime d'organisation globale constante : la concentration totale de réplicateurs est maintenue fixe, de sorte que la compétition s'exprime comme une redistribution des parts plutôt que comme une croissance illimitée. Chaque variant i se voit alors attribuer une valeur sélective Wii, son avantage net de réplication, et la dynamique prend la forme familière
Deux caractéristiques de cette paire d'équations importent pour l'hypercycle. Premièrement, Wii est l'avantage net du variant i, de sorte qu'un mutant bénéficiant d'un meilleur soutien catalytique de son partenaire hypercyclique acquiert un W plus grandii sans aucun changement de l'environnement. Deuxièmement, E(t) est la productivité excédentaire moyenne, la moyenne de population des valeurs sélectives ; elle est soustraite de manière identique à chaque variant et c'est exactement ce qui maintient la concentration totale constante. Comme E(t) est une moyenne de population, elle augmente à mesure que les variants initialement les plus aptes se propagent, et l'avantage de croissance de ces variants s'érode progressivement jusqu'à ce que la distribution devienne stationnaire.
La véritable cible de la sélection est la quasi-espèce
La sélection n'agit pas sur une seule meilleure séquence. La mutation convertit continuellement les variants les uns en les autres, et l'équilibre mutation-sélection produit une distribution organisée stable de séquences centrée sur un type dominant : la quasi-espèce. L'organisation hypercyclique ajoute une couche supplémentaire de couplage collectif, car les unités couplées ne sont pas des séquences individuelles mais des quasi-espèces entières, chacune fournissant un soutien catalytique à la suivante. Le modèle passe donc de la quasi-espèce comme unité de sélection moléculaire à l'hypercycle comme unité de sélection de second degré ou d'un degré supérieur.
Le seuil d'erreur n'est pas contourné
L'organisation collective n'assouplit pas l'exigence de fidélité qui contraint tout réplicateur. Le maintien reproductible de l'information exige que la fidélité de copie soit élevée par rapport à la quantité d'information stockée : au-delà d'un taux de mutation critique, le nuage de mutants s'élargit sans limite et la distribution organisée se dissout. Cette même condition s'applique à chaque membre du cycle, et comme les membres dépendent catalytiquement les uns des autres, leur perte d'information est coopérative. L'hypercycle hérite du seuil d'erreur de ses composants ; il n'y échappe pas.
Carte conceptuelle de l'hypercycleAu centre se trouve l'hypercycle catalytique, un enchaînement fermé d'unités auto-réplicatives. Trois encadrés de conditions préalables (métabolisme, auto-reproduction, mutabilité) fournissent les conditions du comportement darwinien, un encadré à droite rassemble les équations de sélection de l'organisation globale constante — valeur sélective Wᵢᵢ et productivité excédentaire moyenne E(t) — et un encadré en pointillés marque la quasi-espèce et le seuil d'erreur qui limitent la quantité d'information pouvant être maintenue. Le panneau inférieur montre la boucle minimale R 1 → R 2 → R 3 → R 1, dans laquelle chaque unité catalyse la suivante et aucun membre n'est autosuffisant.