L'information moléculaire n'est pas préservée automatiquement. La réplication, la mutation, le couplage catalytique et l'avantage sélectif sont des propriétés spécifiées de systèmes chimiques particuliers, et non des attributs globaux d'une matière quelconque. Une fois qu'un système réplicatif existe, sa capacité à conserver une séquence porteuse de sens dépend d'un équilibre quantitatif : les erreurs introduites lors de la copie doivent être tolérées par l'avantage sélectif dont bénéficie la séquence porteuse de sens sur son nuage de mutants.
Pour une séquence maîtresse de longueur vₘ, une fidélité moyenne par symbole q̄ₘ et un avantage sélectif σₘ sur le mutant moyen, la condition de maintien est
q̄ₘvₘ · σₘ > 1
Ici, q̄ₘvₘ est la probabilité qu'une copie entière soit exempte d'erreur, et elle décroît exponentiellement à mesure que vₘ augmente. Le facteur σₘ est la marge sélective qui tolère les copies erronées néanmoins conservées. Le seuil d'erreur est la frontière q̄ₘvₘ · σₘ = 1.
Lire la relation de seuil
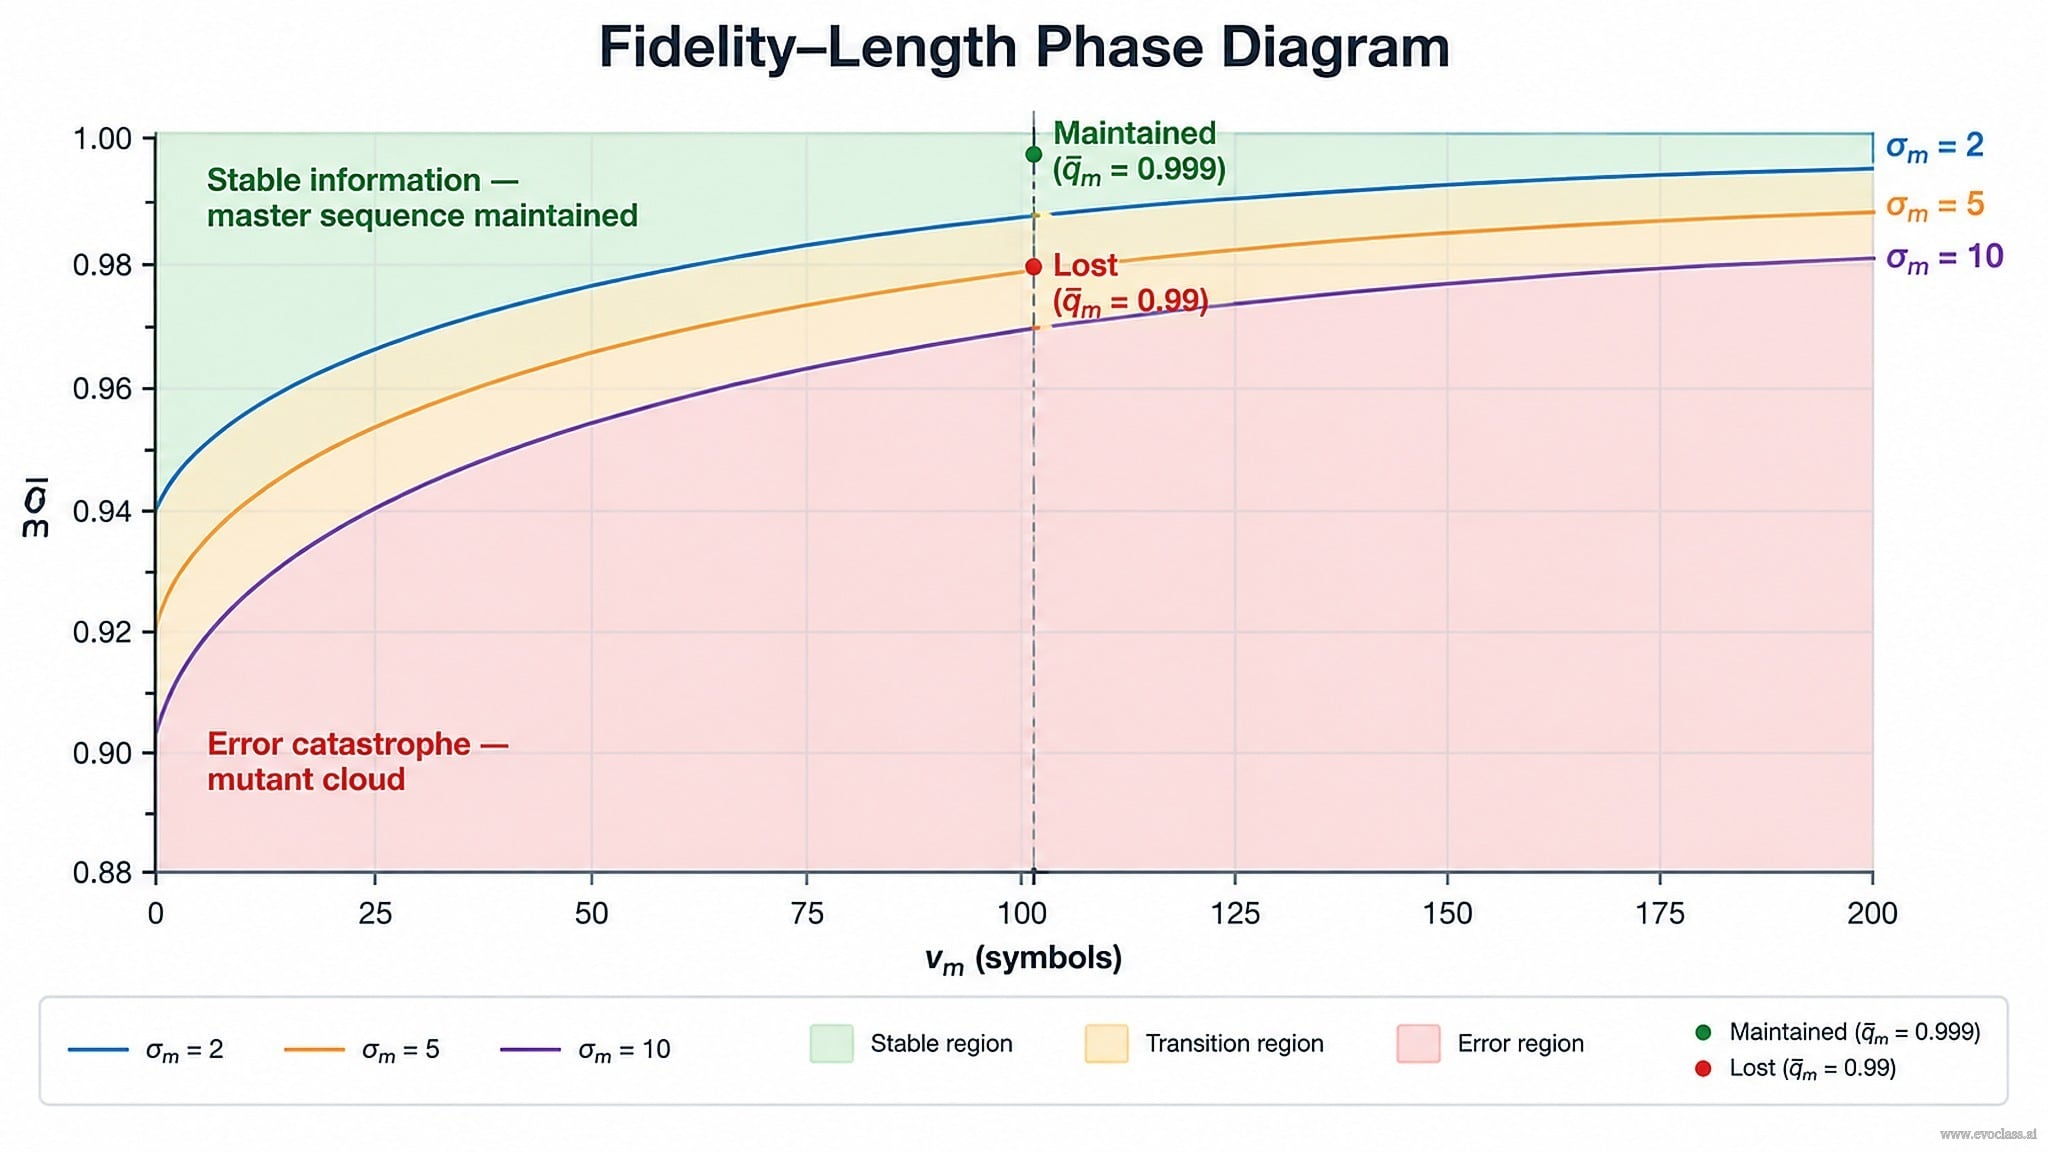
Réarrangée, la frontière s'écrit q̄ₘ > σₘ−1/vₘ. La fidélité, la longueur et l'avantage sélectif sont donc conjointement déterminants : aucun d'eux ne peut être choisi indépendamment des deux autres.
- Fidélité moyenne q̄ₘ — la probabilité moyenne de copier correctement un symbole.
- Longueur de séquence vₘ — le nombre de symboles qui doivent tous être copiés correctement.
- Avantage sélectif σₘ — à quel point la séquence maîtresse se réplique plus vite que le membre moyen de son nuage de mutants.
Au-dessus et en dessous du seuil
Au-dessus du seuil, la sélection localise la population autour de la séquence porteuse de sens : un pic de quasi-espèce stable est maintenu, et la plupart des individus descendent encore de la séquence maîtresse. En dessous du seuil, la séquence maîtresse ne peut plus être distinguée de ses mutants ; la population se délocalise en une large distribution de mutants et l'information encodée est perdue — c'est la catastrophe d'erreur.
La transition est de type transition de phase. Elle sépare un état ordonné, porteur d'information, d'un nuage de mutants désordonné, plutôt que de décrire un déclin progressif.
Pourquoi longueur et avantage se compensent
Parce que q̄ₘvₘ est exponentiel en vₘ, les séquences plus longues exigent une fidélité exponentiellement plus élevée. Un σₘ plus grand permet au contraire une vₘ plus longue ou une q̄ₘ plus faible. Ce compromis contraint la longueur des premiers réplicateurs : avec une fidélité prébiotique réaliste, seules de courtes séquences pouvaient être maintenues, ce qui motive une organisation de niveau supérieur telle que les hypercycles, où plusieurs réplicateurs courts sont liés en un réseau sélectionné conjointement.
Exemple détaillé
Prenons vₘ = 100 et σₘ = 2. Avec q̄ₘ = 0,99, q̄ₘvₘ ≈ 0,366 et σₘ · q̄ₘvₘ ≈
Hypothèses et limites
Le seuil classique suppose de grandes populations, une organisation constante et un paysage de fitness à pic unique. Les populations finies, la neutralité, les mutations compensatoires et les paysages accidentés estompent la transition mais n'éliminent pas la contrainte sous-jacente.
Diagramme de phase fidélité–longueurCourbes de seuil q̄ₘ = σₘ^(−1/vₘ) pour σₘ = 2, 5 et 10, tracées en fonction de la longueur de séquence vₘ. Au-dessus d'une courbe, la sélection localise la population sur la séquence maîtresse ; en dessous, la population se délocalise en un large nuage de mutants. Un σₘ plus grand abaisse la fidélité nécessaire à une longueur donnée, et les deux points marqués à vₘ = 100 montrent comment le passage de q̄ₘ = 0,99 (perdue) à 0,999 (maintenue) franchit la frontière.