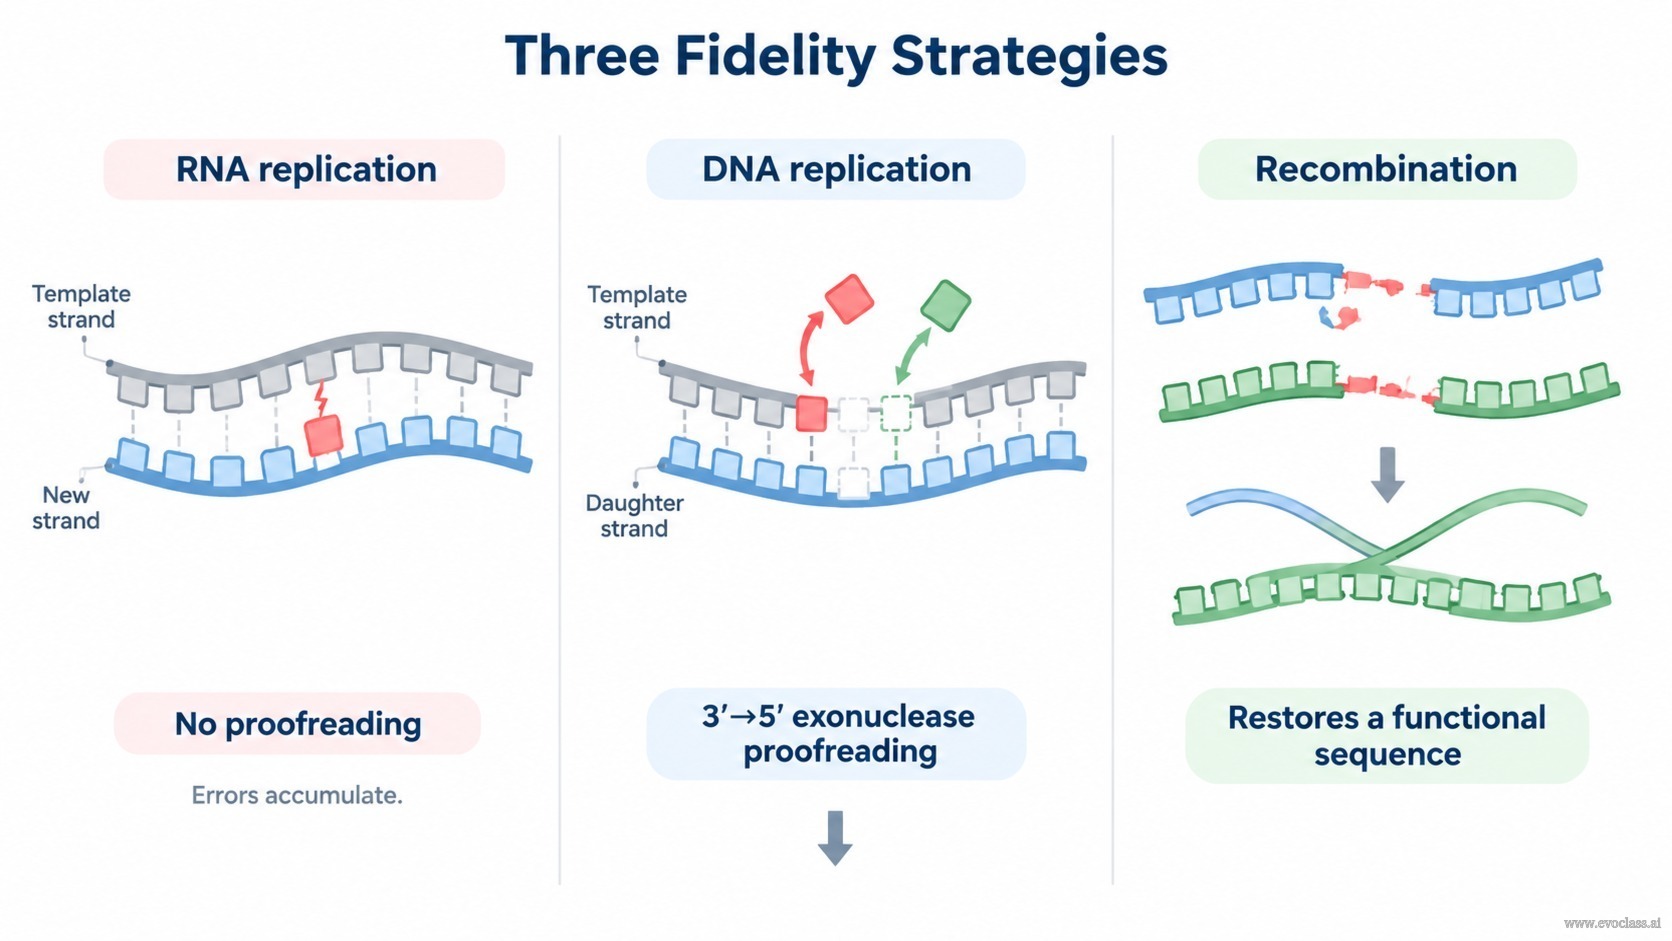
Trois stratégies distinctes déterminent la quantité d'information qu'un réplicateur peut conserver : la fidélité intrinsèque de la réplication de l'ARN, la relecture par exonucléase ajoutée par la réplication de l'ADN, et la recombinaison, qui modifie l'information au niveau des matrices et des populations plutôt qu'à celui de paires de bases isolées. Ensemble, elles fixent le taux de mutation effectif — et donc l'emplacement du seuil d'erreur et la stabilité qu'une quasi-espèce peut maintenir.
Réplication de l'ARN : une copie rapide sans relecture
Les ARN réplicases allongent généralement un brin en cours de synthèse sans domaine exonucléase 3′→5′. Un nucléotide mal incorporé n'est donc ni reconnu ni retiré : la réplication est une étape de synthèse unique et non corrective, et l'erreur est transmise au brin fils. Il en résulte un taux d'erreur élevé par base, de l'ordre d'une erreur pour 10⁴ bases copiées. Comme la fraction de descendants exempts d'erreur décroît à mesure que la longueur du génome augmente, les longs génomes ne peuvent être maintenus : les génomes d'ARN restent compacts et se situent près du seuil d'erreur. Les expériences de mutagénèse du phage Qβ illustrent ce régime : au lieu d'une séquence sauvage unique et nette, la population apparaît comme un large nuage de mutants réparti autour d'une séquence maîtresse.
Réplication de l'ADN : la relecture permet de gagner en longueur de génome
Les ADN polymérases possèdent généralement une activité exonucléase 3′→5′ qui inspecte l'extrémité 3′ nouvellement ajoutée. Lorsqu'elle détecte un mésappariement, l'enzyme inverse sa direction et hydrolyse le nucléotide incorrect avant la reprise de l'extension : l'erreur est donc supprimée et la bonne base est insérée. La relecture, superposée à la sélectivité d'appariement des bases, abaisse le taux d'erreur de deux à trois ordres de grandeur. En termes de seuil d'erreur, une précision par base q plus élevée augmente le plus grand génome que la sélection peut maintenir : avec νmax ≈ ln σm ⁄ (1 − q), un taux d'erreur plus faible (1 − q) relâche la contrainte et autorise des génomes plus grands à transmission stable. Les mutants exonucléase de l'ADN polymérase, qui perdent la relecture, montrent exactement l'augmentation prédite du taux de mutation et une taille de génome effective réduite.
Recombinaison : réparation et réassortiment au niveau des matrices
La recombinaison n'améliore pas l'appariement des bases au site actif de la polymérase. Elle agit plutôt sur les matrices et les populations. La recombinaison homologue peut reconstruire une séquence intacte à partir de deux matrices endommagées différemment ; le changement de matrice peut sauver une copie bloquée ou chargée d'erreurs ; et le réassortiment peut combiner des variants bénéfiques au sein d'un même fond génétique tout en éliminant les variants délétères. Son bénéfice dépend de la co-infection, de l'homologie disponible et de la force de la sélection : du point de vue des quasi-espèces, la recombinaison modifie donc la charge mutationnelle effective et l'équilibre mutation-sélection au niveau populationnel, plutôt que le taux d'erreur par base lui-même.
Seuil d'erreur et conséquences pour les quasi-espèces
Le taux d'erreur élevé de l'ARN limite νmax et maintient les populations près du seuil d'erreur ; la relecture de l'ADN abaisse le taux d'erreur et relâche cette contrainte ; la recombinaison peut réduire la charge mutationnelle effective ou régénérer des séquences adaptées, modifiant la distribution des variants sur lesquels agit la sélection. Le principe comparatif en découle directement : la fidélité de l'ARN favorise une variation rapide et une information compacte, la relecture de l'ADN favorise l'expansion du génome et une transmission stable, et la recombinaison favorise la réparation au niveau populationnel et l'innovation modulaire. Ce sont des stratégies complémentaires, et non mutuellement exclusives, que les réplicateurs réels combinent à des degrés divers.
Principe comparatif. Fidélité de l'ARN : variation rapide, génomes compacts, charge d'erreurs élevée. Relecture de l'ADN : taux d'erreur inférieur de plusieurs ordres de grandeur, νmax augmenté, grands génomes transmis de façon stable. Recombinaison : aucune modification de la précision d'appariement des bases, mais réparation au niveau populationnel, réassortiment et élimination des variants délétères.
Trois stratégies de fidélitéÀ gauche : la réplication de l'ARN insère une base mésappariée et, faute de relecture, la laisse dans le brin fils, si bien que le taux d'erreur par base reste élevé. Au centre : l'exonucléase 3′→5′ d'une ADN polymérase excise le nucléotide 3′ mésapparié et insère le bon, abaissant le taux d'erreur de plusieurs ordres de grandeur. À droite : la recombinaison joint deux matrices endommagées différemment pour restaurer une séquence fonctionnelle, réparant l'information au niveau de la population plutôt qu'à celui d'une paire de bases.