Les diapositives précédentes ont établi un plafond absolu : pour une précision de copie q̄ₘ et un avantage sélectif σₘ donnés, seules les séquences plus courtes que vₘₐₓ peuvent être maintenues comme information stable. Ce plafond n'est pas une simple note technique : il détermine comment plusieurs fonctions catalytiques précoces ont pu être réunies au sein d'un même système en évolution.
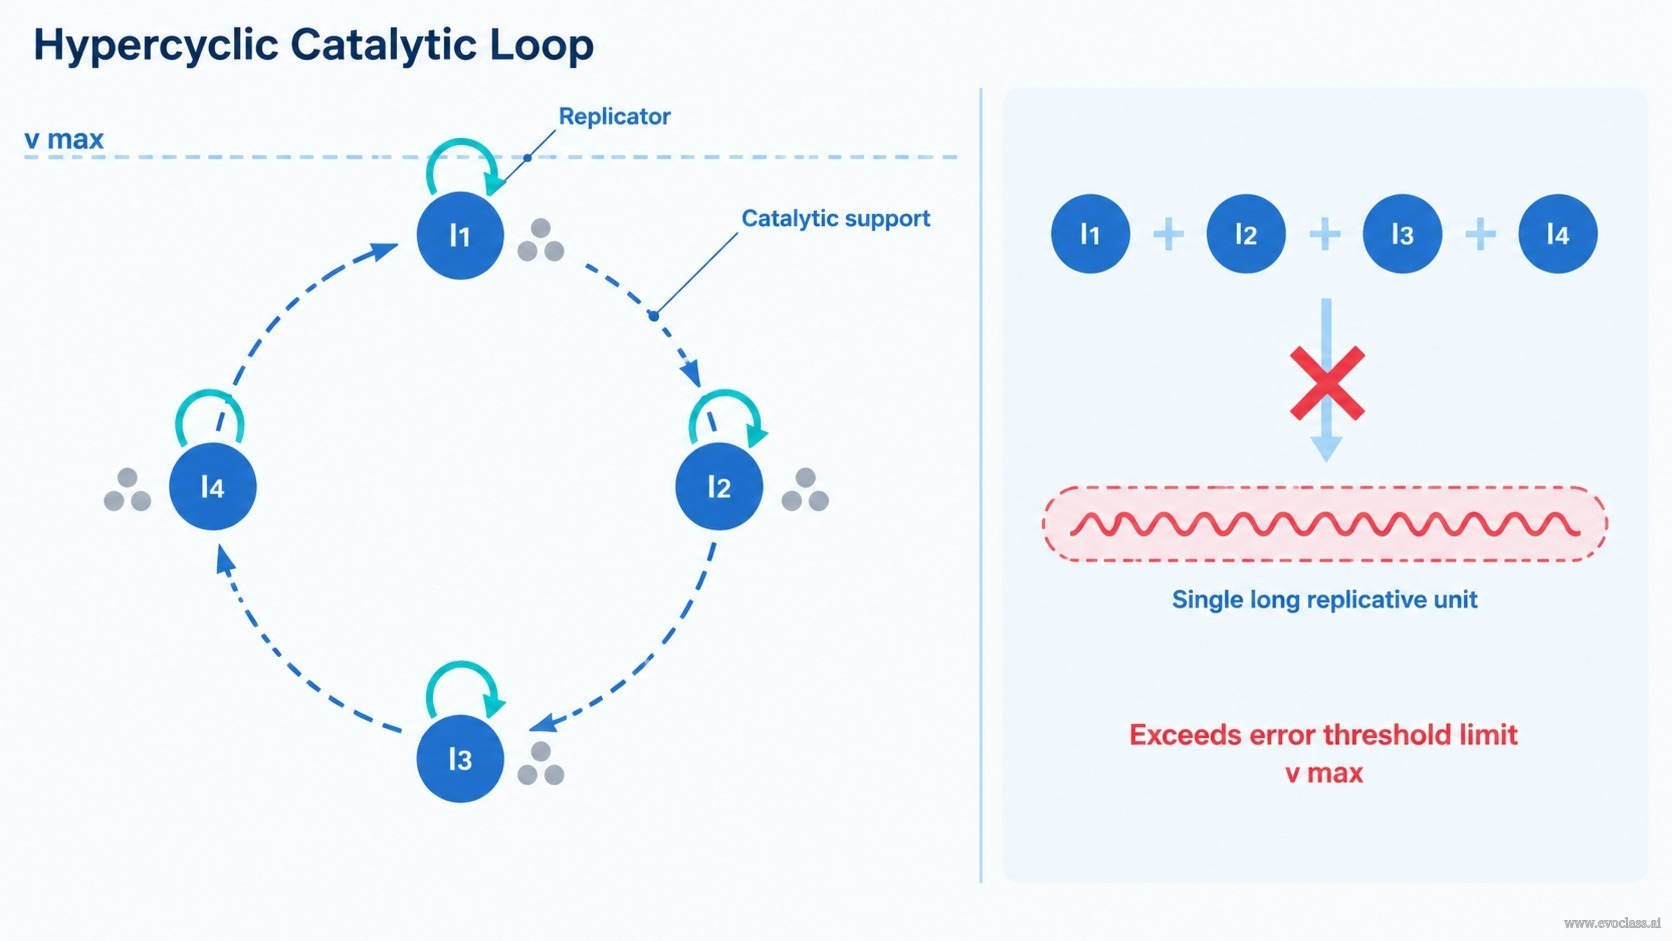
L'impasse de la ligation. La démarche évidente consiste à assembler les fonctions requises bout à bout en une seule unité réplicative. La ligation est exclue par la relation de seuil elle-même. Un brin fusionné a une longueur à peu près égale à la somme de ses parties, tandis que la précision de copie du système reste inchangée : la séquence fusionnée dépasse donc vₘₐₓ et sa séquence maîtresse se délocalise dans la distribution de mutants environnante. Le génome fusionné détruit précisément l'information qu'il était censé protéger.
Ce que l'intégration doit préserver
Une deuxième condition est facile à négliger : chaque unité participante doit rester compétitive vis-à-vis de ses propres mutants. La sélection est le seul processus qui empêche une information spécifique de se dissoudre dans le nuage de mutants. Si une unité est enfouie dans une entité plus grande dont la valeur sélective est moyennée sur de nombreuses fonctions, sa propre séquence n'est plus soumise à la pression sélective et son information est perdue. L'intégration doit donc être fonctionnelle plutôt que structurelle : elle doit coupler les unités sans diluer leurs avantages sélectifs individuels.
L'hypercycle comme solution minimale
Un hypercycle est une boucle catalytique fermée. Chaque réplicateur renforce la réplication du suivant, I1 → I2 → I3 → I4 → I1, et le renforcement revient à son point de départ. Trois conséquences en découlent :
- L'information reste répartie. Chaque fonction est portée par une molécule courte, de sorte qu'aucune unité n'a à dépasser le seuil d'erreur.
- L'identité compétitive est préservée. Chaque unité conserve sa propre réplication et sa propre pression sélective face à son nuage de mutants, de sorte que son information spécifique peut encore être maintenue et améliorée.
- Le niveau de sélection se déplace. L'entité qui se reproduit et qui est sélectionnée est le cycle dans son ensemble : un système intégré unique qui remplit plusieurs fonctions à la fois, sans qu'aucune molécule ne les porte toutes.
Critères d'évaluation de toute intégration proposée
Quel que soit le mécanisme proposé, trois conditions déterminent s'il peut fonctionner : chaque unité doit rester en dessous de la longueur maximale stable fixée par le seuil d'erreur ; chaque unité doit conserver un avantage sélectif sur ses propres mutants ; et le couplage doit être fermé et cyclique, de sorte que l'ensemble couplé se reproduise comme une unité intégrée. La ligation échoue à la première condition. La coexistence lâche et non catalytique échoue à la troisième : des réplicateurs indépendants qui partagent simplement un compartiment ne se reproduisent pas comme un système intégré unique.
Pourquoi la solution ne clôt pas le débat
L'organisation hypercyclique résout le problème de l'intégration, mais elle crée une nouvelle vulnérabilité. Comme la boucle soutient ses membres par catalyse, un réplicateur qui accepte le soutien sans le rendre — un parasite interne — peut se propager et éroder le cycle. Il s'agit d'une limitation ultérieure du mécanisme, et non d'un argument contre lui : l'exigence est que l'intégration reste cyclique et contrôlée, et non qu'elle soit à l'épreuve des parasites dès le départ.
Boucle catalytique hypercycliqueUn hypercycle relie des réplicateurs distincts au sein d'une boucle catalytique fermée (I 1 →I 2 →I 3 →I 4 →I 1), où chaque unité soutient la réplication de la suivante. Comme chaque unité reste en dessous de la longueur maximale stable vₘₐₓ et conserve sa propre compétition avec son nuage de mutants, plusieurs fonctions sont intégrées sans le coût en longueur qui rend instable la ligation en un seul long brin.