Limites de l'organisation hypercyclique et dynamique des parasites
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00
L'organisation hypercyclique peut intégrer plusieurs unités catalytiques en un seul réseau auto-reproducteur, mais cette intégration est limitée. Sous une dynamique d'action de masse à organisation constante, un hypercycle subit simultanément deux pressions distinctes : les parasites auto-reproducteurs qui captent la catalyse sans la restituer, et la charge mutationnelle combinatoire qui gonfle rapidement à mesure que le génome s'allonge. Ensemble, ces facteurs définissent une limite centrale de l'organisation hypercyclique.
Les parasites sur le simplexe de concentration
Considérons un système à deux composants dans lequel un parasite et un membre du cycle x partagent une concentration totale . Le parasite se reproduit de façon autocatalytique (constante de vitesse ) et est entretenu par la catalyse fournie par le cycle, tandis que le membre x est reproduit par le couplage . La dynamique à organisation constante (T.13.8) s'écrit :
Le signe de ẋ sépare deux régimes au seuil : pour le membre croît et le parasite est contenu ; pour le membre décroît et le parasite envahit. C'est l'énoncé quantitatif expliquant pourquoi un parasite auto-reproducteur peut déstabiliser un hypercycle.
États aux sommets et états intérieurs
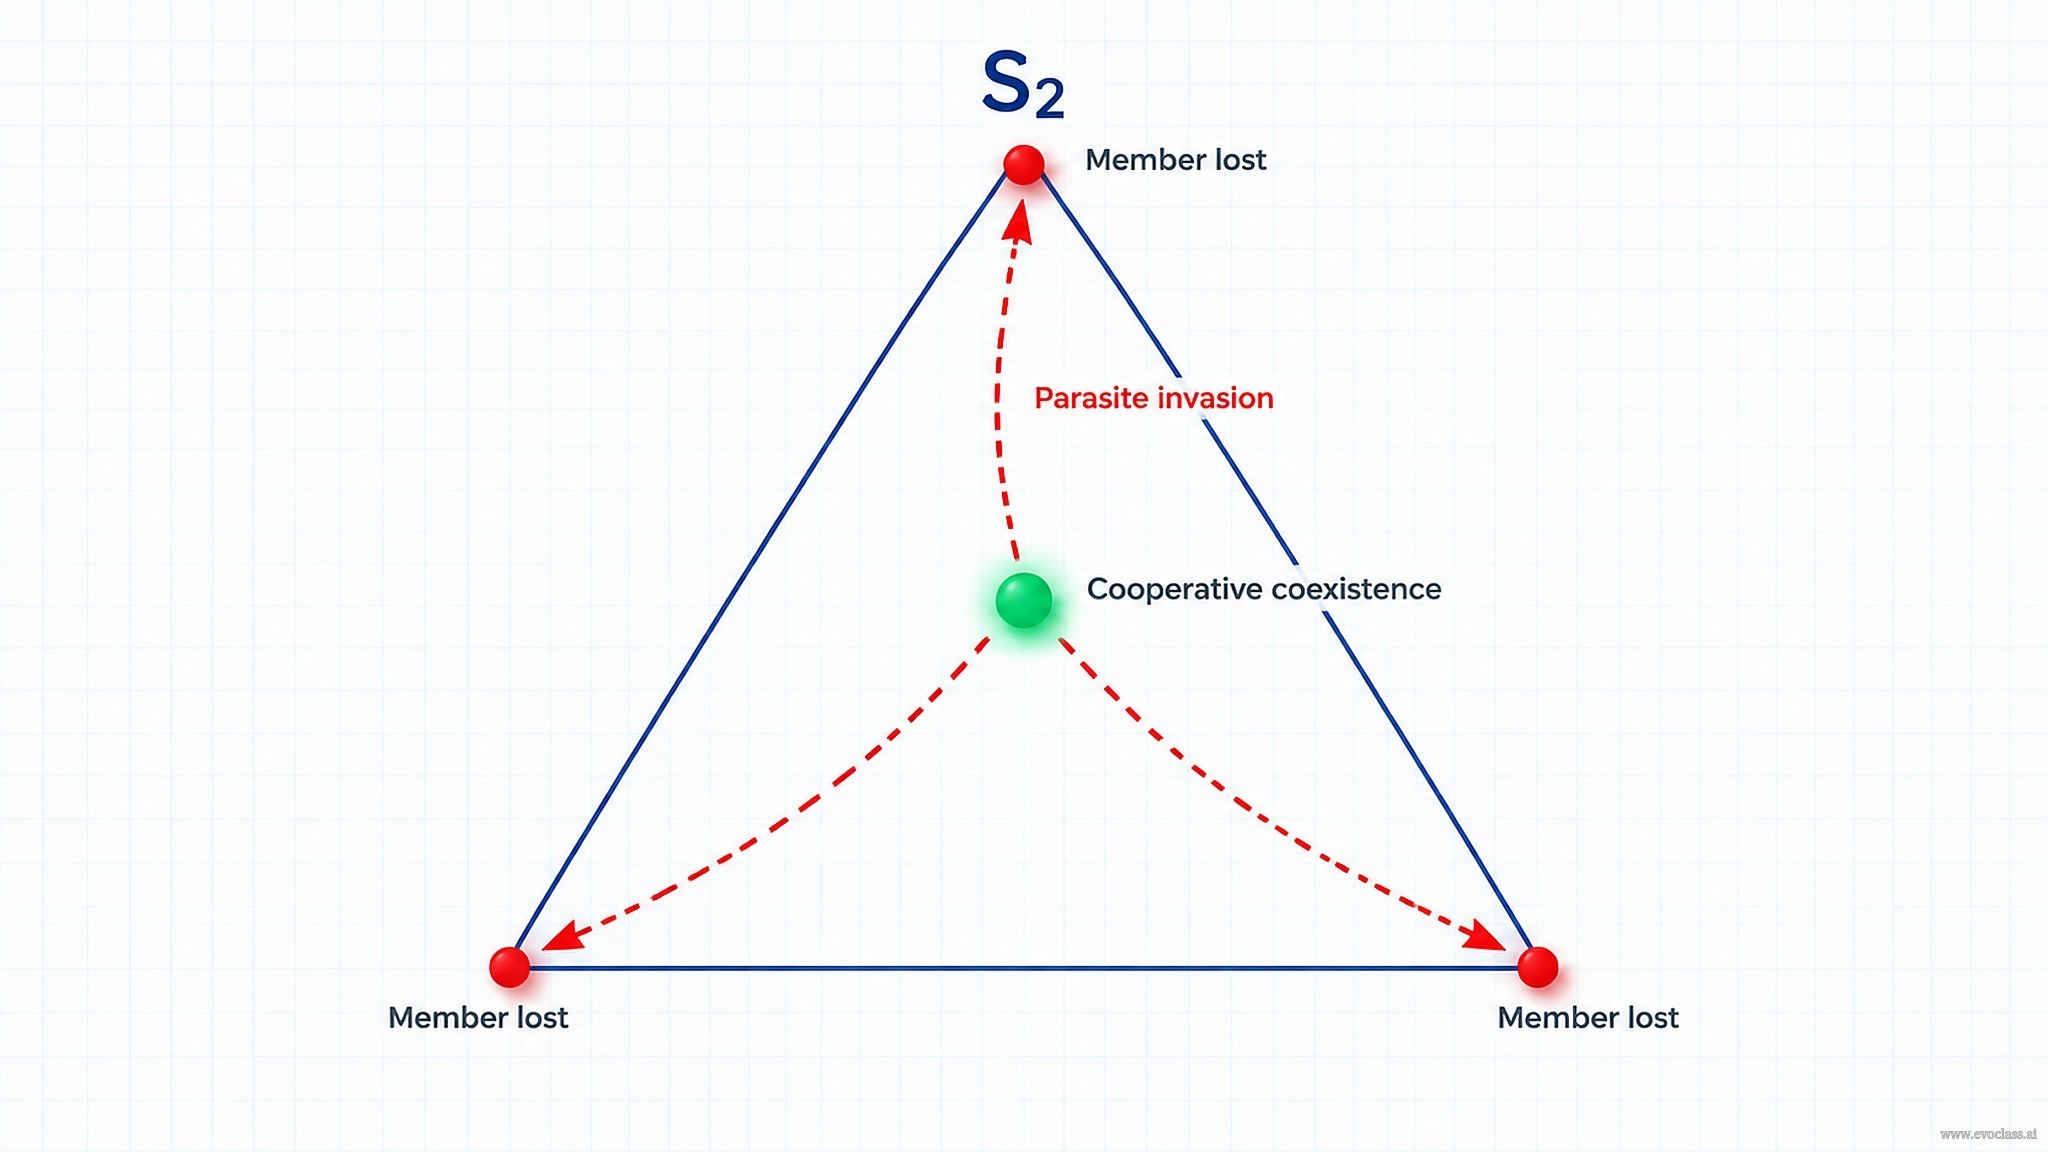
Un hypercycle admet des points fixes sur les sommets du simplexe de concentration, chacun correspondant à la perte d'un composant, ainsi qu'un état intérieur représentant la coexistence coopérative de tous les membres. L'intérieur est productif mais fragile : c'est la région depuis laquelle l'invasion parasitaire peut pousser la trajectoire vers la frontière, où un membre est définitivement perdu.
La croissance du génome est combinatoirement coûteuse
L'allongement du génome augmente fortement la charge mutationnelle. Pour une séquence de longueur 100, il existe = (100 choisir k) mutants à k erreurs : 100 mutants à une erreur, 4 950 mutants à deux erreurs, 161 700 mutants à trois erreurs, etc. Lorsque n de ces mutants sont présents avec n ≪ , le nombre de leurs combinaisons croît comme ( choisir n) ≈ ⁿ / n!. C'est pourquoi un génome unique en croissance régulière est désavantagé par rapport à l'organisation hypercyclique de gènes mutants individuels : la coopération répartit la fonction catalytique de sorte qu'aucune séquence longue unique ne doive absorber toute la charge mutationnelle.
Pourquoi la structure compte
Ces limites sont dérivées sous les hypothèses d'une sélection bien mélangée à organisation constante. Sans structure spatiale ou compartimentale supplémentaire, les hypercycles plus grands subissent une pression parasitaire et mutationnelle croissante, et l'état coopératif intérieur ne peut être maintenu indéfiniment.
Simplexe avec invasion parasitaire
Un simplexe de concentration triangulaire S 2 dont les points fixes de sommet rouges marquent la perte de membres individuels de l'hypercycle, tandis que le point intérieur vert marque la coexistence coopérative. Les flèches rouges en pointillés montrent un parasite auto-reproducteur poussant le système depuis l'intérieur vulnérable vers la frontière.
QUESTION 1
Dans le modèle de l'hypercycle, quelle est la propriété déterminante d'un parasite auto-reproducteur tel que ?
Il catalyse la reproduction de chaque membre de l'hypercycle bien plus efficacement que ces membres ne se catalysent eux-mêmes.
Il augmente le taux global de réplication du cycle et le stabilise donc.
Il reçoit un soutien catalytique de l'hypercycle mais ne restitue aucune catalyse au cycle.
Il ne se reproduit que lorsque la concentration totale c0 est inférieure à .
✅ Correct !
Un parasite se reproduit et bénéficie du soutien catalytique du cycle sans rien restituer : il capte le rendement catalytique du cycle sans y contribuer.
❌ Incorrect
Concentrez-vous sur l'asymétrie : le parasite capte la catalyse mais n'en restitue aucune, ce qui le rend déstabilisant plutôt que soutenant.
QUESTION 2
Sur le simplexe de concentration, que représente un point fixe situé à un sommet ?
La perte d'un ou plusieurs membres de l'hypercycle, de sorte que le système repose sur la frontière plutôt qu'à l'intérieur.
Une coexistence intérieure équilibrée où chaque membre est présent à concentration égale.
Un hypercycle fonctionnant à son taux de réplication maximal possible.
Un état dans lequel les concentrations du parasite et du membre sont exactement égales.
✅ Correct !
Les points fixes de sommet correspondent à la perte d'un composant ; l'intérieur, en revanche, est l'état coopératif où tous les membres coexistent.
❌ Incorrect
Rappelez-vous que les sommets du simplexe sont des états extrêmes où un composant domine et les autres disparaissent — l'opposé d'une coexistence intérieure équilibrée.
QUESTION 3
Dans le modèle à deux composants, est vérifié pour . Que signifie ce régime pour le cycle ?
Le membre du cycle x croît encore, donc le parasite est contenu à faible concentration totale.
Le système saute instantanément vers un équilibre intérieur sans autre changement.
Le parasite supplante x et ramène la concentration du membre à zéro.
La concentration totale c0 décroît vers zéro pour toute condition initiale.
✅ Correct !
Lorsque c0 reste en dessous du seuil le membre conserve une croissance positive, donc le parasite ne domine pas encore. En franchissant au-dessus de change le signe en et le membre est perdu.
❌ Incorrect
Lisez attentivement la condition de signe : en dessous du seuil signifie que le membre y croît encore — l'invasion ne prend le dessus qu'une fois que c0 dépasse .
QUESTION 4
Pour une séquence de longueur 100, combien de mutants distincts à deux erreurs existent ?
100
10 000
4 950
161 700
✅ Correct !
Le décompte est N2 = (100 choisir 2) = 950, le nombre de façons de placer exactement deux erreurs parmi 100 positions.
❌ Incorrect
Utilisez le décompte binomial = (L choisir k). Pour et cela donne 950, et non les totaux à une erreur ou à trois erreurs.
QUESTION 5
Laquelle des propositions suivantes décrit le mieux ce qui est nécessaire pour que des hypercycles plus grands résistent à la pression parasitaire et mutationnelle ?
Supprimer entièrement la sélection à organisation constante.
Une structure spatiale ou compartimentale supplémentaire qui soutient la sélection entre groupes.
S'appuyer uniquement sur une dynamique d'action de masse bien mélangée.
Augmenter simplement la longueur du génome sans aucun changement d'organisation.
✅ Correct !
Ces limites découlent des hypothèses de sélection bien mélangée à organisation constante ; une structure spatiale ou compartimentale supplémentaire fournit un niveau de sélection supérieur capable de contenir les parasites et d'amortir la charge mutationnelle.
❌ Incorrect
Ces limites apparaissent précisément parce que le système est bien mélangé et à organisation constante. Quelle organisation supplémentaire pourrait soulager simultanément les deux pressions ?
Étude de cas : dompter un hypercycle d'ARN auto-répliquant
Lisez le scénario ci-dessous et répondez aux questions.
Un laboratoire modélise un hypercycle d'ARN auto-répliquant constitué de deux membres catalytiques x et y, ainsi que d'un ARN parasite qui est catalytiquement soutenu par le cycle mais ne restitue aucune catalyse. Le système est traité comme bien mélangé avec une organisation totale constante. Les paramètres pertinents sont la constante de couplage des membres k et la constante d'auto-reproduction du parasite , avec une concentration totale . L'équipe rapporte et envisage de faire fonctionner le cycle à deux concentrations totales différentes, et . L'équipe prévoit également d'étendre la longueur du génome catalytique de 100 à 200 résidus afin d'ajouter de nouvelles fonctions.
Q
1. À l'aide de la condition de signe sur ẋ, déterminez ce qui arrive au cycle à et à , et expliquez le résultat à long terme dans chaque cas.
Réponse : Le seuil est . À , qui est inférieur au seuil, , donc le membre x croît encore et le parasite est initialement contenu. À , qui est supérieur au seuil, , donc le membre décroît et le parasite envahit. Comme la dynamique est à organisation constante, augmenter la concentration totale n'est pas un choix neutre : une fois que le système franchit il est poussé vers la frontière et s'établit à un point fixe de sommet où un membre est perdu.
Q
2. L'équipe propose d'allonger le génome catalytique de 100 à 200 résidus. À l'aide des décomptes combinatoires de mutants, expliquez pourquoi cela augmente la charge d'erreurs, et suggérez un changement structurel qui pourrait aider l'hypercycle à résister à la fois à la charge mutationnelle et au parasite.
Réponse : Le nombre de mutants à k erreurs est = (L choisir k). Passer de à double approximativement le décompte à une erreur (de 100 à 200) et augmente fortement le décompte à deux erreurs, de 4 950 à environ 19 900, les décomptes à trois erreurs augmentant encore plus vite. Comme le nombre de combinaisons de ces mutants évolue comme ( choisir n) ≈ ⁿ / n! pour n ≪ , la charge combinatoire croît de manière super-linéaire avec la longueur du génome, de sorte qu'un génome long unique devient progressivement plus difficile à maintenir. Un remède structurel est la compartimentation ou la structure spatiale — par exemple, l'encapsulation des réplicateurs dans des vésicules — qui ajoute un niveau de sélection entre compartiments, ralentit la propagation des parasites et amortit la charge mutationnelle, aidant à préserver l'état coopératif intérieur.
XVI.3. Pourquoi l'organisation hypercyclique de gènes mutants individuels plutôt qu'un génome unique en croissance régulière ? 100 mutants à une erreur, 4 950 mutants à deux erreurs, 161 700 mutants à trois erreurs, etc., soit = (100 sur k) mutants à k erreurs ( sur n) ≈ ! (pour n ≪ ), ce qui conduit à pour et pour . (2) Le parasite est auto-reproducteur (Fig. 43b) : ( x), ( x) (T.13.8) Le système possède deux points fixes aux sommets de :