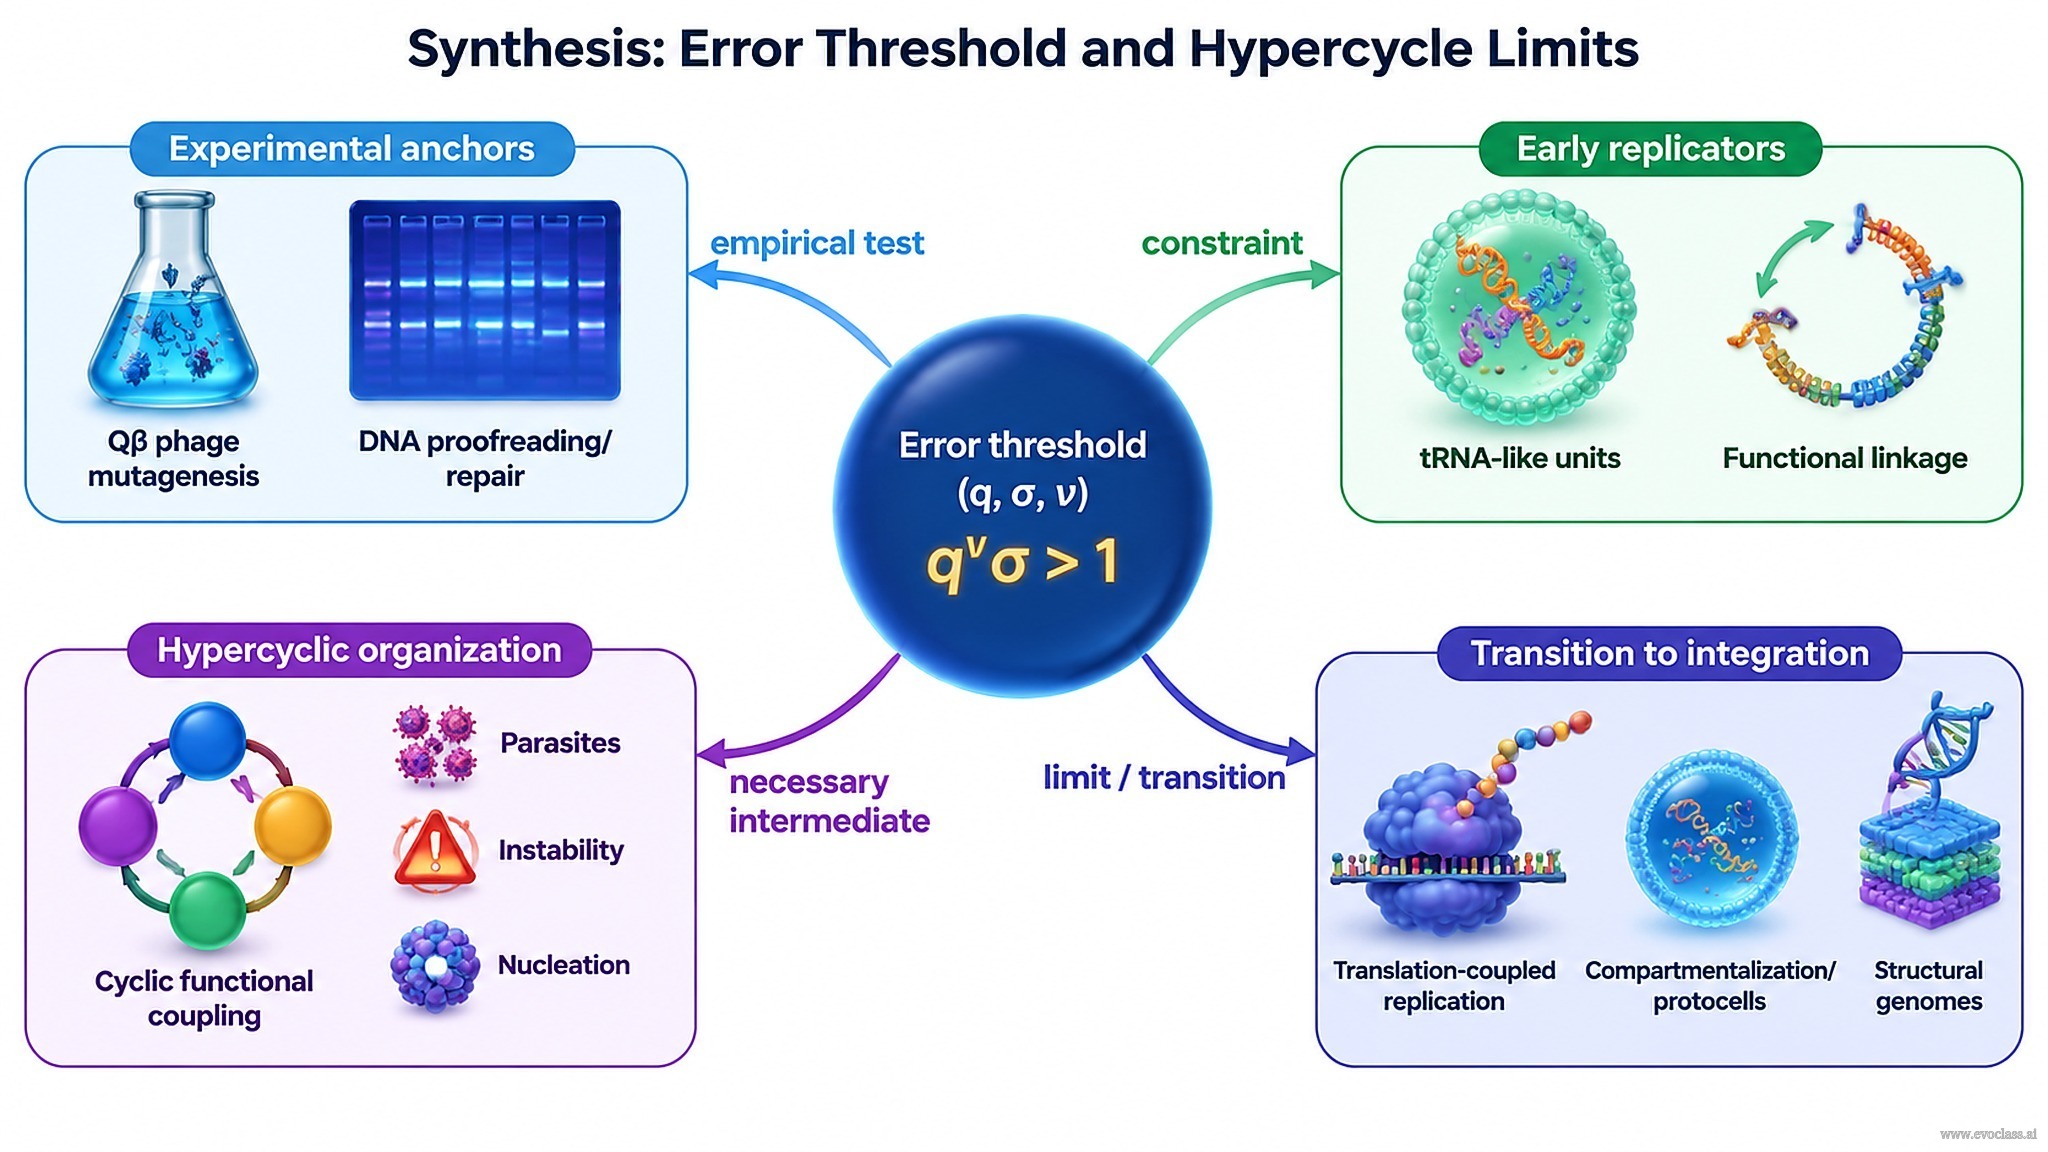
Le seuil d'erreur définit l'information stable maximale qu'un réplicateur primitif peut conserver pour une fidélité de réplication et un avantage sélectif donnés. Pour une longueur de séquence ν et une supériorité sélective σ, le maintien stable exige
Le jeu de l'évolution des phrases
Le jeu de l'évolution des phrases formalise la même contrainte à l'aide de trois variables : q̄m (précision de copie), σm (avantage sélectif) et vm (longueur de séquence). Ensemble, ils prédisent si une séquence porteuse de sens est maintenue ou perdue. Augmenter vm sans améliorer q̄m ni σm pousse le système au-delà du seuil d'erreur ; l'information stable ne survit donc que lorsque fidélité, sélection et longueur sont équilibrées conjointement.
Ancrages expérimentaux : phage Qβ et correction de l'ADN
Les expériences de mutagenèse du phage Qβ fournissent un ancrage empirique : à mesure que la charge mutationnelle augmente, la distribution des mutants s'élargit et la dominance du type sauvage s'effrite, illustrant l'approche du seuil d'erreur. À l'inverse, la correction et la réparation de l'ADN abaissent le taux de mutation effectif μ, déplacent la frontière et rendent possibles des génomes stables plus grands. Les réplicateurs d'ARN tendent donc à s'approcher du seuil d'erreur, tandis que les organismes dotés de mécanismes de correction peuvent conserver davantage d'information.
Réplicateurs primitifs et couplage fonctionnel
Les premières unités réplicatives sont probablement restées courtes et de type ARNt. Leur fidélité limitait à la fois la capacité de codage et la capacité catalytique, de sorte qu'elles ne pouvaient pas porter de grands génomes. Au lieu d'une ligature covalente, elles étaient liées par couplage fonctionnel ou catalytique : chaque réplicateur soutenait la réplication ou l'activité des autres, formant un réseau coopératif plutôt qu'un chromosome unique intégré.
Organisation hypercyclique : un intermédiaire nécessaire
L'organisation hypercyclique couple les réplicateurs de manière cyclique, ce qui permet une sélection collective, l'intégration de davantage de fonctions et une voie vers la traduction. Elle constitue donc un intermédiaire nécessaire en conditions de faible fidélité. Les hypercycles ont toutefois des limites : ils sont vulnérables à l'exploitation par des mutants parasites ou égoïstes, dépendent d'une structure spatiale ou compartimentée, souffrent de problèmes de stabilité et de nucléation, peuvent présenter une dynamique oscillatoire ou de cycle limite, et ne peuvent pas intégrer structurellement tous les gènes.
Au-delà des hypercycles : traduction, compartiments et génomes structuraux
Les améliorations au-delà des hypercycles impliquent la réplication couplée à la traduction, la compartimentation ou les protocellules, ainsi que l'intégration structurelle en génomes unifiés. Ces changements alignent l'hérédité sur l'ensemble de l'unité intégrée, permettant à la sélection d'agir sur l'ensemble des gènes plutôt que sur des réplicateurs faiblement couplés.
Carte conceptuelle du seuil d'erreurLa carte conceptuelle est centrée sur la condition du seuil d'erreur. Elle se ramifie vers des ancrages expérimentaux tels que la mutagenèse du phage Qβ et la correction de l'ADN, les réplicateurs primitifs de type ARNt à liaison fonctionnelle, l'organisation hypercyclique avec ses limites liées aux parasites et à l'instabilité, et la transition vers la traduction, la compartimentation et les génomes structuraux. Les étiquettes des flèches indiquent « test empirique », « contrainte », « intermédiaire nécessaire » et « limite / transition ».