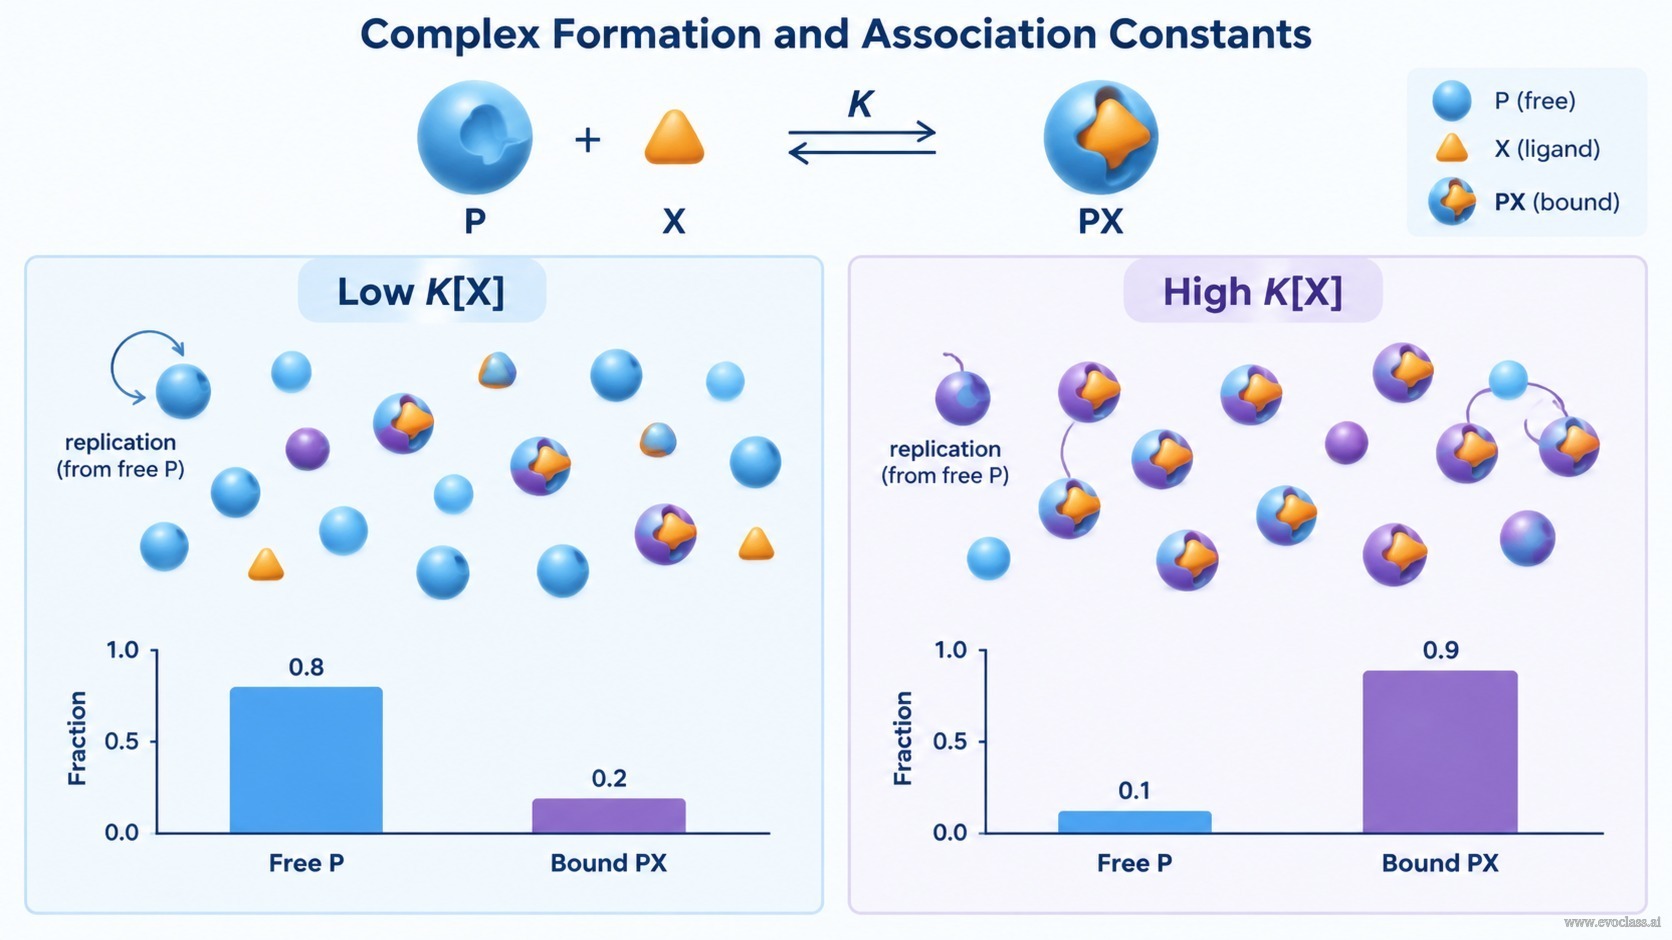
Dans les hypercycles couplés à la traduction, la matrice polynucléotidique P est non seulement répliquée, mais aussi traduite en un produit polypeptidique X. Ces deux espèces peuvent se lier de manière réversible pour former un complexe PX. La constante d'association K fixe la répartition à l'équilibre entre les espèces complexées et libres, et contrôle donc la quantité de matrice libre encore disponible pour la réplication.
La réaction de liaison est réversible : P + X ⇌ PX. Par convention, la constante d'association à l'équilibre est K = [PX] / ([P][X]). Une valeur élevée de K favorise le complexe lié PX, tandis qu'une valeur faible favorise les composants libres. À l'équilibre, [PX]/[P] = K[X] et [PX]/[X] = K[P], de sorte que K et les concentrations du partenaire libre déterminent conjointement le rapport complexé/libre.
Conservation de la masse et matrice libre
La conservation de la masse exige que les concentrations totales se répartissent entre formes libres et liées : [P]tot = [P]libre + [PX] et [X]tot = [X]libre + [PX]. L'étape de réplication dépend de la concentration de matrice libre [P]libre, et non de la concentration totale de matrice. La complexation réduit donc la matrice libre et peut abaisser le flux de réplication effectif.
- La fraction liée augmente avec K et avec X libre. Un faible K[X] laisse la majeure partie de la matrice libre, tandis qu'un K[X] élevé sature la formation de complexes.
- Comme X est produit par traduction, la formation de complexes couple la synthèse polypeptidique à la disponibilité de la matrice, et donc à la dynamique de réplication hypercyclique.
Dans le tableau plus large de l'hypercycle, cette séquestration réversible fait basculer le système entre différents régimes. Lorsque K[X] est faible, la majeure partie de la matrice est libre et l'hypercycle couplé à la traduction peut se comporter comme un hypercycle élémentaire ou un simple cycle catalytique. Lorsque K[X] est élevé, la complexation soustrait la matrice libre à la réplication et peut amortir les oscillations, modifier les amplitudes du cycle limite ou pousser le système vers un régime de faible concentration. Près d'une bifurcation de Hopf, de tels changements du rétrocontrôle effectif peuvent aussi modifier le ralentissement critique et la stabilité de l'état oscillatoire.
Formation de complexes et constantes d'associationLa réaction P + X ⇌ PX, de constante d'association K, répartit la matrice totale entre P libre et PX lié. Le diagramme à barres montre qu'une augmentation de K[X] fait passer la fraction liée d'une valeur faible à une valeur proche de la saturation, laissant moins de P libre pour la réplication.