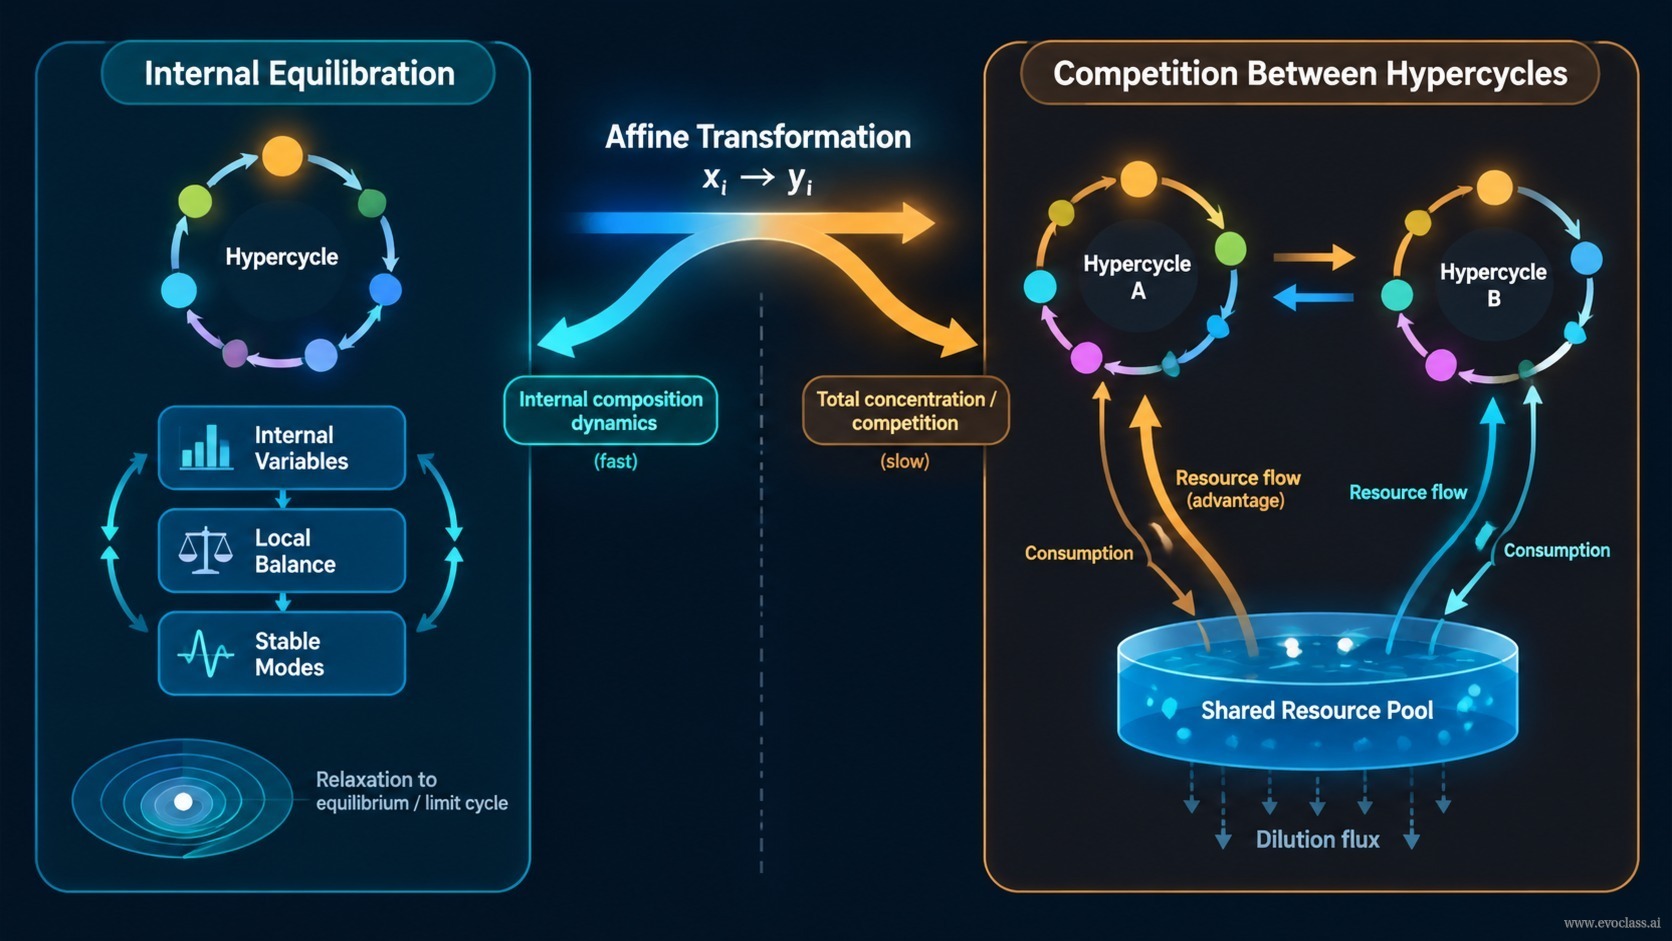
Dans une population d'hypercycles, la dynamique se sépare naturellement en deux niveaux : l' équilibrage interne des concentrations relatives au sein de chaque hypercycle, et la compétition entre différents hypercycles pour des ressources partagées ou sous une contrainte de concentration totale.
L'équilibrage interne décrit comment les concentrations relatives des espèces moléculaires au sein d'un même hypercycle se relaxent vers un attracteur interne — généralement un point fixe ou un cycle limite — tandis que l'abondance totale de l'hypercycle peut encore varier. Cette relaxation est régie par les couplages catalytiques internes et ne sélectionne pas à elle seule entre les hypercycles.
Pour analyser ces deux niveaux séparément, nous utilisons une transformation affine des variables de concentration. En suivant la structure des équations différentielles (6), nous introduisons de nouvelles variables yᵢ qui isolent les changements de concentration totale de l'équilibrage interne. Mathématiquement, cette transformation correspond à un décalage du système de coordonnées x, une technique bien connue des équations différentielles linéaires. Les équations résultantes permettent d'étudier la relaxation interne des concentrations relatives indépendamment de la croissance compétitive des hypercycles.
La compétition entre hypercycles apparaît lorsqu'ils partagent un réservoir de ressources commun ou lorsque la concentration totale de tous les hypercycles est contrainte (par exemple par un flux de dilution constant). Dans ces conditions, l'expansion d'un hypercycle affecte nécessairement l'abondance des autres. La transformation affine montre clairement que la sélection entre hypercycles s'opère au niveau inter-hypercycle, tandis que l'équilibrage interne ne fait que fixer la composition au sein de chaque unité.
Cette séparation est particulièrement puissante lorsque les échelles de temps diffèrent : si l'équilibrage interne est rapide par rapport à la compétition inter-hypercycle, chaque hypercycle peut être traité comme une unité sélective cohérente dotée d'un taux de croissance effectif déterminé par son attracteur interne. Dans cette limite, la dynamique se réduit à une compétition darwinienne entre hypercycles, la contrainte de concentration totale agissant comme un jeu à somme nulle.
Toutefois, cette séparation est une idéalisation. Un couplage non linéaire entre les variables internes et compétitives, des hypercycles couplés à la traduction, ou des modes internes lents peuvent mélanger les deux niveaux, limitant l'indépendance exacte. Dans ces cas, le système complet doit être analysé sans l'hypothèse simplificatrice de séparation des échelles de temps.
Points clés
- Équilibrage interne relaxe les concentrations relatives au sein d'un hypercycle vers un point fixe ou un cycle limite.
- Une transformation affine xᵢ → yᵢ sépare les variations de concentration totale de la dynamique d'équilibrage interne.
- La compétition entre hypercycles s'opère sous des ressources partagées ou une contrainte de concentration totale.
- Une relaxation interne rapide permet de traiter chaque hypercycle comme une unité sélective cohérente dotée d'un taux de croissance effectif.
- La sélection entre hypercycles n'apparaît qu'au niveau inter-hypercycle ; l'équilibrage interne à lui seul ne sélectionne pas.
- Un couplage non linéaire, des hypercycles couplés à la traduction ou des modes internes lents peuvent invalider l'indépendance exacte des deux niveaux.
Équilibrage interne et compétition entre hypercyclesSchéma fonctionnel illustrant la transformation affine des variables de concentration xᵢ en yᵢ, séparant l'équilibrage interne rapide au sein d'un hypercycle (à gauche) de la sélection compétitive lente entre hypercycles partageant un réservoir de ressources (à droite).