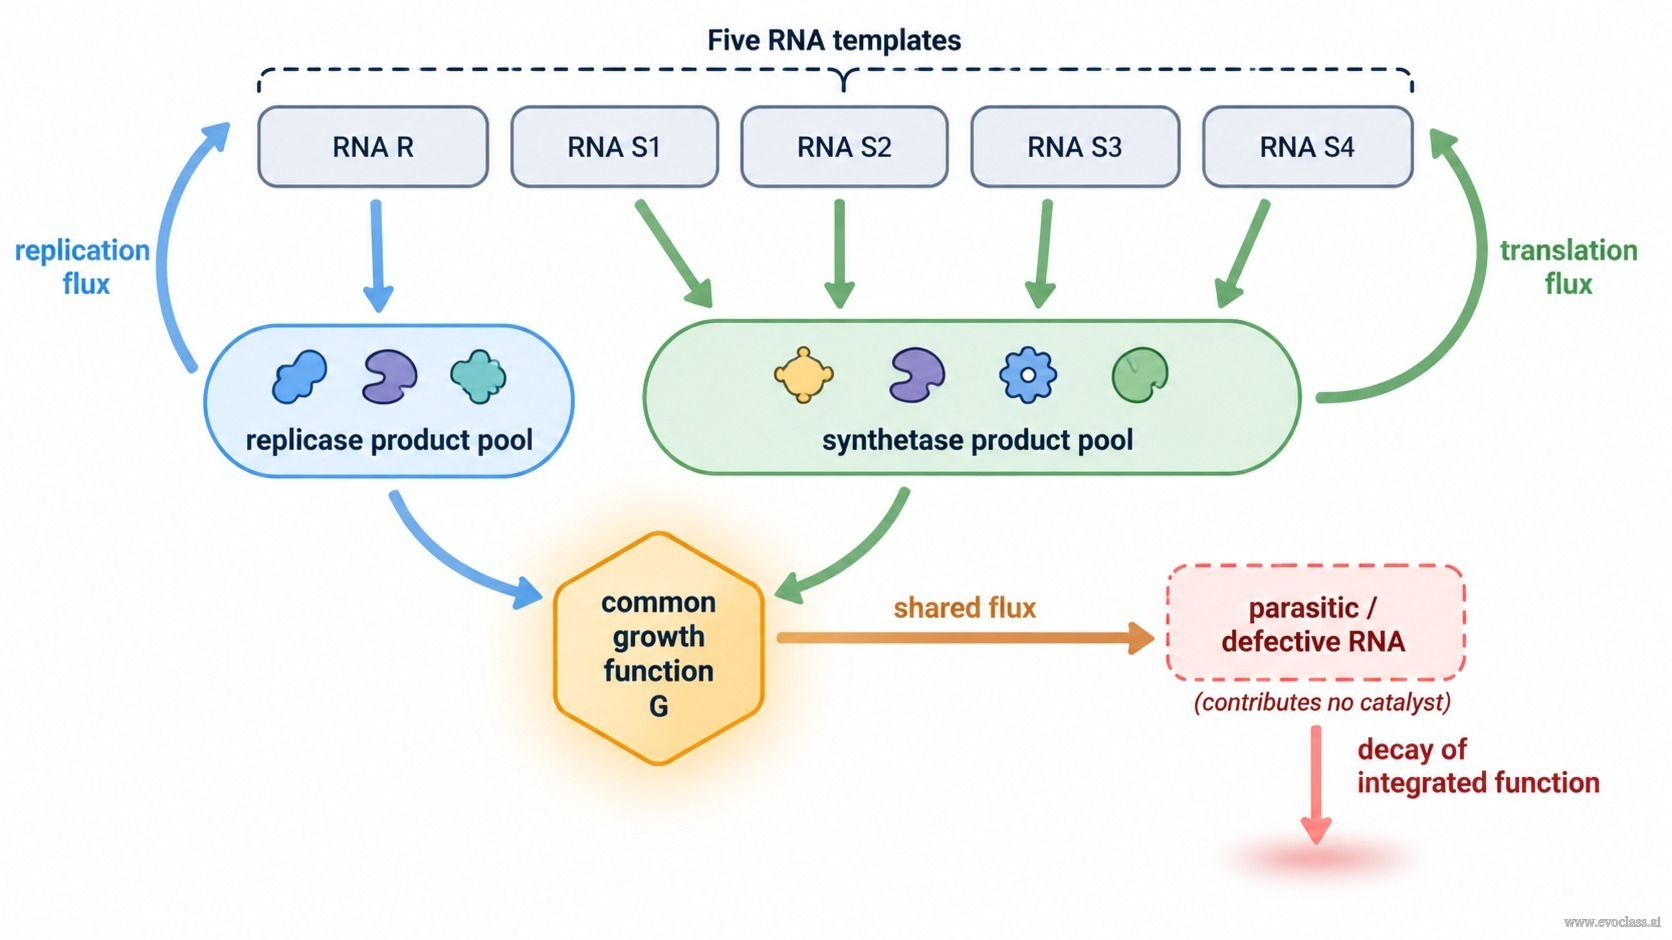
Le schéma minimal réplicase–synthétase est le plus petit hypercycle couplé à la traduction pouvant être formulé comme une proposition moléculaire concrète : un ensemble de brins d'ARN dans lequel une matrice (R) code une réplicase et quatre matrices (S1–S4) codent des synthétases. Il ne s'agit délibérément pas d'un ARN auto-répliquant unique. Le schéma constitue plutôt un consortium : la même population d'ARN fournit à la fois les matrices pour la réplication et les messages pour la traduction.
Liaison fonctionnelle : les produits de la réplicase copient les cinq brins d'ARN, tandis que les produits des synthétases permettent la traduction de ces mêmes cinq brins. Comme la même population est à la fois matrice et produit catalytique, la réplication et la traduction sont mutuellement couplées plutôt que constituées de sous-systèmes séparés. Ce couplage est le cœur architectural de l'hypercycle minimal.
Réduction de la croissance partagée : lorsque les catalyseurs agissent sur l'ensemble, les termes individuels de réplication et de traduction ne sont pas propres au brin qui code le catalyseur. Ils deviennent des termes de bien commun. Mathématiquement, le système couplé se réduit à une seule fonction de croissance communeG pour tous les brins. La croissance nette de chaque brin peut s'écrire comme une contribution collective plus un terme de composition relative, mais la récompense sélective liée à la production d'un catalyseur est diluée, car chaque membre puise dans le même flux de croissance.
Mécanisme de dégradation : comme tous les membres puisent dans le même flux de croissance, un mutant qui réduit ou omet la production catalytique bénéficie tout de même de l'avantage partagé. Si un tel variant se réplique plus vite — par exemple parce que son ARN est plus court —, il peut augmenter en fréquence relative sans contribuer à l'activité réplicase ou synthétase. Cela dilue les catalyseurs fonctionnels et permet l'accumulation de brins parasites ou dégénérés. Le schéma minimal seul n'est donc pas suffisant pour une intégration darwinienne robuste.
Implication pour la stabilité : pour enrayer la dégradation, une organisation supplémentaire est nécessaire. La compartimentation, la structure spatiale ou la fermeture hypercyclique peuvent lier la survie d'un brin à sa propre contribution catalytique en co-localisant catalyseurs, matrices et produits. Une telle organisation maintient l'équilibre stoechiométrique et empêche le flux de croissance commun d'être capté par des variants non productifs.
Nuance analytique : dans le traitement source (pages 66–76), la réduction de la croissance partagée est mise en évidence par une transformation affine des variables de population. Cette transformation sépare le mode de croissance collectif des modes de composition relative. Le mode de croissance commun décrit l'expansion de l'ensemble, tandis que les modes restants décrivent l'évolution de la composition — y compris l'invasion par des brins parasites ou défectueux. Ce changement de coordonnées clarifie pourquoi la croissance partagée ne peut pas récompenser sélectivement la contribution catalytique de chaque composant.
Schéma minimal réplicase–synthétaseCinq matrices d'ARN — R codant une réplicase et S 1 –S 4 codant des synthétases — alimentent les pools de produits de la réplicase et des synthétases. Les deux pools convergent vers une fonction de croissance commune G. Un ARN parasite en pointillés reçoit le même flux mais n'apporte aucun catalyseur, entraînant la dégradation de la fonction intégrée.