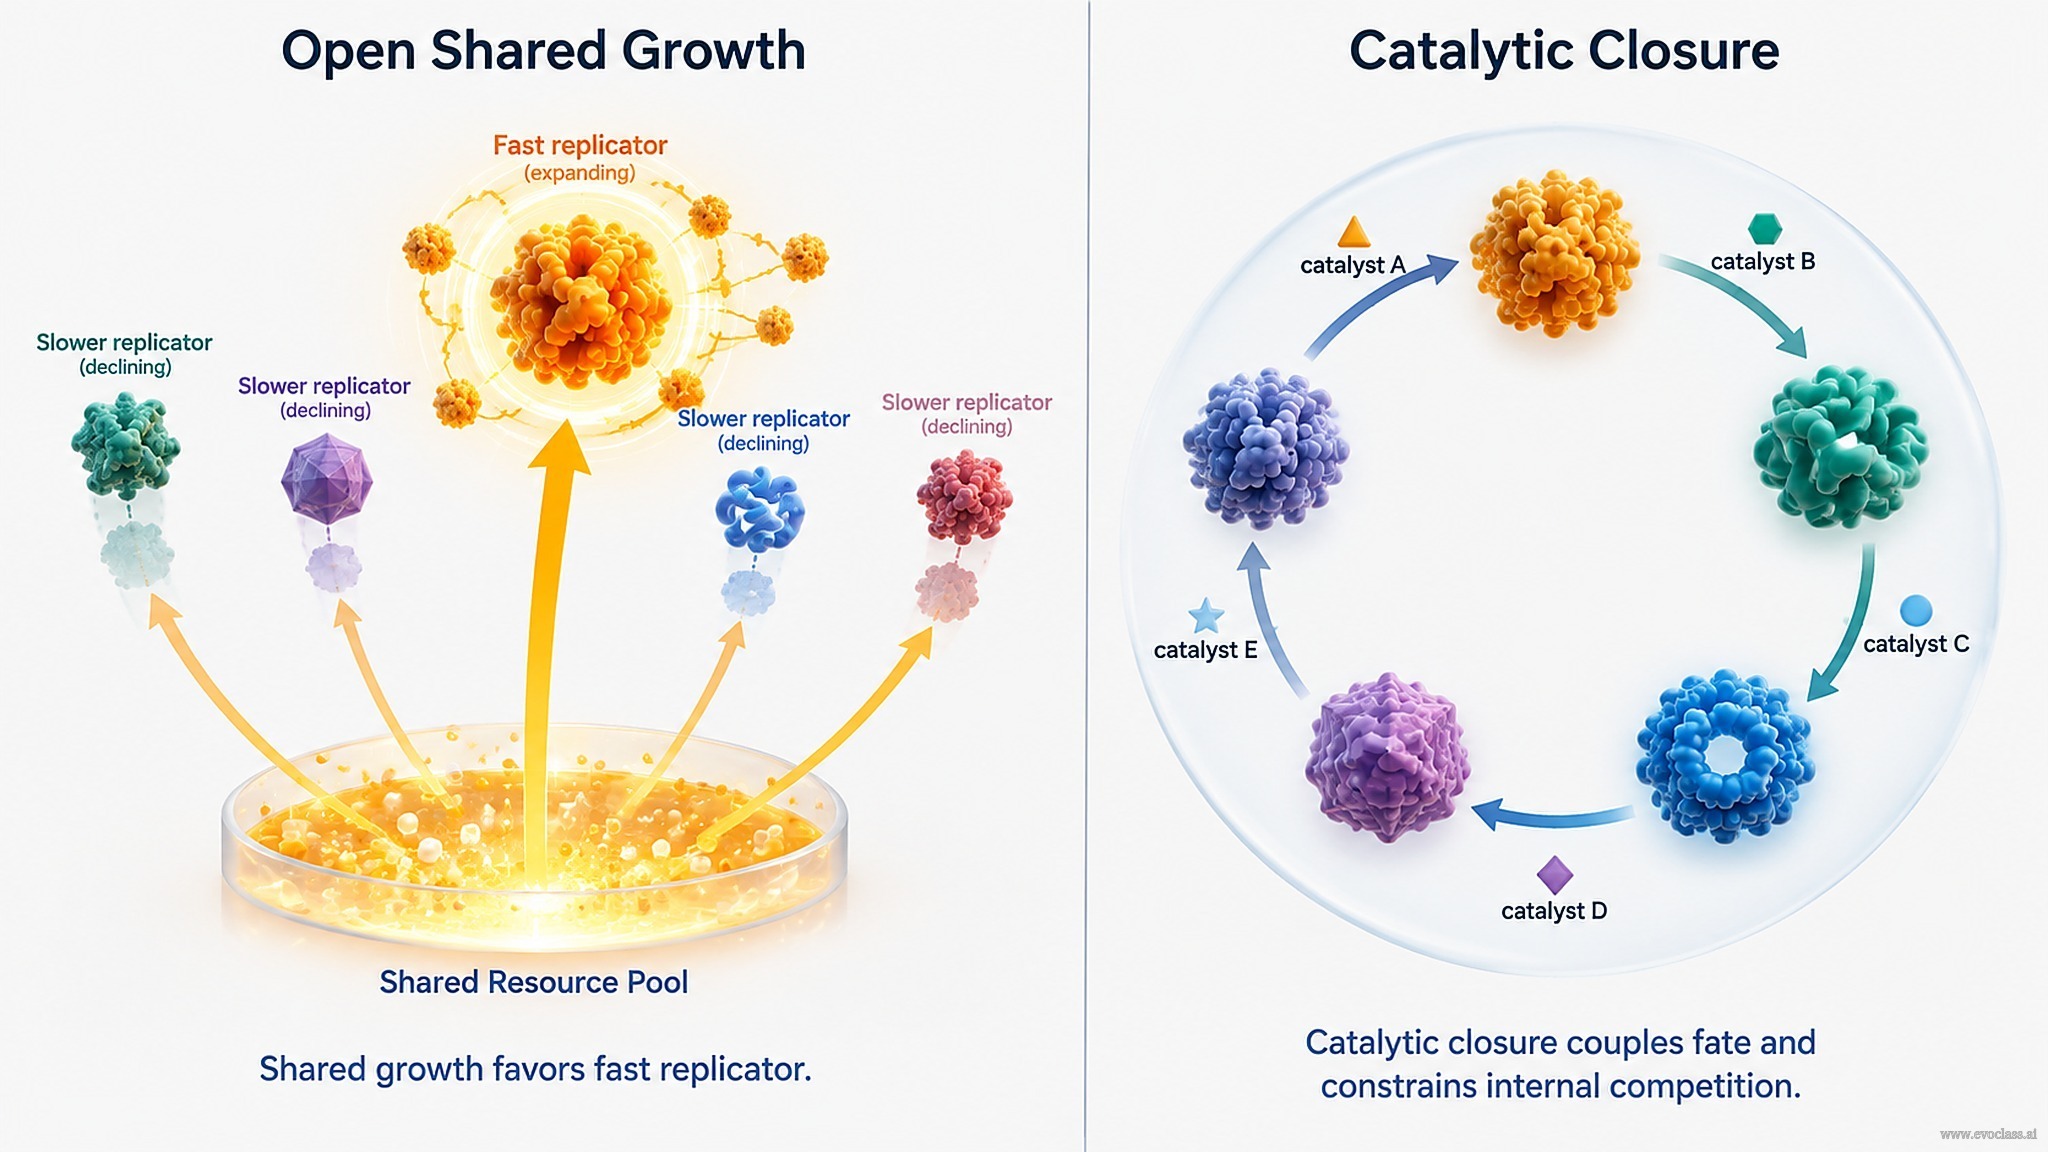
Dans un hypercycle couplé à la traduction, le couplage fonctionnel seul ne suffit pas. Supposons qu'un ensemble de brins d'ARN code une réplicase et plusieurs fonctions synthétases, et que tous les brins partagent la même machinerie de réplication et de traduction. Les termes partagés se fondent en une fonction de croissance commune. Un brin répliqué plus rapidement — ou traduit plus efficacement — peut alors se développer au détriment des autres, et l'ensemble se dégrade par compétition interne. Il s'agit de la croissance partagée, et non de la fermeture catalytique.
La fermeture catalytique transforme ce même ensemble en un cycle de dépendance réciproque. La réplication ou la traduction de chaque membre est catalysée par au moins un autre membre. La croissance devient collective : un réplicateur rapide ne peut maintenir indéfiniment une croissance rapide si le catalyseur dont il a besoin n'est produit que par le membre qu'il chercherait autrement à évincer. La compétition interne subsiste pour les précurseurs, l'énergie, la capacité de traduction et l'efficacité catalytique, mais la dépendance cyclique la limite.
La stabilisation dépend de la force du couplage par rapport aux différences de croissance intrinsèques. L'analyse perturbative de la valeur sélective est valide lorsque wkm ≪ Wmm − Wkk (cf. tableau 2). Des approximations d'ordre supérieur utilisent
De la fermeture hypercyclique à l'intégration structurelle
La fermeture hypercyclique stabilise la coopération couplée à la traduction, mais elle a ses limites. Des mutants parasites peuvent accepter la catalyse sans y contribuer, et des déséquilibres internes entre les membres peuvent déstabiliser le cycle. Ces limites aident à expliquer le passage ultérieur vers une intégration structurelle complète des gènes/génomes : une fois les gènes liés physiquement et co-répliqués en tant que génome, le lien catalytique fermé est remplacé par une unité structurelle, réduisant les possibilités de parasitisme et stabilisant la coopération.
Croissance ouverte vs fermeture catalytiqueÀ gauche : la croissance partagée ouverte permet à un réplicateur rapide de se développer tandis que les autres membres déclinent. À droite : un cycle catalytique fermé couple la réplication ou la traduction de chaque membre à celle d'un autre membre, de sorte qu'aucun nœud ne peut maintenir seul une croissance rapide et la compétition interne est limitée.