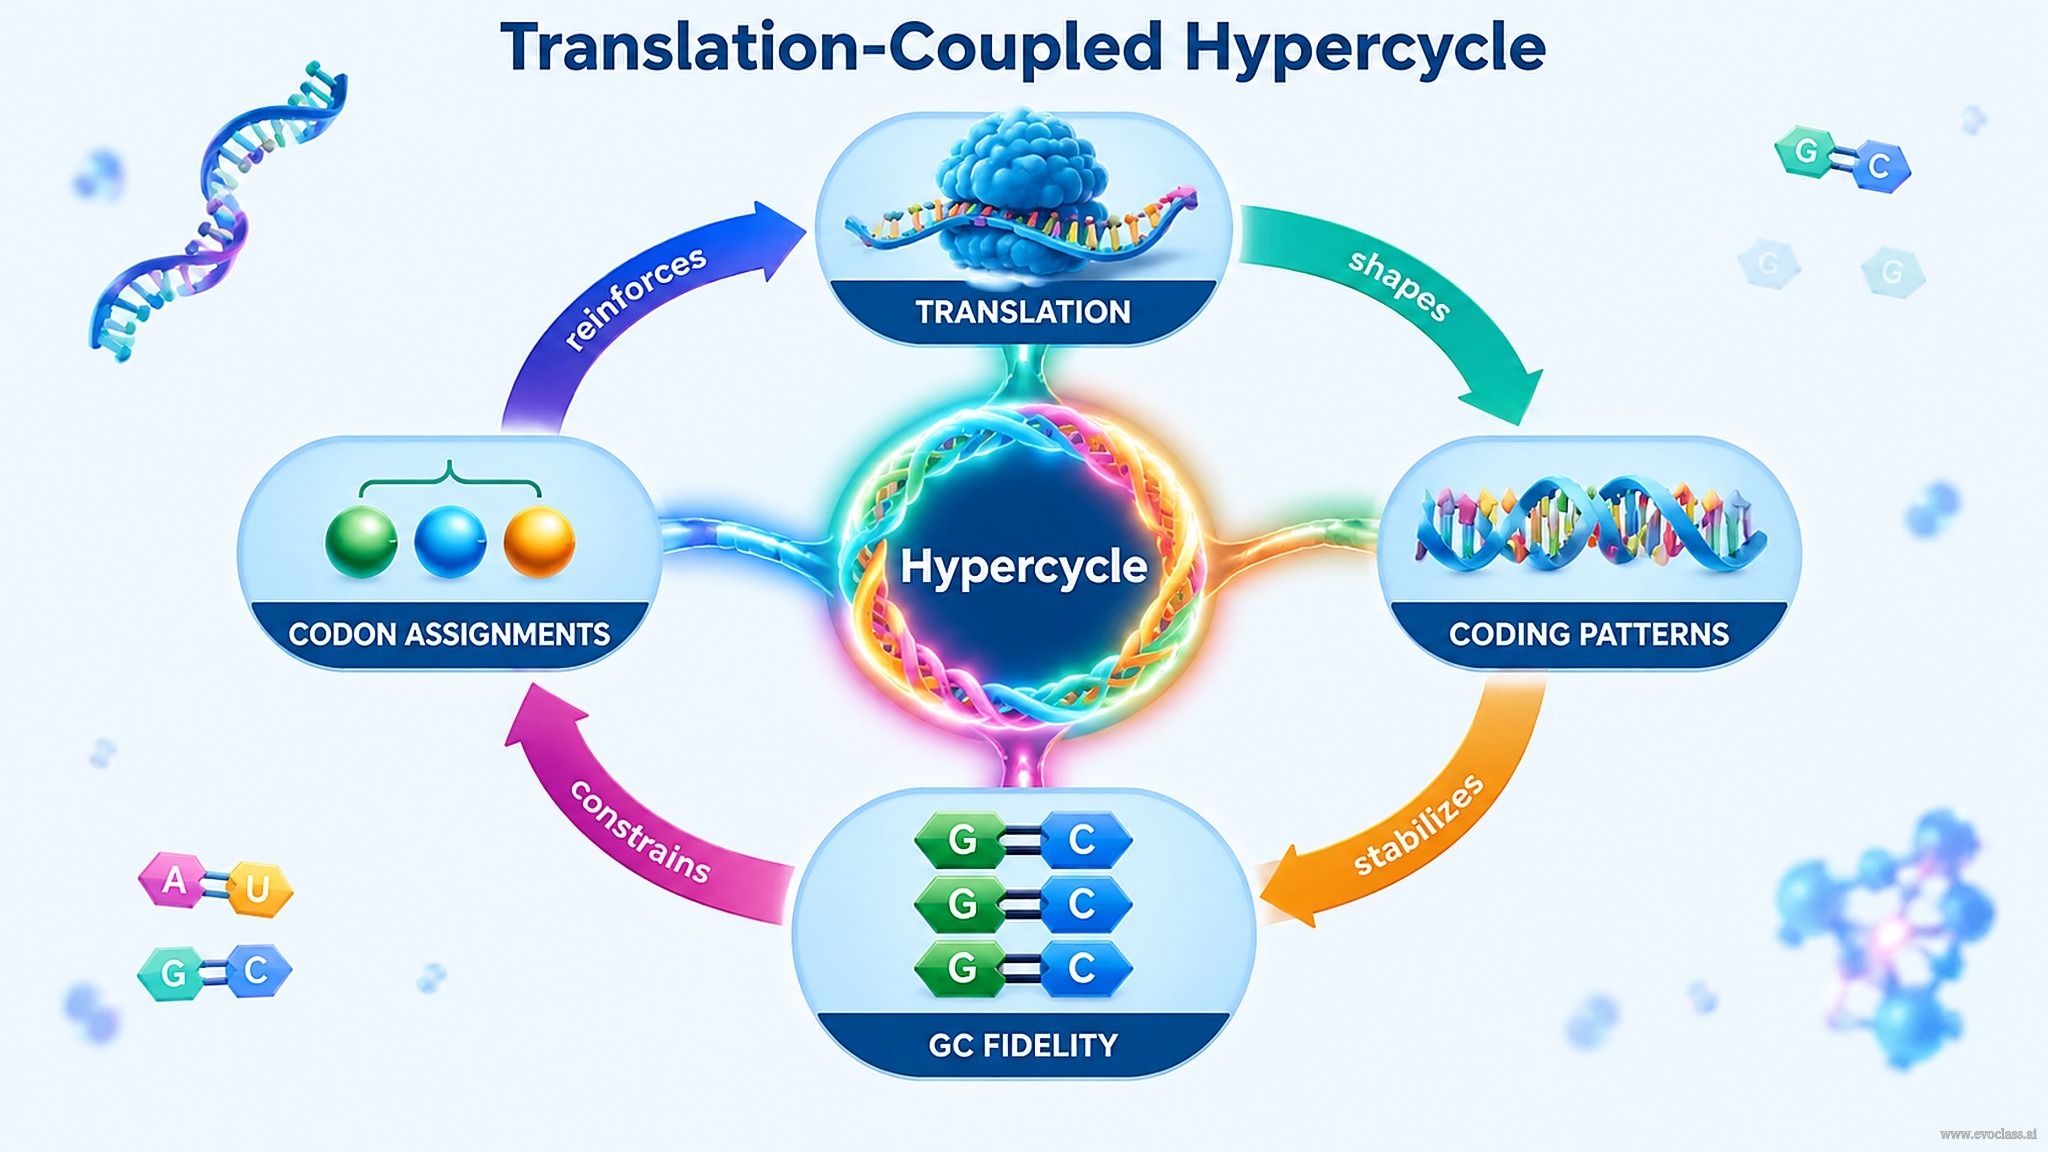
Cette page intègre trois axes jusqu'ici distincts en un scénario prébiotique cohérent : la dynamique des hypercycles couplés à la traduction, la logique du codage primordial, et la chimie des ARN riches en GC. Cette synthèse montre qu'un hypercycle réaliste ne peut être constitué à partir des seuls termes partagés de réplication et de traduction ; il exige un lien catalytique fermé entre les fonctions codées par l'ARN.
D'un ensemble en déclin à un lien catalytique fermé
Un schéma minimal dans lequel un ensemble de brins d'ARN code une réplicase et quatre fonctions synthétases illustre le problème. Lorsque les termes de réplication et de traduction sont partagés, ils se réduisent à une seule fonction de croissance commune, de sorte que l'ensemble se dégrade par compétition interne. L'ingrédient manquant est un lien catalytique fermé : chaque fonction codée par l'ARN doit contribuer à la réplication ou à la traduction des autres, afin que le collectif persiste en tant qu'hypercycle plutôt qu'en tant que simple ensemble de matrices en compétition.
Codage primordial et lecture sans ribosome
Le codage primordial doit résoudre la cohérence du cadre, la lecture sans virgule et le transfert peptidique sans ribosome. Un message primitif peut être lu par l'intermédiaire d'adaptateurs de type ARNt qui basculent entre les configurations hf et FH lors du transfert peptidique (cf. Fig. 49). L'identité de la configuration active dépend du fait que la molécule de type ARNt porte un acide aminé ou est attachée à une chaîne peptidique en croissance. Le transfert d'un acide aminé sur la chaîne peptidique fait basculer l'adaptateur de hf à FH, ce qui permet une lecture processive sans appareil de traduction sophistiqué. Le contact de la boucle anticodon à cinq paires de bases et les deux conformations de boucle maintiennent un peptidyl-ARNt en croissance attaché au message. La cohérence du cadre et le décodage sans virgule garantissent que la lecture reste dans le registre et ne s'effondre pas en cadres de lecture chevauchants ou alternatifs.
Chimie riche en GC et premières assignations de codons
Les séquences riches en GC offrent une meilleure stabilité du duplex et une meilleure fidélité, ce qui en fait des précurseurs probables des premiers adaptateurs et messagers reproductibles. Les imperfections AU peuvent ensuite introduire une variation sélectivement pertinente. Les premières assignations de codons, telles que GGC/GCC et l'étape ultérieure GAC/GUC, s'interprètent par la chimie physique et l'abondance des nucléotides, et non par un appareil de traduction pleinement moderne. Le réseau GC apériodique comportant des imperfections AU sélectivement avantageuses, ainsi que les critères structuraux à l'origine de l'alphabet primaire des acides aminés, complètent le tableau.
Ces axes ne sont pas des innovations indépendantes. Les motifs de codage contraignent le transfert de type traduction, le transfert de type traduction exige une fermeture catalytique, et la chimie riche en GC fixe le seuil de stabilité pour les deux. Le scénario qui en résulte traite l'origine de la traduction et l'origine du code génétique comme des problèmes moléculaires couplés.
Synthèse de la traduction et du codage primordialCette carte conceptuelle intègre le couplage catalytique fermé entre les fonctions codées par l'ARN, le codage primordial avec cohérence du cadre et lecture sans virgule, le transfert peptidique sans ribosome via la bascule hf/FH de l'adaptateur, la fidélité et la stabilité conférées par les GC, ainsi que les premières assignations de codons telles que GGC/GCC. Les flèches indiquent les contraintes mutuelles et les rétroactions entre la traduction, le codage et l'organisation hypercyclique.