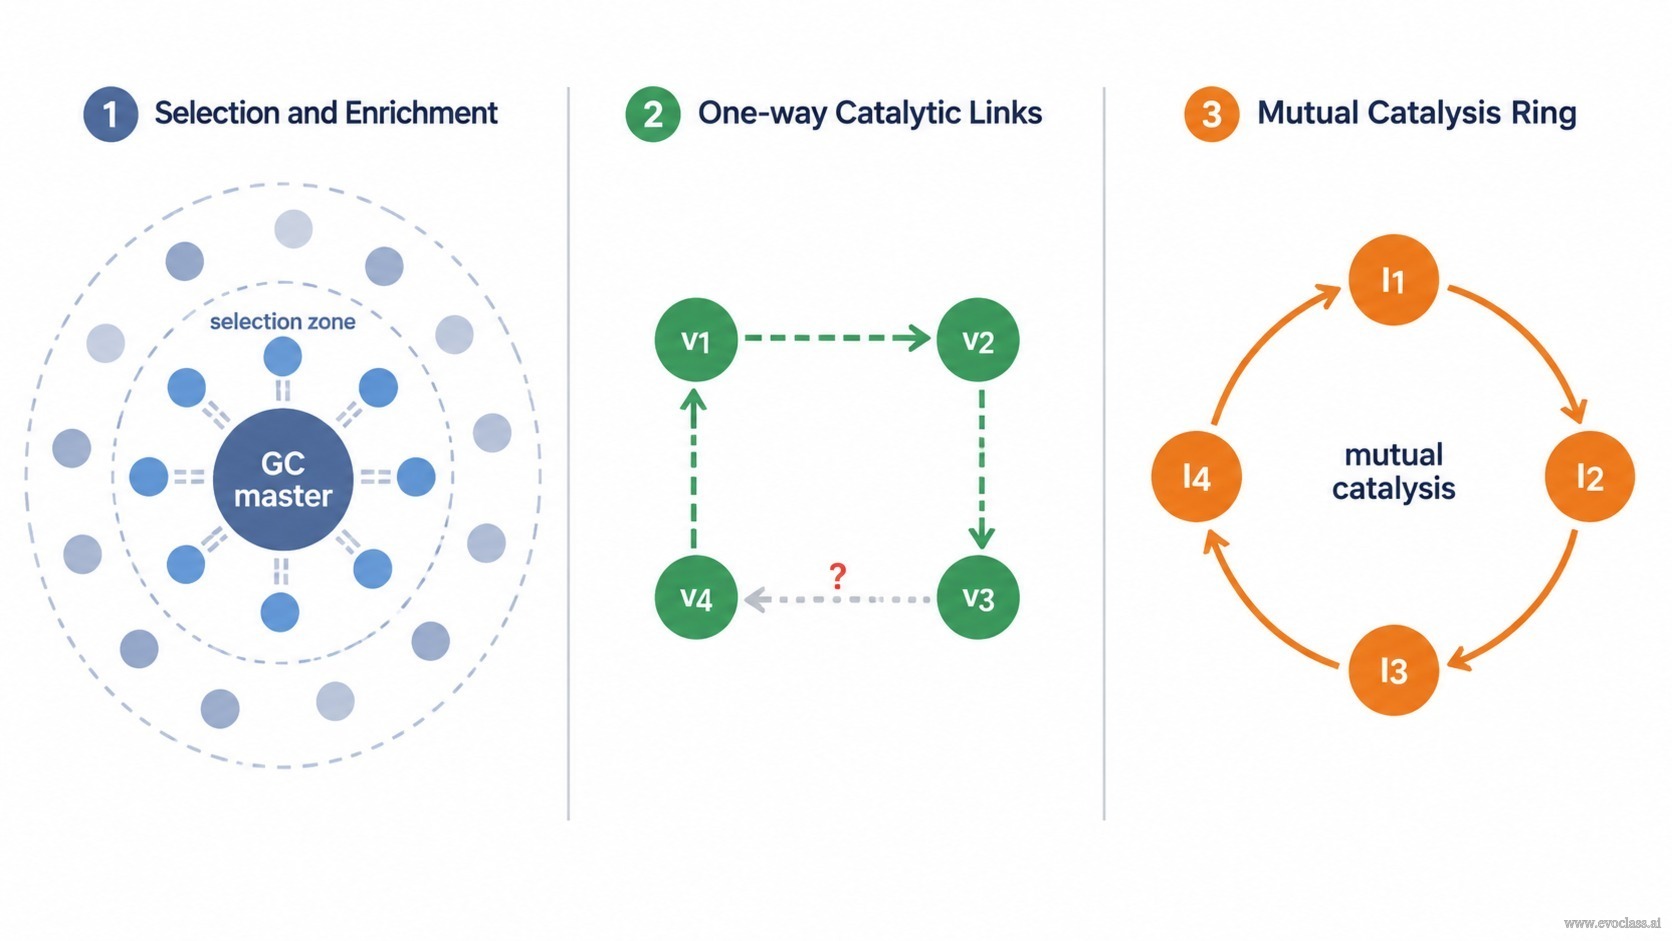
Un hypercycle est un ensemble fermé de réplicateurs qui catalysent mutuellement leur réplication. Comme le cycle est défini par une mutuelle catalyse entre plusieurs séquences distinctes, il ne peut pas se nucléer à partir d'une seule copie matrice : une molécule ne contient pas toute la fonction cyclique, et sa première copie n'a aucun partenaire catalytique avec lequel fermer une boucle. L'organisation hypercyclique ne peut donc pas apparaître brutalement ; elle doit s'assembler progressivement au niveau d'une population, et le berceau le plus plausible de cet assemblage est une quasi-espèce riche en GC.
Pourquoi un seul modèle ne peut pas amorcer un cycle
Un réplicateur autocatalytique est autosuffisant : un simple brin qui sert de matrice à sa propre copie se multiplie de façon exponentielle à partir d'une seule molécule, car la molécule et son produit portent la même fonction. Un hypercycle n'est pas de cette nature. Sa propriété déterminante est une boucle fermée de soutien catalytique dans laquelle le membre i favorise la réplication du membre j, qui favorise k, et ainsi de suite jusqu'à ce que la boucle revienne à i. Retirez un seul membre et les membres restants ne le régénèrent plus. Par conséquent, la première copie de n'importe quel membre est une impasse : elle n'a pas de partenaires complémentaires, et aucun cycle catalytique fermé n'existe pour l'amplifier préférentiellement.
Une quasi-espèce riche en GC fournit la matière première
Une quasi-espèce n'est pas une séquence unique mais un nuage de séquences apparentées, connectées par mutation, réparties autour d'une séquence dominante de type maître. Dans un réservoir riche en GC, ce nuage est exceptionnellement bien fourni. Chaque paire G–C supplémentaire apporte une troisième liaison hydrogène : les tiges riches en GC fondent à plus haute température, se replient plus fiablement et tolèrent davantage de mutations ponctuelles avant que leur structure secondaire ne s'effondre. Le réservoir réunit donc simultanément les deux éléments exigés par le problème de nucléation : une forte diversité locale de variants aux boucles, tiges et géométries de surface modifiées, et une stabilité structurale suffisante pour que chaque variant reste fonctionnel assez longtemps pour être testé par la sélection.
La mutation explore le couplage, la sélection le conserve
C'est l'exploration mutationnelle qui explore réellement l'espace des interactions. Une substitution ponctuelle peut remodeler une épingle à cheveux, exposer une nouvelle surface de liaison ou recruter un centre catalytique dépendant d'un ion métallique, modifiant le faible coefficient de couplage
De l'organisation en quasi-espèce à l'organisation hypercyclique
À mesure que les liens s'accumulent, la distribution des mutants change de forme. La diversité ne se répartit plus autour d'une séquence maître unique ; elle se condense vers un petit sous-ensemble de modèles mutuellement catalytiques, et la fermeture de l'anneau ne se produit qu'une fois qu'assez de liens existent pour que le réseau soit fermé plutôt que simplement ouvert ou ramifié. Avant la fermeture, l'ensemble se comporte comme une quasi-espèce comportant quelques variants corrélés. Après la fermeture, la croissance est coopérative et super-additive : le cycle se multiplie comme une unité, et comme chaque membre alimente le suivant, l'ensemble couplé peut surpasser une quasi-espèce isolée en compétition pour les mêmes monomères et la même réplicase. C'est ainsi qu'un hypercycle pourrait apparaître sans aucun génome multi-gènes préformé — par recrutement et intégration de gènes mutants déjà présents dans le réservoir riche en GC. L'analyse de point fixe sous-jacente au cas à deux membres exprime la même idée sous forme de coefficients de taux : selon que la paire aboutit à une exclusion compétitive, à la sélection d'un seul membre ou à une coexistence hypercyclique stable, le résultat ne dépend que des amplitudes relatives de l'auto-renforcement et du renforcement mutuel, et le critère se généralise aux cycles à trois membres et à n membres.
Quand la voie échoue
- La fidélité de réplication doit rester au-dessus du seuil d'erreur. Si le taux de mutation est trop élevé, le réservoir se dissout en un nuage diffus dans lequel aucun variant ne persiste assez longtemps pour établir un lien.
- La compatibilité fonctionnelle est importante : les membres ne doivent pas interférer destructivement avec le repliement ou la catalyse les uns des autres, sinon les liens accumulés s'annulent au lieu de se renforcer.
- La charge parasitaire doit rester faible. Un modèle égoïste qui est efficacement répliqué grâce au cycle émergent, mais ne catalyse rien en retour, épuise les ressources partagées et peut déstabiliser le réseau avant sa fermeture.
Esquisse d'exemple. Dans un réservoir d'ARN riche en GC, une séquence dominante de type GGC/GCC et ses mutants forment une quasi-espèce. Un mutant peut faiblement assister la réplication d'une séquence voisine, et la sélection préserve les deux partenaires car leur rendement joint dépasse ce que chacun obtient seul. D'autres mutations génèrent une assistance réciproque, la branche manquante est complétée, et un cycle à deux membres ou plus se ferme. Une fois fermé, la croissance hypercyclique surpasse la quasi-espèce isolée qui lui a donné naissance.
Émergence à partir d'une quasi-espèce riche en GCTrois étapes se lisent de gauche à droite. D'abord, une séquence maître riche en GC occupe le centre d'un nuage mutationnel, avec une zone de sélection interne marquant les variants progressivement enrichis, tandis que des paires GC stables protègent leurs structures repliées. Ensuite, les variants survivants sont reliés par de faibles liens catalytiques unidirectionnels, et une connexion reste en pointillé car le réseau n'est pas encore fermé. Enfin, ces liens deviennent réciproques et le réseau se referme en un anneau hypercyclique où chaque membre catalyse le suivant, de sorte que l'ensemble puisse surpasser une quasi-espèce isolée.