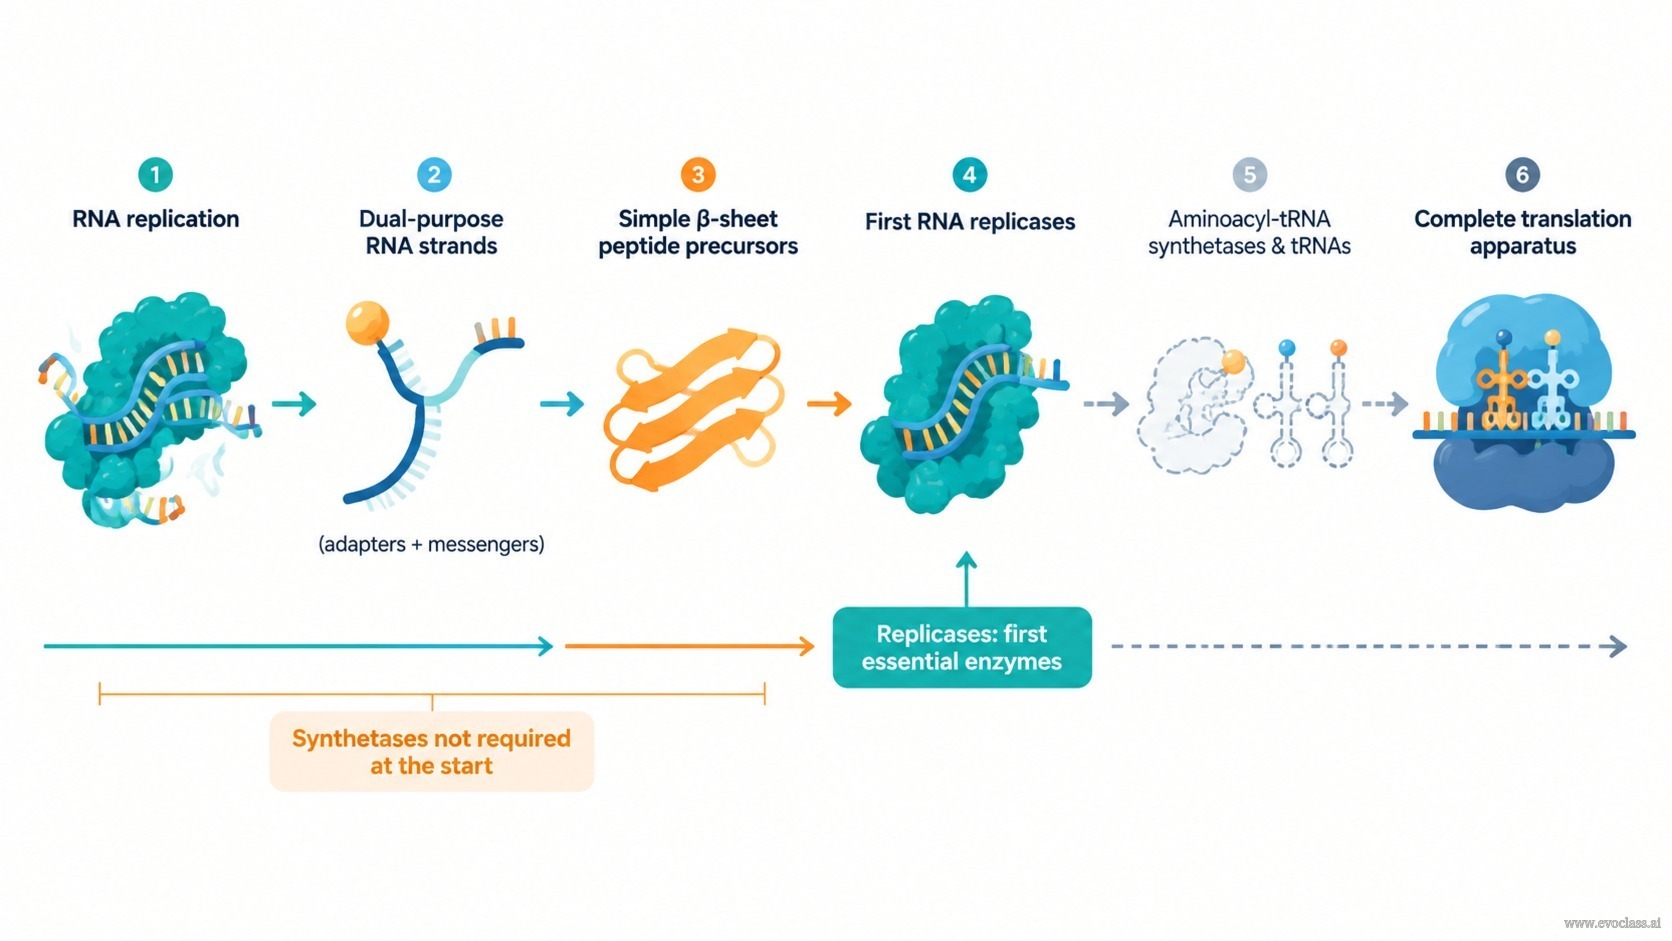
La dernière étape de cette leçon pose une question volontairement tranchante : que doit-il déjà exister pour que la synthèse peptidique et le stockage de l'information soient couplés ? À y regarder de près, le document source ne répond pas « un appareil de traduction simplifié ». La réponse est plutôt que le tout premier système était un système catalytique héréditaire minimal, dans lequel les brins d'ARN servaient à la fois de messagers et d'adaptateurs, et où les premiers catalyseurs réellement indispensables étaient les réplicases — et non les aminoacyl-ARNt synthétases.
Le couplage fonctionnel avant un appareil complet
Le couplage fonctionnel signifie qu'un adaptateur portant un acide aminé et un messager portant la matrice sont reconnus par la même machinerie primitive. Si un seul et même brin d'ARN peut se replier en une conformation de type adaptateur et servir aussi de matrice, le nombre de composants indépendants nécessaires à une synthèse peptidique de type traduction chute fortement. Dans un tel schéma, la formation de la liaison peptidique devient possible avant un ribosome, avant un jeu complet d'ARNt et avant l'existence de toute synthétase.
- Brins à double fonction. Un seul ARN peut combiner le rôle de messager (matrice) et le rôle d'adaptateur, ce qui correspond exactement à ce dont un système de traduction primitif minimal a besoin.
- Chargement direct. L'affinité ARN–acide aminé et le transfert peptidique sans ribosome peuvent fournir l'étape d'activation initiale que les synthétases assurent dans les cellules modernes.
- Flexibilité conformationnelle. La flexibilité révélée par les alignements de séquences d'ARNt est précisément ce qui permet à un seul brin d'occuper deux rôles fonctionnels à la fois.
- Catalyseurs simples. Les premiers peptides fonctionnellement actifs étaient très probablement de courts feuillets β ou de petits peptides catalytiques, et non des enzymes globulaires repliées modernes dotées de poches actives profondes.
Les synthétases et les ARNt distincts comme raffinements ultérieurs
Si le chargement initial et la fonction d'adaptateur peuvent tous deux être assurés sans enzymes dédiées, alors les aminoacyl-ARNt synthétases et les molécules d'ARNt autonomes deviennent des composants de contrôle qualité plutôt que des prérequis. Ils resserrent l'appariement entre codon et acide aminé et augmentent la fidélité de la traduction. Ils sont donc mieux compris comme des raffinements qui apparaissent une fois qu'un système couplé se réplique déjà et est déjà sous sélection — et non comme les conditions qui rendent le couplage possible au départ.
Les réplicases : les premières enzymes essentielles
Le couplage seul ne suffit pas. Aussi élégant qu'un cycle de type traduction puisse être, il disparaît avec la mort de ses molécules si l'information qui le code ne peut être copiée. C'est l'argument décisif de la diapositive : la réplication est ce qui convertit un couplage chimique ponctuel en une fonction héréditaire et sélectionnable. Les ARN réplicases — la synthèse de novo du midivariant Qβ servant d'analogue expérimental d'un tel système d'ARN minimal centré sur une réplicase — fournissent exactement cette capacité. Une fois la réplication et la catalyse peptidique fonctionnellement liées, les premières protéines véritablement enzymatiques peuvent émerger et être conservées.
Les limites de fidélité renforcent la même conclusion. Un appareil de traduction complet exige de nombreux composants interagissant avec précision ; aux taux d'erreur attendus d'une réplicase primitive, un appareil aussi volumineux ne pourrait être maintenu face au seuil d'erreur, alors qu'une courte quasi-espèce d'ARN copiée par une réplicase le peut. Le schéma minimal privilégiant la réplicase n'est donc pas une simplification de commodité, mais une conséquence directe des limites de fidélité de l'époque. Les synthétases, les ARNt distincts et la traduction complète apparaissent plus tard comme des raffinements améliorant la fidélité, superposés à un noyau déjà héréditaire.
Chronologie de la cellule minimaleUn parcours de gauche à droite montrant la réplication de l'ARN, des brins d'ARN à double fonction agissant à la fois comme adaptateurs et comme messagers, de simples précurseurs peptidiques en feuillet β et les premières réplicases mises en évidence comme essentielles, suivies des synthétases et ARNt distincts ultérieurs, et enfin de l'appareil de traduction complet. Le message causal est une question d'ordre : le couplage fonctionnel peut précéder un appareil complet, mais rien dans le système n'est hérité sans une réplicase.