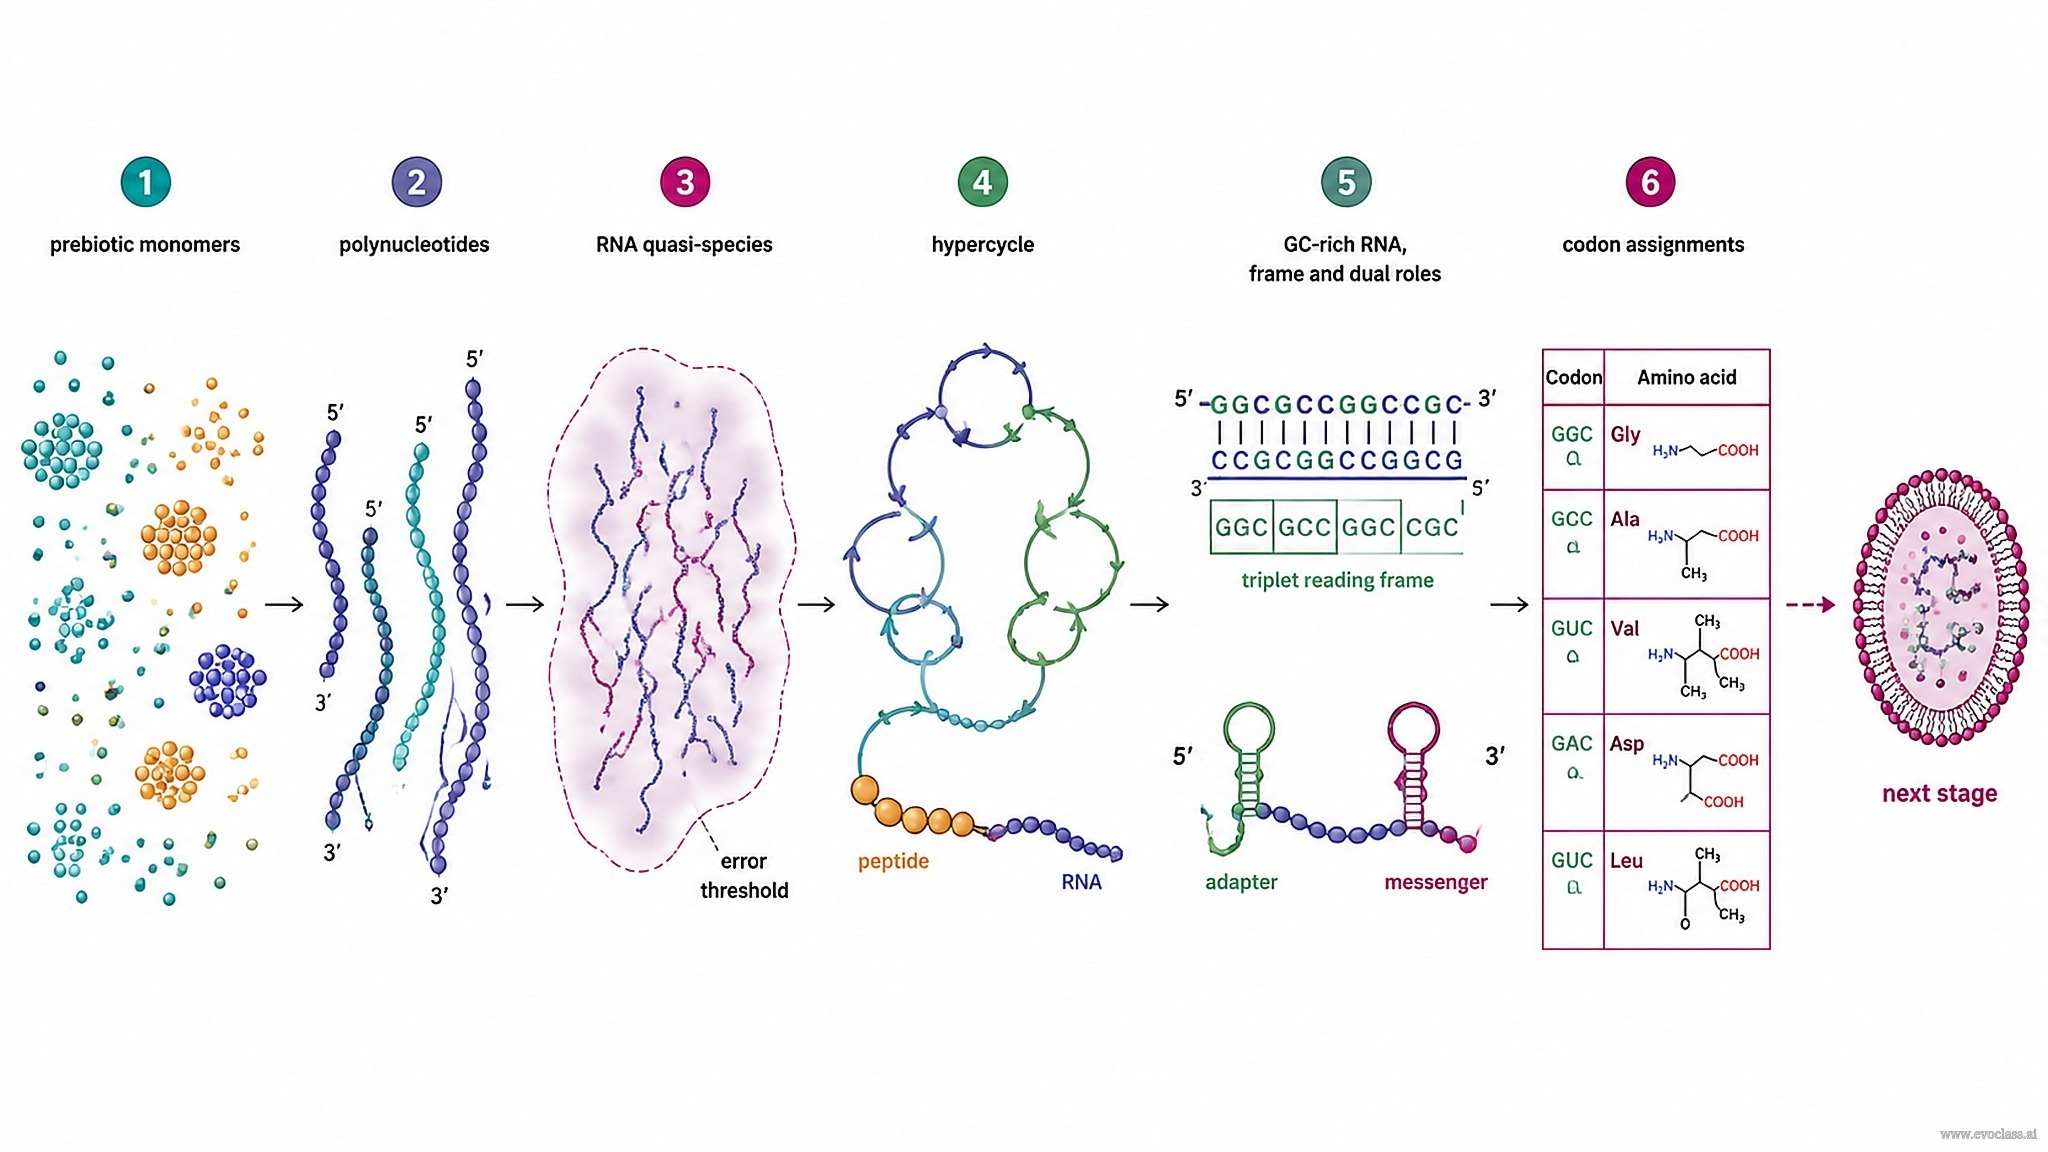
Cette page rassemble la continuité proposée entre les macromolécules prébiotiques et les premières attributions de codons. L'idée n'est pas qu'un seul événement ait produit un code génétique, mais qu'une série d'étapes physiques et informationnelles a progressivement restreint l'espace des attributions possibles, jusqu'à ne laisser qu'une petite correspondance exploitable entre triplets et acides aminés.
1. Un pool de départ non aléatoire
La synthèse prébiotique ne produit pas un mélange uniforme. Les acides aminés et les nucléotides s'accumulent selon des abondances fortement non aléatoires, et ces biais se propagent vers le haut : les monomères abondants et persistants sont ceux qui sont réellement disponibles pour être captés par les premières interactions de codage. C'est la disponibilité, et non l'optimisation, qui définit le menu initial dans lequel toute attribution doit être puisée.
2. Les polynucléotides comme quasi-espèces, et non comme molécules uniques
Les premiers polynucléotides n'évoluent pas comme une séquence unique optimisée, mais comme une quasi-espèce : un nuage de variants apparentés maintenus en équilibre mutation–sélection. Son contenu informationnel est plafonné par le seuil d'erreur — si le taux de mutation par site est trop élevé, la séquence maîtresse se dissout en une distribution de mutants uniforme et sans information. Une faible fidélité de réplication impose également une charge mutationnelle qui supprime les molécules plus longues. Le codage précoce part donc de séquences courtes, limitées par le seuil d'erreur, et non d'un long protogénome.
3. Couplage fonctionnel et organisation hypercyclique
Le couplage de la catalyse ARN à la fonction peptidique permet à des réplicateurs qui seraient autrement concurrents de se soutenir mutuellement. L'organisation hypercyclique est le moyen proposé pour intégrer ces fonctions et répondre aux objections classiques : la nucléation (comment le cycle débute), les parasites (espèces plus courtes qui exploitent le cycle sans y contribuer) et la perte d'information. Le couplage stabilise les interactions de type codage avant même l'existence d'un génome.
4. Les contraintes qui façonnent le codage précoce
- La réplication riche en GC biaise l'espace de séquences accessibles vers des matrices riches en G/C.
- Les cadres sans virgule évitent l'ambiguïté de décalage de cadre, de sorte que seuls certains codes à triplets peuvent être lus sans délimiteurs.
- L'ARN à double rôle : la même molécule peut servir d'adaptateur portant un acide aminé et de messager en cours de lecture ; toute attribution doit donc satisfaire simultanément ces deux rôles.
5. Les premières attributions et la suite du parcours
Dans ces contraintes, les premières attributions de codons impliquent plausiblement des triplets de type GGC/GCC associés à des acides aminés aliphatiques relativement abondants. La transition est un gradient, non un saut : elle présuppose une information limitée par le seuil d'erreur, une fermeture catalytique, et seulement plus tard une compartimentation, qui unifie le génome à l'intérieur d'une seule frontière et donne la protocellule intégrée.
Objectif de synthèse : être capable de retracer l'ordre proposé des événements — macromolécules et quasi-espèces, puis attributions de codons, puis hypercycles compartimentés, et enfin la protocellule intégrée.
Des macromolécules à l'attribution des codonsUn parcours de continuité linéaire dans lequel des pools non aléatoires de monomères prébiotiques alimentent des pools de polynucléotides, qui persistent sous forme de quasi-espèces d'ARN en équilibre mutation–sélection borné par le seuil d'erreur. Le couplage fonctionnel ARN–peptide et l'organisation hypercyclique soutiennent ensuite des cadres sans virgule riches en GC, avec des adaptateurs et des messagers à double rôle, à partir desquels émergent les premières attributions de codons — les hypercycles compartimentés, une protocellule intégrée et un génome unifié étant marqués comme l'étape suivante plutôt que comme une partie de cette étape.