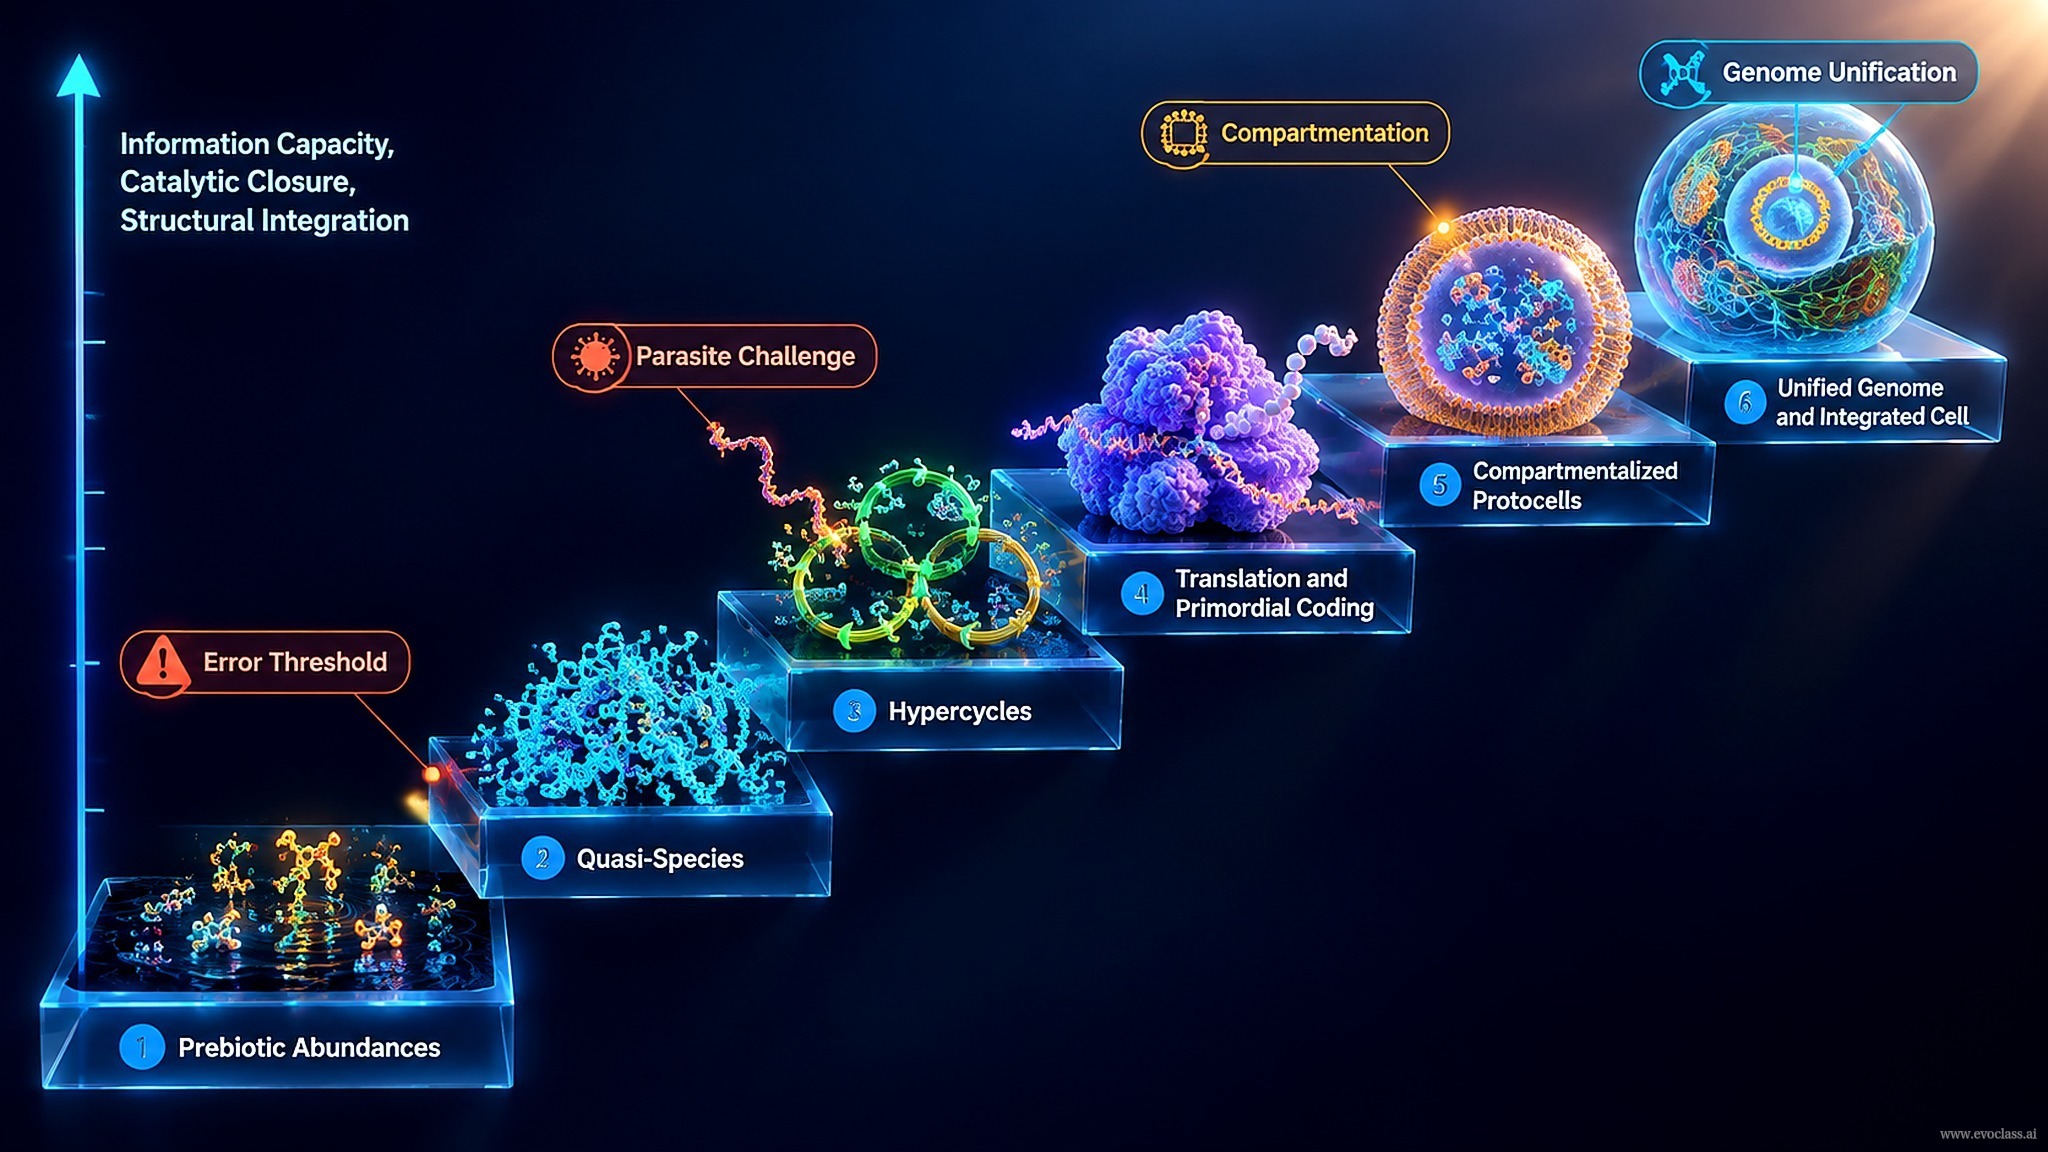
La cellule intégrée n'est pas une origine de la vie distincte, mais le point d'aboutissement d'une extension continue et par étapes de l'auto-organisation moléculaire. Chaque étape résout un problème précis d'information, de catalyse ou de parasitisme, tandis que la sélection darwinienne continue d'opérer au niveau moléculaire.
- Étape 1 — Matière première prébiotique : la synthèse prébiotique produit des acides aminés et des polynucléotides selon des abondances non aléatoires ; les biais de composition, tels que la réplication riche en GC, contraignent les tout premiers réplicateurs.
- Étape 2 — Quasi-espèces : la mutation et la sélection engendrent des populations de quasi-espèces dont le contenu informationnel stable est limité par la fidélité de réplication et le seuil d'erreur ; q̄m, σm et vm prédisent la perte ou le maintien de l'information.
- Étape 3 — Intégration hypercyclique : les couplages catalytiques, autocatalytiques et hypercycliques relient les réplicateurs en cycles coopératifs à croissance cohérente ; les parasites, la charge mutationnelle et l'échec de nucléation définissent les limites de l'organisation hypercyclique.
- Étape 4 — Traduction et codage primordial : les adaptateurs/messagers ARN, les cadres sans virgule, les premiers codons GGC/GCC et le transfert peptidique sans ribosome étendent les hypercycles à des polypeptides fonctionnels codés.
- Étape 5 — Compartimentation : les hypercycles compartimentés et les protocellules localisent la réplication et la traduction couplées, suppriment l'exploitation parasitaire et créent des unités de sélection de niveau supérieur dans des conditions aux limites réalistes.
- Étape 6 — Unification du génome : plusieurs réplicateurs hypercycliques sont consolidés en un génome intégré ; la correction de lecture de l'ADN, la recombinaison et une meilleure fidélité déplacent le seuil d'erreur et permettent des cellules intégrées plus grandes.
Principe de continuité : les transitions ne sont pas des origines distinctes, mais des accroissements successifs de la fermeture catalytique, de la capacité informationnelle et de l'intégration structurelle ; les modes de défaillance tels que la catastrophe d'erreur, l'exploitation parasitaire et l'échec de fonction conjointe marquent des frontières que les étapes ultérieures doivent franchir.
Synthèse formelle avec la théorie de la sélection : l'analyse des points fixes et du jacobien, les cycles limites, la bifurcation de Hopf et les régimes de couplage décrivent quand l'intégration est stable et quand elle s'effondre. La mutagenèse du phage Qβ illustre les distributions de mutants et le seuil d'erreur, et le jeu d'évolution de phrases montre comment la fidélité limite l'information ; la correction de lecture de l'ADN et la recombinaison relâchent ensuite cette limite, ce qui aide à expliquer comment des génomes unifiés ont pu émerger des hypercycles ARN/protéines antérieurs.
Continuité des polynucléotides à la cellule intégréeUn escalier en six étapes, des abondances prébiotiques au génome unifié, dont l'axe vertical marque la croissance de la capacité informationnelle, de la fermeture catalytique et de l'intégration structurelle ; des annotations signalent le seuil d'erreur, le défi des parasites, la compartimentation et l'unification du génome.