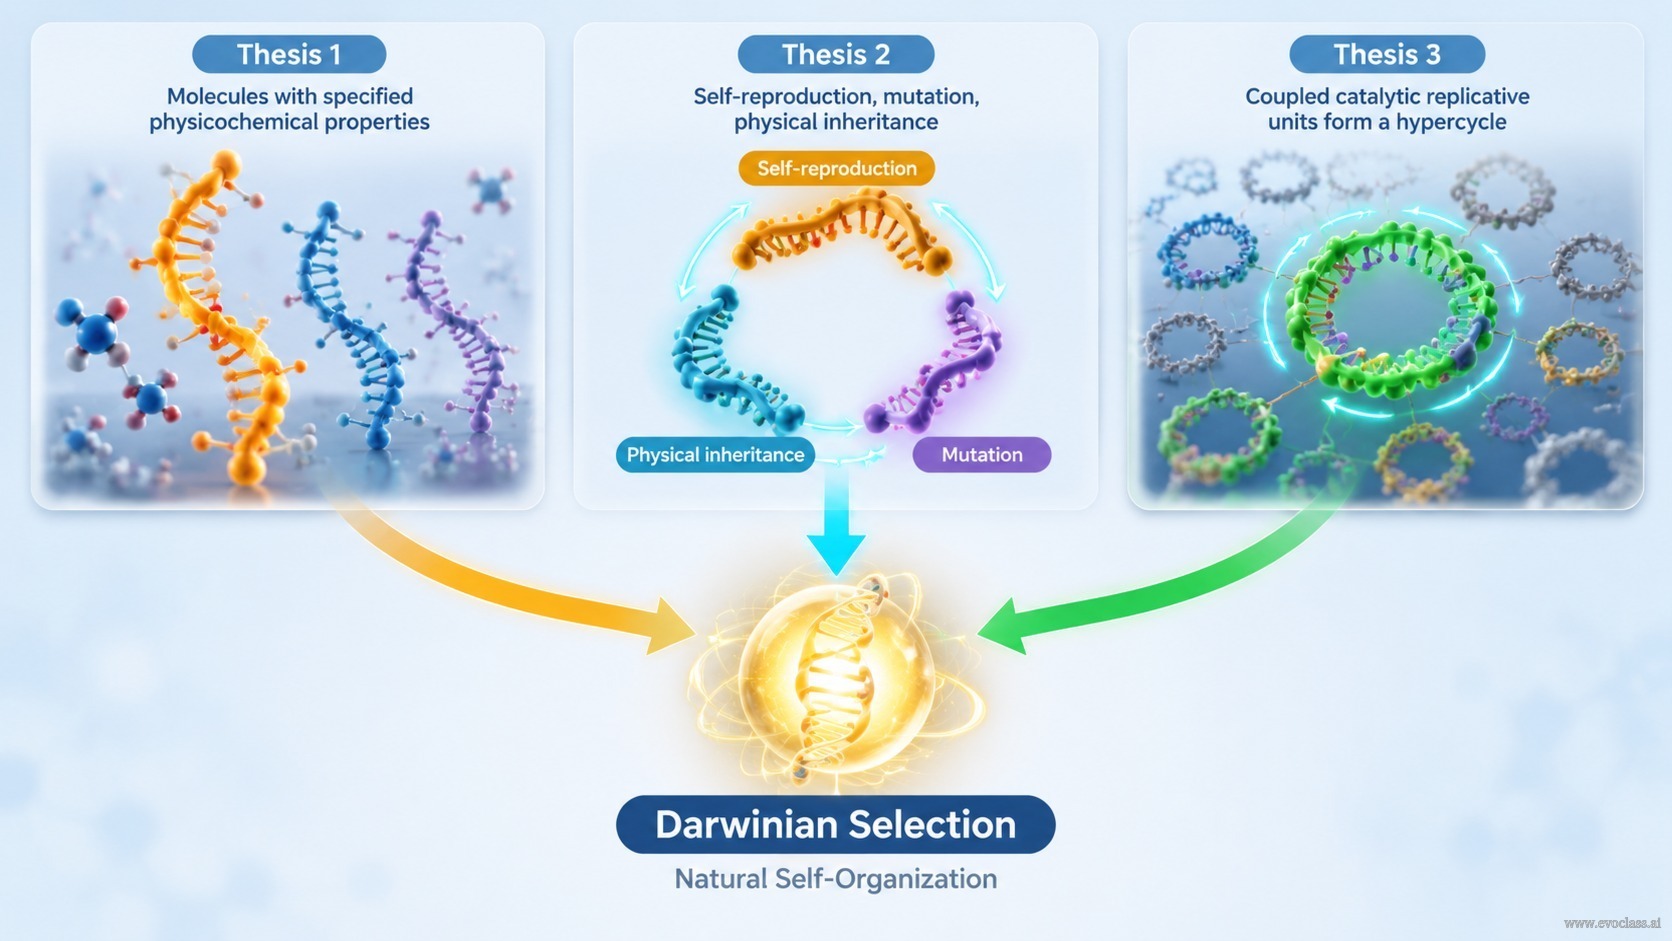
Teori Hypercycle mengajukan tiga tesis utama yang bersama-sama menjelaskan bagaimana replikasi molekuler dapat diintegrasikan dengan seleksi Darwinian. Tesis-tesis tersebut bergerak dari prasyarat molekuler seleksi, menuju persyaratan dinamika Darwinian, hingga organisasi tingkat tinggi yang menghubungkan unit-unit yang mereplikasi diri.
Tesis 1 — Dasar Molekuler yang Terspesifikasi
Seleksi dan evolusi bukanlah atribut global dari segala bentuk materi sembarang. Keduanya merupakan konsekuensi dari sifat fisikokimia yang khas dan dapat dispesifikasikan. Menurut tesis ini, suatu sistem dapat dikatakan mengalami seleksi hanya jika molekul-molekul penyusunnya memiliki ciri kinetik, termodinamika, dan struktural yang konkret yang memungkinkan replikasi diferensial. Seruan kepada materi atau swa-organisasi secara abstrak tidaklah memadai; mekanismenya harus diidentifikasi.
Tesis 2 — Persyaratan untuk Seleksi Darwinian
Seleksi Darwinian memerlukan tiga kapasitas yang diwujudkan secara molekuler: reproduksi diri, mutasi, dan dasar fisik untuk pewarisan. Reproduksi diri menyediakan kesinambungan keturunan; mutasi menyediakan variasi; dan mekanisme pewarisan fisik memastikan bahwa struktur molekuler yang berubah diwariskan kepada keturunan. Tanpa ketiga hal tersebut, suatu proses dapat berubah seiring waktu tetapi tidak merupakan seleksi Darwinian.
Tesis 3 — Organisasi Hiper Siklik
Teori Hypercycle mengajukan integrasi swa-organisasi, katalitik, dan fungsional dari unit-unit yang mereplikasi diri. Organisasi tingkat tinggi inilah yang menghubungkan replikasi molekuler dengan seleksi Darwinian dan swa-organisasi alami. Replikator yang terisolasi dibatasi oleh ketelitian penyalinan yang terbatas dan ambang kesalahan; organisasi hiper siklik menawarkan cara bagi beberapa entitas replikatif untuk dipertahankan dan digabungkan, sehingga kolektif tersebut dapat memelihara dan mengembangkan lebih banyak informasi daripada satu unit tunggal.
Saling Ketergantungan dan Kendala
Ketiga tesis tersebut saling bergantung. Tesis 2 menetapkan persyaratan molekuler untuk seleksi, sedangkan Tesis 3 membahas bagaimana unit-unit tersebut dapat diorganisasi melampaui replikator yang terisolasi. Ketelitian penyalinan dan ambang kesalahan berperan sebagai kendala yang menghubungkan tesis-tesis tersebut: keduanya menentukan seberapa banyak informasi yang dapat dipelihara oleh satu unit replikatif dan karena itu mendorong integrasi. Setiap tesis harus diberi mekanisme molekuler atau fisikokimia yang konkret; sekadar menyerukan swa-organisasi atau materi tidak memenuhi teori ini.
Tiga Tesis Utama Teori HypercycleVisual ini merangkum tiga tesis utama: dasar molekuler yang terspesifikasi untuk seleksi, persyaratan molekuler seleksi Darwinian (reproduksi diri, mutasi, pewarisan fisik), dan organisasi hiper siklik dari unit-unit yang mereplikasi diri. Panah menunjukkan bahwa ketiganya bertemu pada seleksi Darwinian dan swa-organisasi alami.