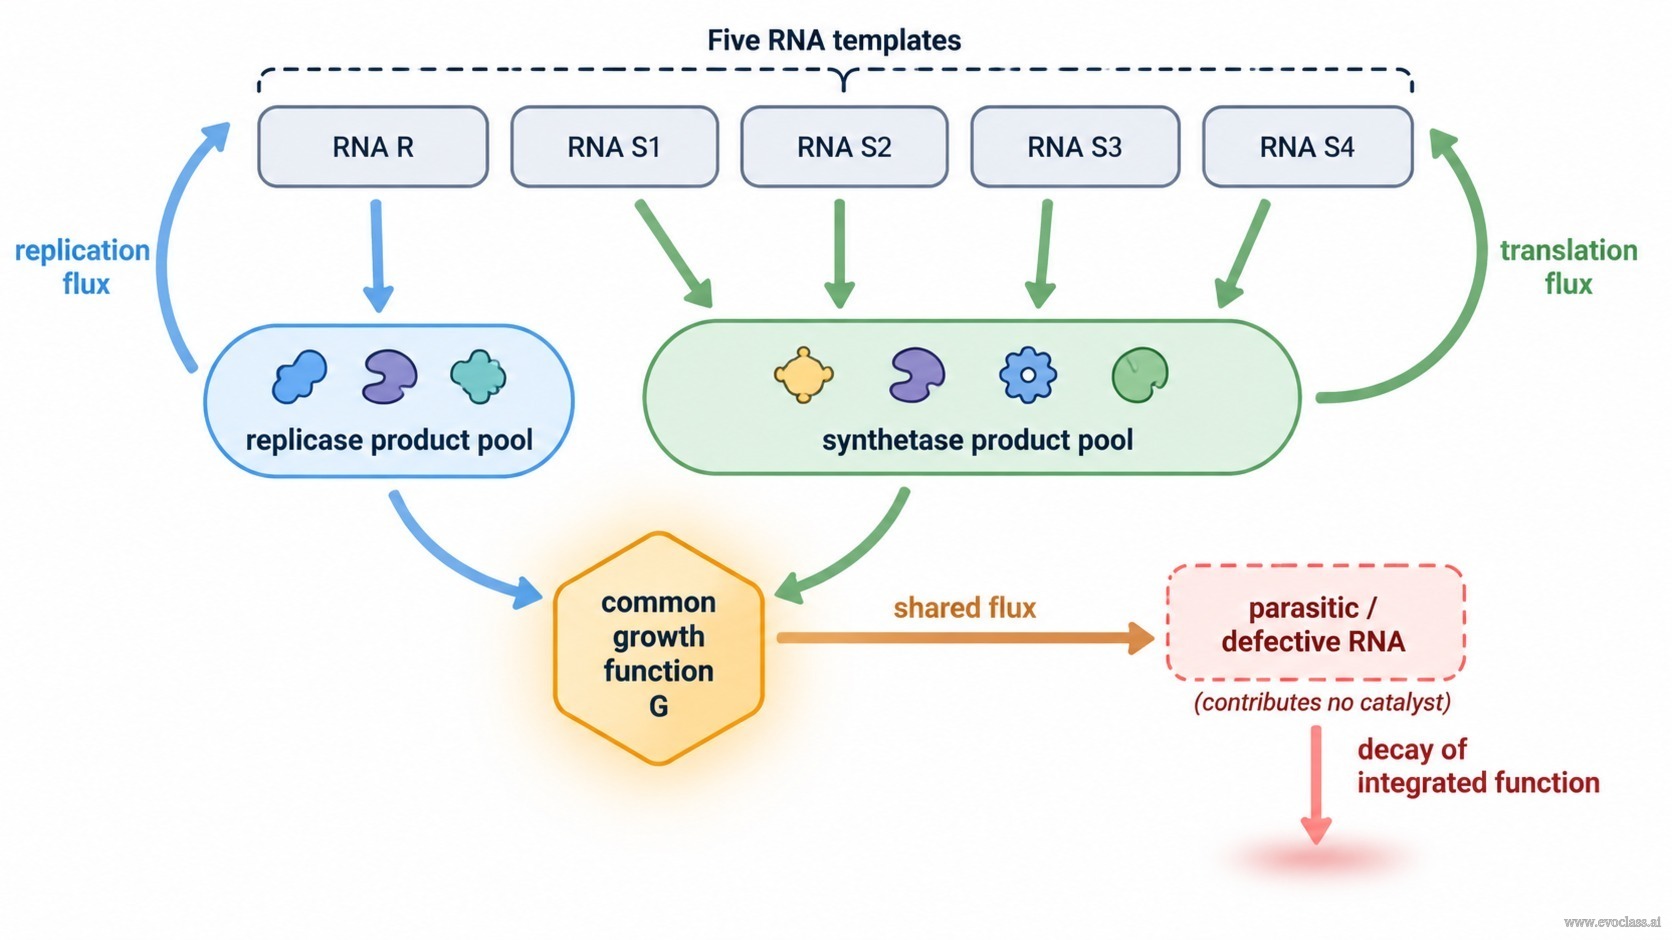
Skema minimum replikase–sintetase adalah hipercycle terkopel translasi terkecil yang dapat dituliskan sebagai proposal molekuler konkret: sekumpulan untai RNA di mana satu cetakan (R) mengkodekan replikase dan empat cetakan (S1–S4) mengkodekan sintetase. Skema ini sengaja bukan berupa satu RNA yang mereplikasi diri sendiri. Sebaliknya, skema ini adalah sebuah konsorsium: populasi RNA yang sama menyediakan cetakan untuk replikasi sekaligus pesan untuk translasi.
Keterkaitan fungsional: produk replikase menyalin kelima untai RNA, sementara produk sintetase memungkinkan translasi kelima untai yang sama. Karena populasi yang sama merupakan cetakan sekaligus produk katalitik, replikasi dan translasi saling terkopel alih-alih menjadi subsistem terpisah. Kopling ini adalah inti arsitektural dari hipercycle minimum.
Reduksi pertumbuhan bersama: ketika katalis bekerja pada keseluruhan kumpulan, suku replikasi dan translasi individual tidak lagi privat bagi untai yang mengkodekan katalis tersebut. Suku-suku itu menjadi suku kumpulan bersama. Secara matematis, sistem terkopel tersebut mereduksi menjadi satu fungsi pertumbuhan bersamaG untuk semua untai. Pertumbuhan bersih setiap untai dapat dituliskan sebagai kontribusi kolektif ditambah suku komposisi relatif, tetapi imbalan selektif untuk menghasilkan katalis menjadi terdilusi karena setiap anggota memanfaatkan fluks pertumbuhan yang sama.
Mekanisme peluruhan: karena semua anggota memanfaatkan fluks pertumbuhan yang sama, mutan yang mengurangi atau menghilangkan produksi katalitik tetap menerima manfaat bersama. Jika varian tersebut bereplikasi lebih cepat—misalnya karena RNA-nya lebih pendek—frekuensi relatifnya dapat meningkat tanpa menyumbang aktivitas replikase atau sintetase. Hal ini mendilusi katalis fungsional dan memungkinkan untai parasit atau degenerat terakumulasi. Oleh karena itu, skema minimum saja tidak cukup untuk integrasi Darwinian yang kokoh.
Implikasi stabilitas: untuk menekan peluruhan, diperlukan organisasi tambahan. Kompartementalisasi, struktur spasial, atau penutupan hipercyclic dapat membuat kelangsungan hidup suatu untai bergantung pada kontribusi katalitiknya sendiri dengan melokalisasi katalis, cetakan, dan produk secara bersamaan. Organisasi semacam itu menjaga keseimbangan stoikiometrik dan mencegah fluks pertumbuhan bersama dikuasai oleh varian non-produktif.
Nuansa analitis: dalam pembahasan sumber (halaman 66–76), reduksi pertumbuhan bersama diungkap melalui transformasi afin terhadap variabel populasi. Transformasi ini memisahkan modus pertumbuhan kolektif dari modus komposisi relatif. Modus pertumbuhan bersama menggambarkan ekspansi seluruh ensembel, sedangkan modus lainnya menggambarkan bagaimana komposisi berubah—termasuk invasi untai parasit atau rusak. Perubahan koordinat ini menjelaskan mengapa pertumbuhan bersama tidak dapat secara selektif memberi imbalan atas kontribusi katalitik setiap komponen.
Skema Minimum Replikase dan SintetaseLima cetakan RNA—R mengkodekan replikase dan S 1 –S 4 mengkodekan sintetase—mengalir ke kumpulan produk replikase dan sintetase. Kedua kumpulan tersebut bertemu pada fungsi pertumbuhan bersama G. RNA parasit bergaris putus-putus menerima fluks yang sama tetapi tidak menyumbang katalis, sehingga menyebabkan peluruhan fungsi terintegrasi.