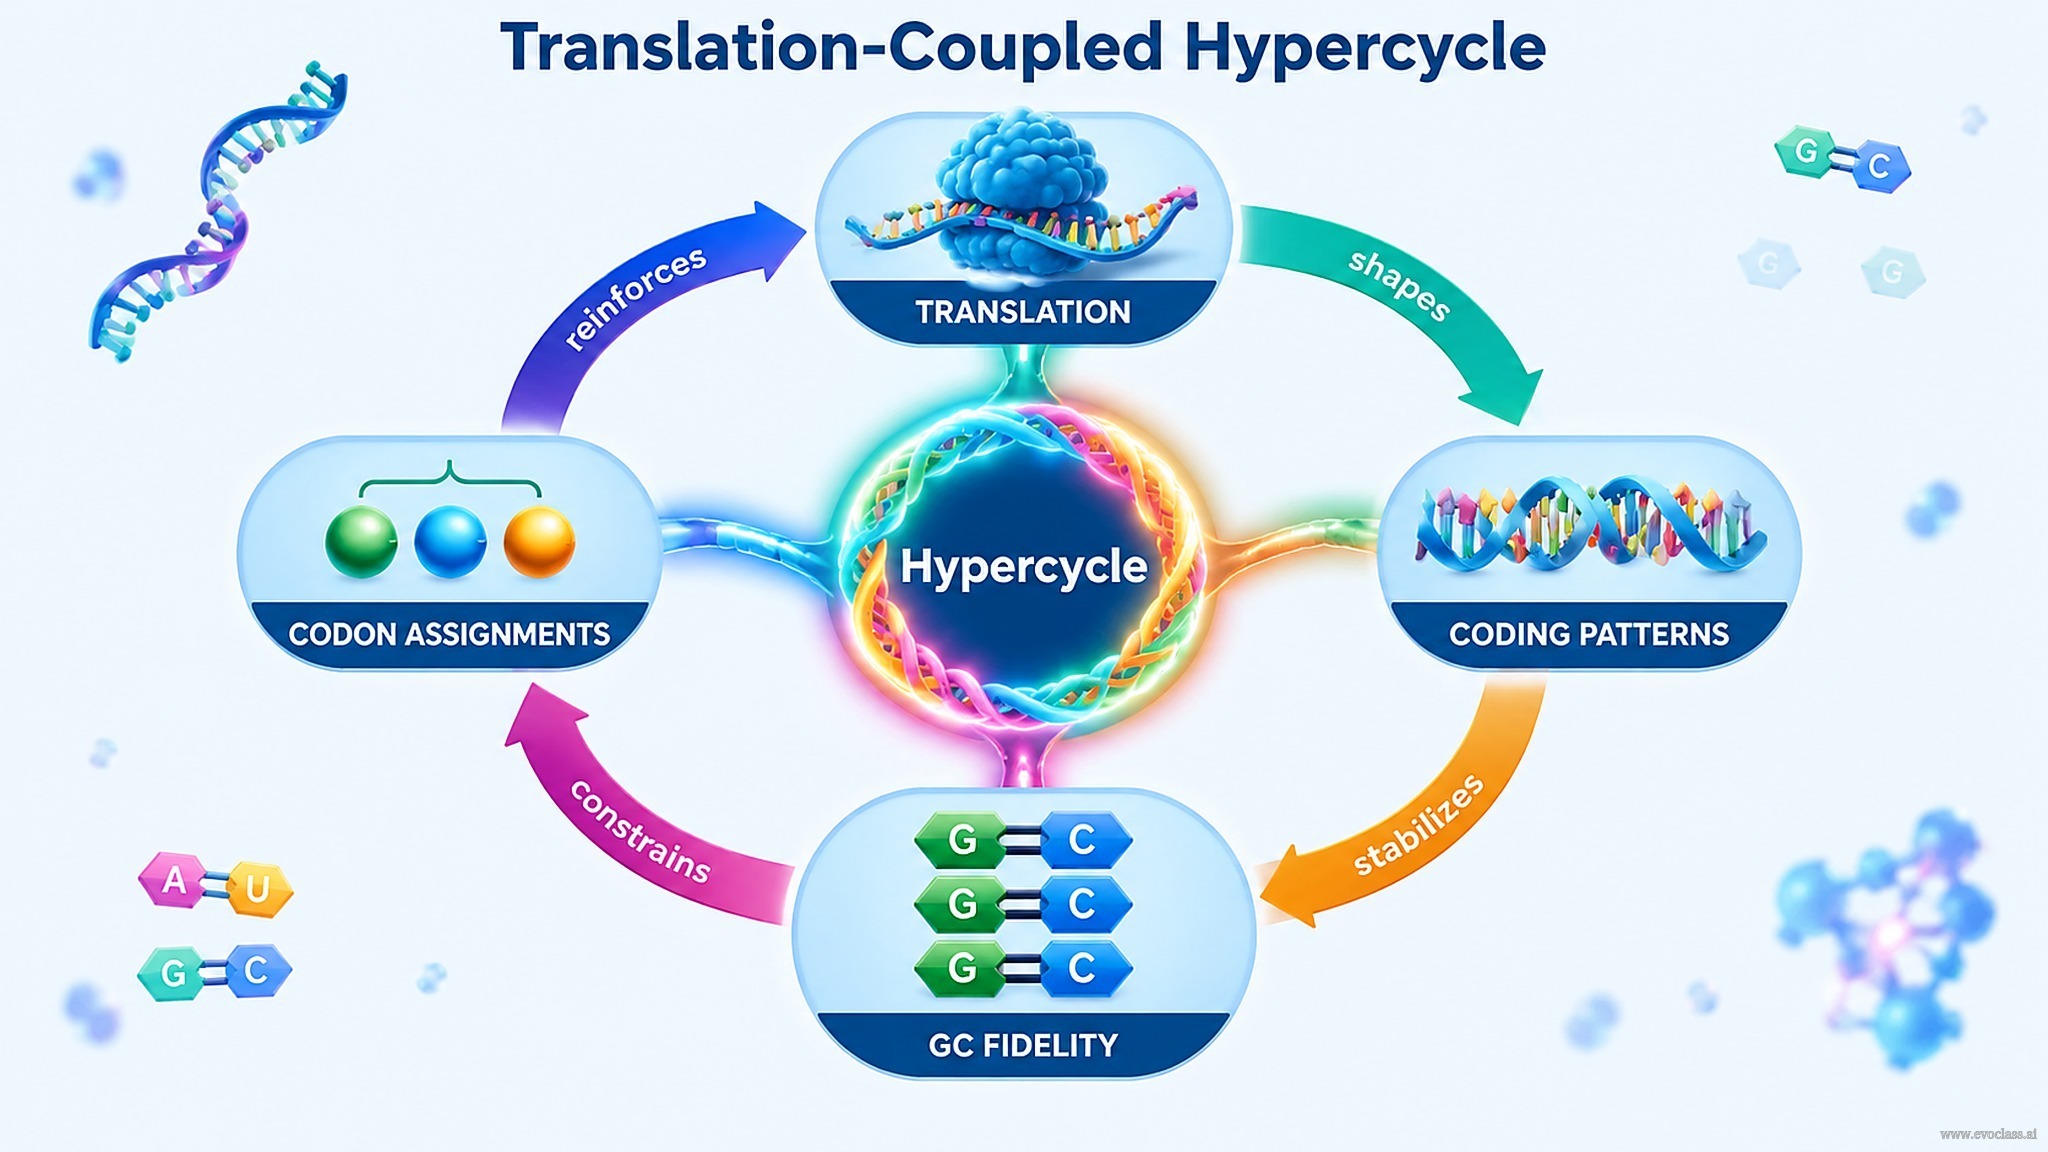
Halaman ini mengintegrasikan tiga alur yang sebelumnya terpisah menjadi satu skenario prebiotik yang koheren: dinamika hipercycle yang terkait dengan translasi, logika pengodean primordial, dan kimia RNA kaya GC. Sintesis ini menunjukkan bahwa hipercycle yang realistis tidak dapat dibentuk hanya dari istilah replikasi dan translasi yang dibagikan; diperlukan kaitan katalitik tertutup di antara fungsi-fungsi yang dikodekan RNA.
Dari Ensembel yang Meluruh menuju Kaitan Katalitik Tertutup
Skema minimum di mana satu set untai RNA mengodekan satu fungsi replikase dan empat fungsi sintetase menggambarkan masalah ini. Ketika istilah replikasi dan translasi dibagikan, keduanya melebur menjadi satu fungsi pertumbuhan yang sama, sehingga ensembel meluruh melalui kompetisi internal. Bahan yang hilang adalah kaitan katalitik tertutup: setiap fungsi yang dikodekan RNA harus berkontribusi terhadap replikasi atau translasi fungsi lainnya, sehingga kolektif tersebut bertahan sebagai hipercycle dan bukan sebagai kumpulan templat yang bersaing.
Pengodean Primordial dan Pembacaan Tanpa Ribosom
Pengodean primordial harus menyelesaikan koherensi kerangka, pembacaan tanpa koma, dan transfer peptida tanpa ribosom. Pesan primitif dapat dibaca melalui adaptor mirip tRNA yang beralih antara konfigurasi hf dan FH selama transfer peptida (lih. Gbr. 49). Identitas konfigurasi aktif bergantung pada apakah molekul mirip tRNA membawa asam amino atau terikat pada rantai peptida yang sedang tumbuh. Transfer asam amino ke rantai peptida membalik adaptor dari hf ke FH, memungkinkan pembacaan secara prosesif tanpa aparatus translasi yang canggih. Kontak loop antikodon lima pasangan basa dan dua konformasi loop menjaga peptidil-tRNA yang sedang tumbuh tetap terikat pada pesan. Koherensi kerangka dan penguraian tanpa koma memastikan bahwa pembacaan tetap dalam register dan tidak runtuh menjadi kerangka baca yang tumpang tindih atau alternatif.
Kimia Kaya GC dan Penetapan Kodon Awal
Urutan kaya GC menyediakan stabilitas dan akurasi dupleks yang lebih besar, menjadikannya kemungkinan prekursor bagi adaptor dan pembawa pesan pertama yang dapat direproduksi. Ketidaksempurnaan AU dapat kemudian memperkenalkan variasi yang relevan secara selektif. Penetapan kodon awal, seperti GGC/GCC dan langkah GAC/GUC berikutnya, diinterpretasikan melalui kimia fisik dan kelimpahan nukleotida, bukan melalui aparatus translasi yang sepenuhnya modern. Kisi GC aperiodik dengan ketidaksempurnaan AU yang menguntungkan secara selektif, serta kriteria struktural di balik alfabet asam amino primer, melengkapi gambaran tersebut.
Alur-alur ini bukanlah inovasi yang independen. Pola pengodean membatasi transfer mirip translasi, transfer mirip translasi memerlukan penutupan katalitik, dan kimia kaya GC menetapkan ambang stabilitas untuk keduanya. Skenario yang dihasilkan memperlakukan asal-usul translasi dan asal-usul kode genetik sebagai masalah molekuler yang terkait.
Sintesis Translasi dan Pengodean PrimordialPeta konsep ini mengintegrasikan kaitan katalitik tertutup di antara fungsi-fungsi yang dikodekan RNA, pengodean primordial dengan koherensi kerangka dan pembacaan tanpa koma, transfer peptida tanpa ribosom melalui pembalikan adaptor hf/FH, akurasi dan stabilitas kaya GC, serta penetapan kodon awal seperti GGC/GCC. Panah menunjukkan kendala mutual dan umpan balik di antara translasi, pengodean, dan organisasi hiper siklik.