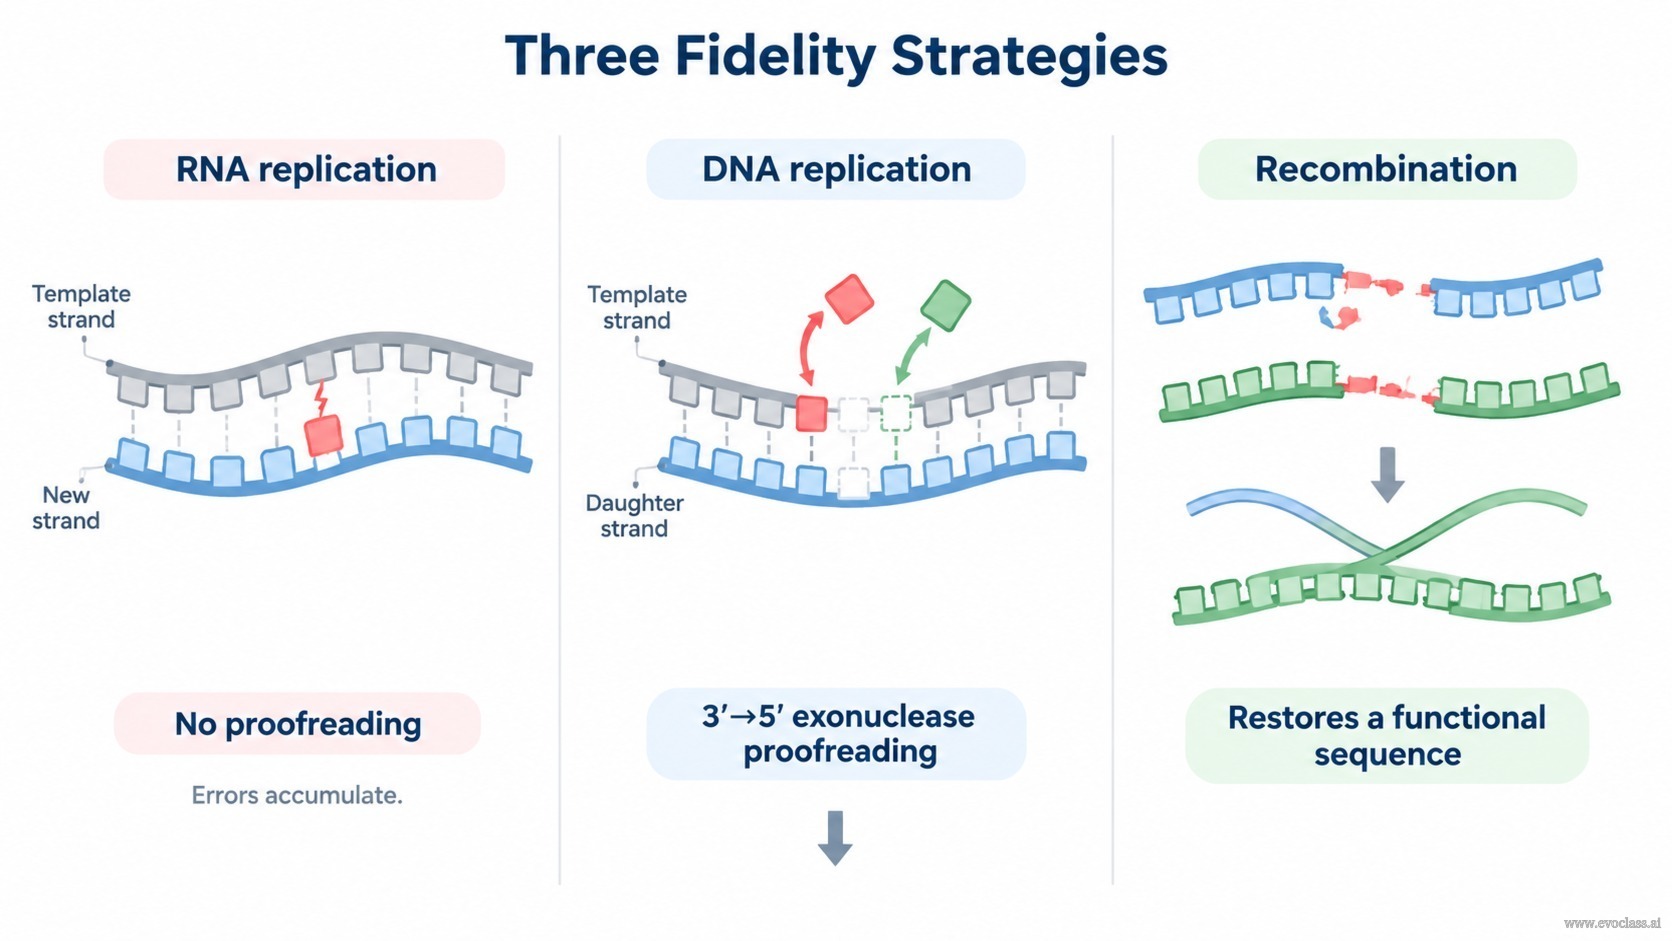
Tre strategie distinte determinano quanta informazione un replicatore può conservare: la fedeltà intrinseca della replicazione dell'RNA, la correzione di bozze esonucleasica aggiunta dalla replicazione del DNA e la ricombinazione, che modifica l'informazione a livello di stampi e popolazioni anziché di singole coppie di basi. Insieme esse stabiliscono il tasso di mutazione effettivo — e quindi dove cade la soglia di errore e quanto può rimanere stabile una quasi-specie.
Replicazione dell'RNA: copia veloce senza correzione di bozze
Le RNA replicasi generalmente estendono un filamento in crescita senza un dominio esonucleasico 3′→5′. Un nucleotide incorporato erroneamente non viene quindi né riconosciuto né rimosso: la replicazione è un singolo passaggio di sintesi non editoriale, e l'errore viene trasmesso al filamento figlio. Il risultato è un elevato tasso di errore per base, dell'ordine di un errore ogni 10⁴ basi copiate. Poiché la frazione di progenie priva di errori diminuisce all'aumentare della lunghezza del genoma, i genomi lunghi non possono essere mantenuti, per cui i genomi a RNA rimangono compatti e si collocano vicino alla soglia di errore. Gli esperimenti di mutagenesi sul fago Qβ illustrano questo regime: invece di una singola sequenza wild-type netta, la popolazione appare come una vasta nube di mutanti distribuita attorno a una sequenza master.
Replicazione del DNA: la correzione di bozze permette di guadagnare lunghezza del genoma
Le DNA polimerasi di solito possiedono un'attività esonucleasica 3′→5′ che ispeziona il terminale 3′ appena aggiunto. Quando rileva un appaiamento errato, l'enzima inverte la direzione e idrolizza il nucleotide errato prima che l'estensione riprenda, così l'errore viene rimosso e viene inserita la base corretta. La correzione di bozze sovrapposta alla selettività dell'appaiamento riduce il tasso di errore di due o tre ordini di grandezza. In termini di soglia di errore, un'accuratezza per base q più elevata innalza il genoma più grande che la selezione può mantenere: con νmax ≈ ln σm ⁄ (1 − q), un tasso di errore più piccolo (1 − q) allenta il vincolo e permette genomi più grandi con ereditarietà stabile. I mutanti dell'esonucleasi della DNA polimerasi, che perdono la correzione di bozze, mostrano esattamente l'aumento previsto del tasso di mutazione e una dimensione efficace del genoma ridotta.
Ricombinazione: riparazione e riassortimento a livello di stampo
La ricombinazione non migliora l'appaiamento delle basi nel sito attivo della polimerasi. Agisce invece sugli stampi e sulle popolazioni. La ricombinazione omologa può ricostruire una sequenza intatta da due stampi danneggiati in modo diverso; lo scambio di stampo può salvare una copia bloccata o carica di errori; e il riassortimento può combinare varianti benefiche in un unico background eliminando quelle deleterie. Il suo vantaggio dipende dalla co-infezione, dall'omologia disponibile e dalla forza della selezione, per cui dal punto di vista delle quasi-specie la ricombinazione modifica il carico mutazionale effettivo e l'equilibrio mutazione–selezione a livello di popolazione, non il tasso di errore per base in sé.
Soglia di errore e conseguenze sulle quasi-specie
L'elevato tasso di errore dell'RNA vincola νmax e mantiene le popolazioni vicine alla soglia di errore; la correzione di bozze del DNA abbassa il tasso di errore e allenta quel vincolo; la ricombinazione può ridurre il carico mutazionale effettivo o rigenerare sequenze adatte, spostando la distribuzione delle varianti su cui agisce la selezione. Il principio comparativo ne deriva direttamente: la fedeltà dell'RNA favorisce la variazione rapida e l'informazione compatta, la correzione di bozze del DNA favorisce l'espansione del genoma e l'ereditarietà stabile, e la ricombinazione favorisce la riparazione a livello di popolazione e l'innovazione modulare. Sono strategie complementari, non mutuamente esclusive, e i replicatori reali le combinano in gradi diversi.
Principio comparativo. Fedeltà dell'RNA: variazione rapida, genomi compatti, elevato carico di errori. Correzione di bozze del DNA: tasso di errore inferiore di ordini di grandezza, νmax aumentato, genomi grandi ereditati stabilmente. Ricombinazione: nessun cambiamento nell'accuratezza dell'appaiamento, ma riparazione a livello di popolazione, riassortimento e rimozione delle varianti deleterie.
Tre strategie di fedeltàA sinistra: la replicazione dell'RNA inserisce una base appaiata in modo errato e, in assenza di correzione di bozze, la lascia nel filamento figlio, per cui il tasso di errore per base rimane elevato. Al centro: l'esonucleasi 3′→5′ di una DNA polimerasi escinde il nucleotide 3′ appaiato in modo errato e inserisce quello corretto, abbassando il tasso di errore di ordini di grandezza. A destra: la ricombinazione unisce due stampi danneggiati in modo diverso per ripristinare una sequenza funzionale, riparando l'informazione a livello di popolazione anziché di una singola coppia di basi.