Una unità replicativa precoce doveva affrontare un vincolo fisico ben preciso. La copiatura non è mai perfetta, e la soglia d'errore lega la quantità di informazione che un replicatore può portare all'accuratezza della sua replicazione: più lunga è la sequenza, più posizioni sono esposte a errori di copiatura a ogni ciclo, e più rapidamente il messaggio codificato si degrada. I replicatori precoci dovevano quindi restare abbastanza piccoli da essere copiati con una fedeltà utilizzabile, ma al tempo stesso abbastanza strutturati da svolgere una funzione significativa. Le molecole che soddisfano entrambi i requisiti contemporaneamente hanno dimensioni sorprendentemente modeste — dell'ordine del tRNA, all'incirca 70–90 nucleotidi.
Il compromesso tra dimensioni e fedeltà
Scriviamo la condizione per mantenere una sequenza significativa come q̄m ·
Perché le molecole simili al tRNA rientrano nella finestra
Un RNA simile al tRNA è piccolo, ma non privo di forma. Si ripiega in modo riproducibile in un compatto trifoglio che si condensa ulteriormente in una struttura stabile a forma di L, e può essere caricato con un amminoacido alla sua estremità 3′. La riproducibilità del ripiegamento è la proprietà decisiva: la stessa sequenza produce sempre la stessa forma, così una singola molecola può essere contemporaneamente uno stampo e un oggetto funzionale. Le dimensioni ridotte la mantengono sotto la soglia d'errore; un ripiegamento stabile le permette di fare chimica — riconoscimento, legame, gestione degli amminoacidi e assistenza catalitica.
Integrazione senza ligazione
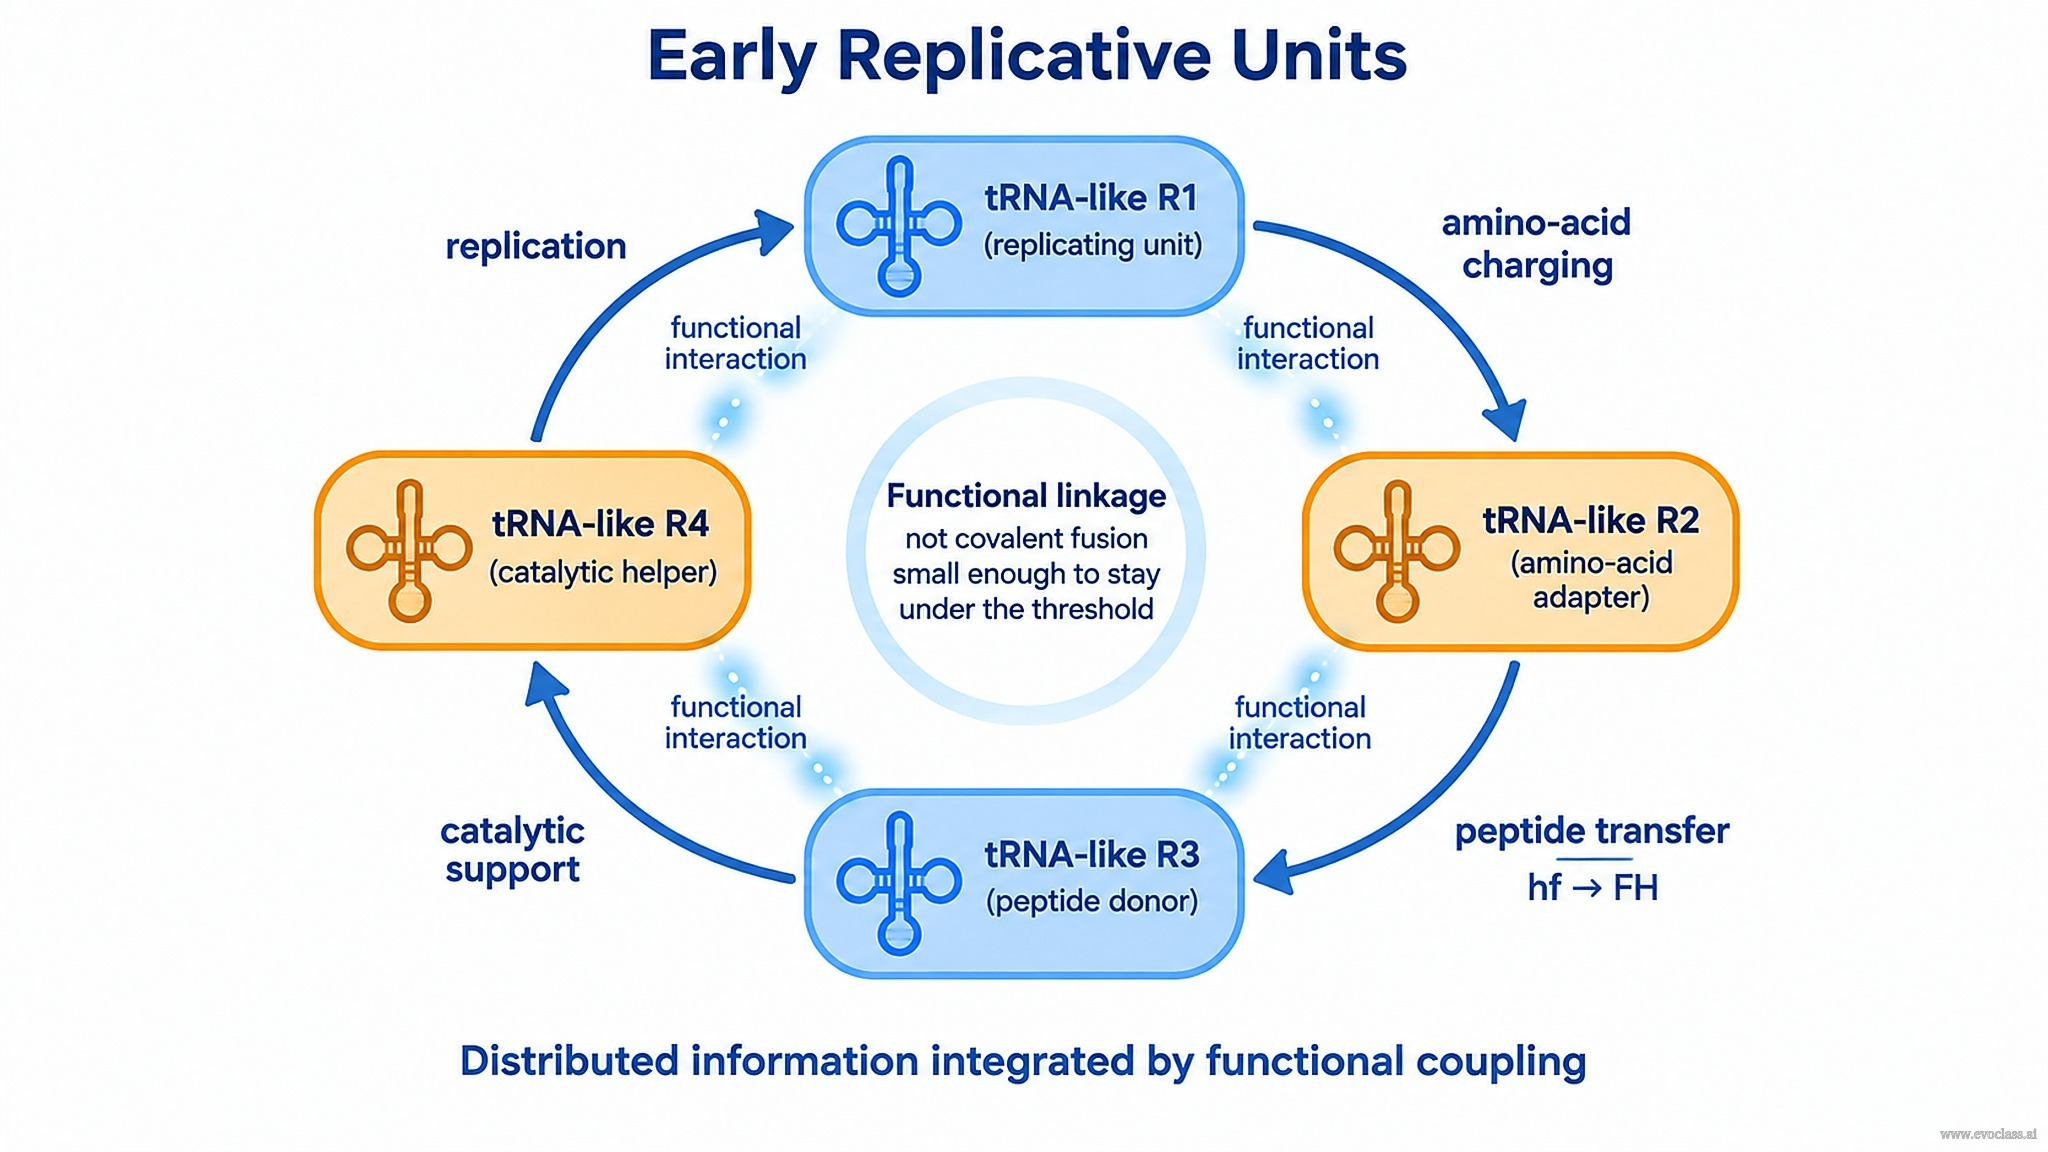
Distribuire l'informazione totale su diversi piccoli replicatori risolve il problema delle dimensioni ma ne crea uno nuovo: un insieme di replicatori indipendenti è un insieme di concorrenti, e vince il più corto o il più veloce. L'argomentazione chiave di questa diapositiva è che l'integrazione non richiede di unire le molecole in un unico grande genoma. L'integrazione può essere funzionale: il prodotto di ogni molecola — un RNA, un amminoacido, un peptide, una superficie catalitica — diventa una risorsa per un'altra molecola. Quando queste dipendenze si chiudono in un ciclo, l'insieme si comporta come un'unica unità cooperativa, e questo sostegno reciproco ciclico è la più semplice realizzazione di un'organizzazione iperciclica. È l'accoppiamento funzionale, non la fusione covalente, a mantenere intatta l'informazione distribuita.
Molecole simili al tRNA come adattatori per la chimica peptidica primitiva
Le stesse molecole forniscono il ponte verso la sintesi peptidica. Un RNA simile al tRNA può agire come adattatore o messaggero: trasporta un amminoacido specifico e può cederlo a una catena peptidica in crescita senza alcun apparato sofisticato. Poiché deve essere gestito solo un numero limitato di amminoacidi sufficientemente comuni, e poiché la specificità può risiedere nella sequenza stessa dell'RNA, diventa concepibile una chimica primitiva simile alla traduzione utilizzando replicatori già presenti per altre ragioni.
Il cambio di configurazione hf → FH
Se un dato tRNA si trovi nella hf o nella FH configurazione dipende da ciò a cui è legato: un amminoacido o una catena peptidica. Trasferire l'amminoacido alla catena peptidica fa passare la molecola da hf a FH. Il modello spiega bene come, in assenza di un apparato di traduzione sofisticato, un messaggio possa essere letto — lo stato del tRNA stesso registra se la fase di trasferimento è avvenuta, conferendo al processo una direzione che un semplice equilibrio chimico non fornirebbe.
In sintesi: molecole piccole, ripiegamenti stabili e accoppiamento funzionale ciclico — non un grande genoma — sono ciò che permette all'informazione precoce di sopravvivere alla soglia d'errore.
Unità replicative precociQuattro replicatori di RNA simili al tRNA sono disposti su un ciclo e collegati solo da interazioni funzionali — caricamento amminoacidico, trasferimento peptidico (durante il quale il vettore passa dalla configurazione hf a quella FH), supporto catalitico e replicazione. Poiché le dipendenze si chiudono su se stesse, l'insieme si comporta come un'unica unità integrata, così l'informazione distribuita sopravvive senza essere ligata in un unico grande genoma.