8
Limiti dell'organizzazione iperciclica e dinamica dei parassiti
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00

L'organizzazione iperciclica può integrare diverse unità catalitiche in un'unica rete autoriproducente, ma tale integrazione è limitata. In condizioni di dinamica di azione di massa a organizzazione costante, un iperciclo affronta simultaneamente due pressioni distinte: parassiti autoriproduttivi che raccolgono la catalisi senza restituirla, e il carico mutazionale combinatorio che cresce rapidamente con l'allungamento del genoma. Insieme, questi fattori definiscono un limite centrale dell'organizzazione iperciclica.

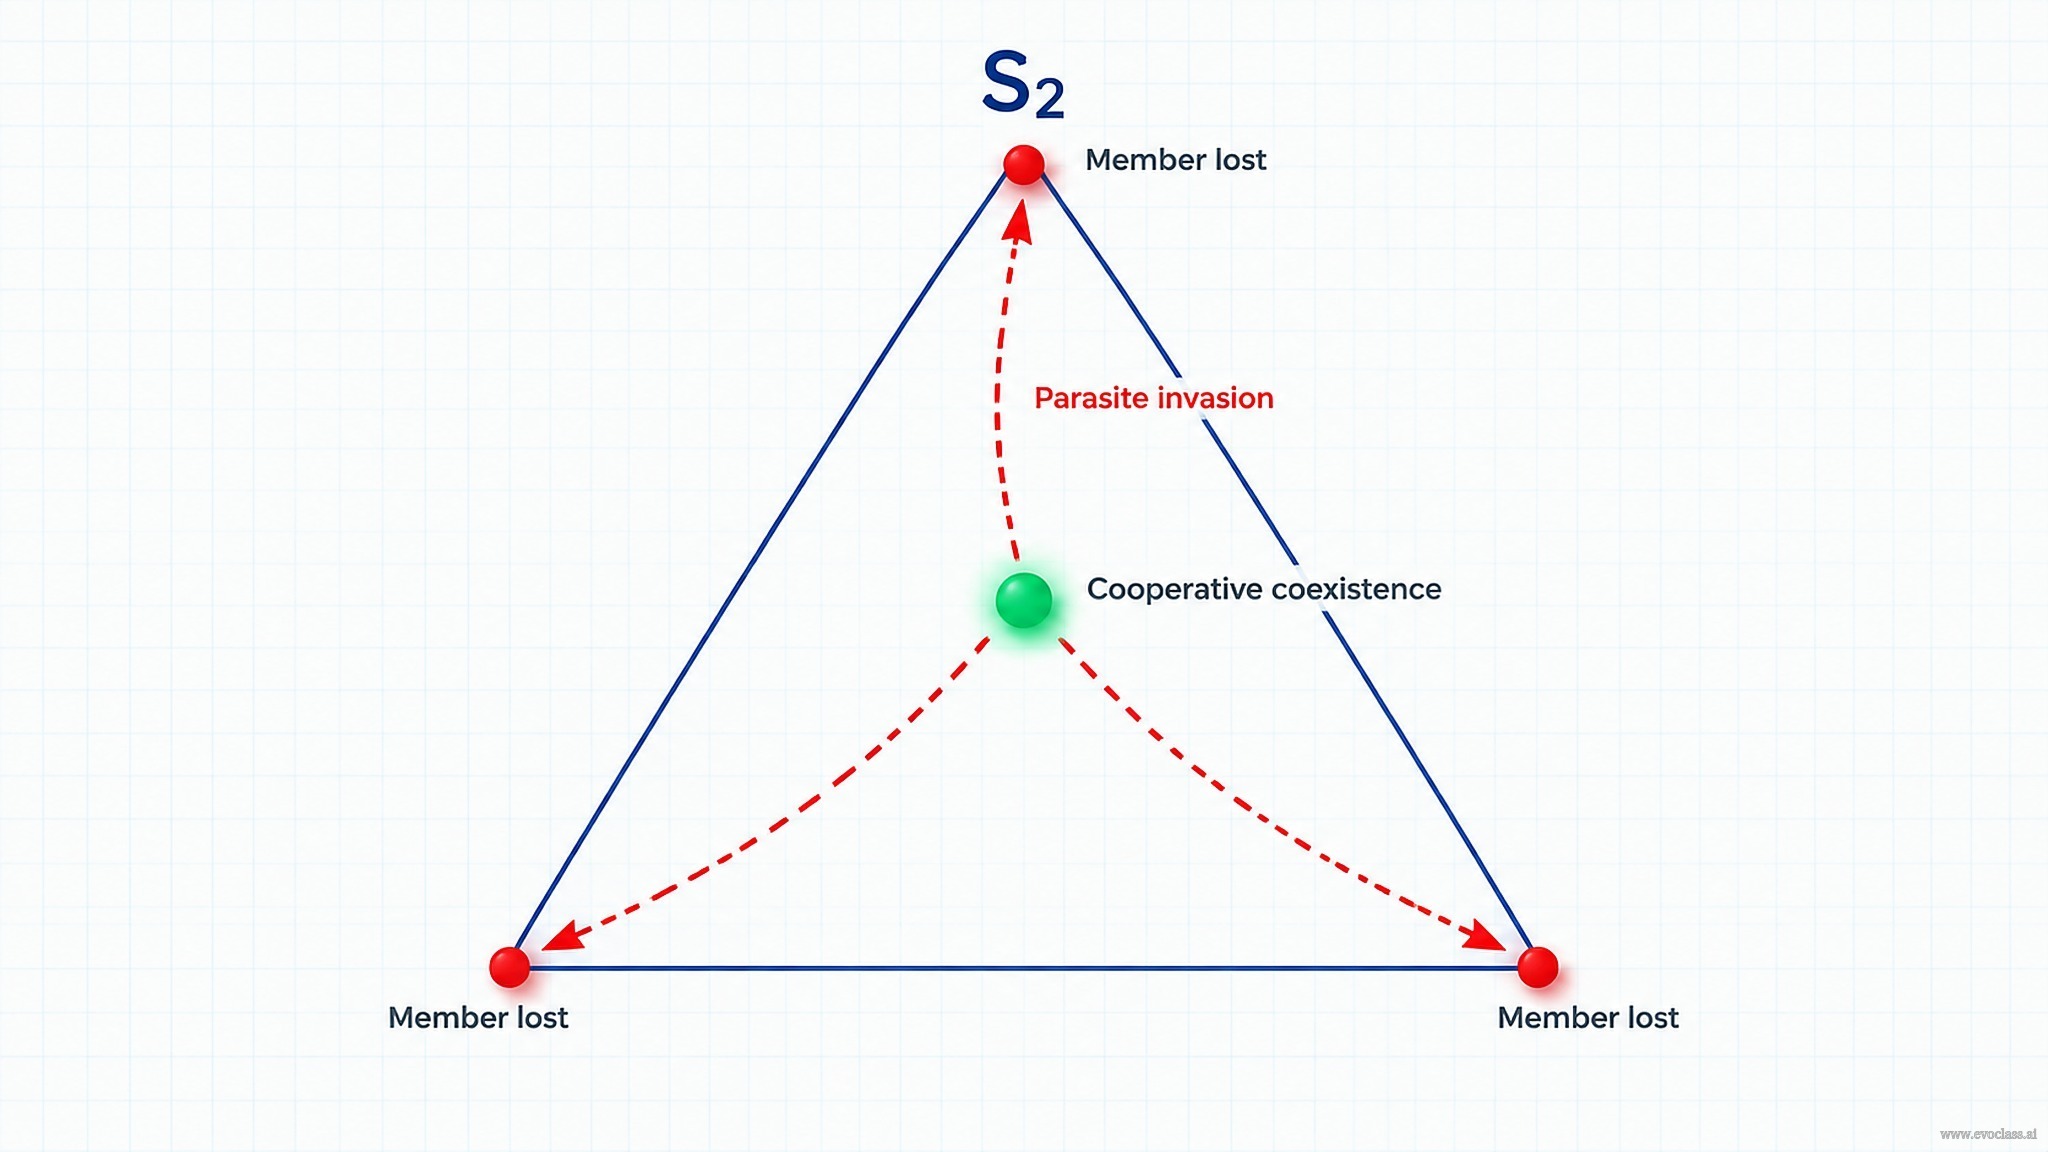
Simplesso di concentrazione S2: coesistenza interna vs. collasso verso il verticeL'invasione del parassita spinge lo stato cooperativo interno verso il bordopunto fisso al verticevertice dominato dal parassitavertice del membro del ciclointerno: stato cooperativoLegendaInterno: tutti i membri coesistonoVertice: un membro viene persoDeriva verso l'esterno indotta dal parassitaSoglia di invasioneẋ > 0 per c0 < k / kAparassita contenutoẋ < 0 per c0 > k / kAmembro perso — il parassita invade

Parassiti sul simplesso di concentrazione

Si consideri un sistema a due componenti in cui un parassita e un membro dell'iperciclo x condividono una concentrazione totale . Il parassita si riproduce autocataliticamente (costante di velocità ) ed è sostenuto dalla catalisi fornita dal ciclo, mentre il membro x viene riprodotto attraverso l'accoppiamento . La dinamica a organizzazione costante (T.13.8) è:

Il segno di ẋ separa due regimi alla soglia : per il membro cresce e il parassita è contenuto; per il membro decade e il parassita invade. Questa è l'affermazione quantitativa del motivo per cui un parassita autoriproduttivo può destabilizzare un iperciclo.

Stati al vertice e stati interni

Un iperciclo ammette punti fissi sui vertici del simplesso di concentrazione, ciascuno corrispondente alla perdita di una componente, e uno stato interno che rappresenta la coesistenza cooperativa di tutti i membri. L'interno è produttivo ma fragile: è la regione dalla quale l'invasione del parassita può spingere la traiettoria verso il bordo, dove un membro viene perso definitivamente.

La crescita del genoma è combinatoriamente costosa

Allungare il genoma aumenta rapidamente il carico mutazionale. Per una sequenza di lunghezza 100 vi sono = (100 su k) mutanti con k errori: 100 mutanti con un errore, 4.950 mutanti con due errori, 161.700 mutanti con tre errori, e così via. Quando sono presenti n di tali mutanti con n ≪ , il numero delle loro combinazioni cresce come ( su n) ≈ ⁿ / n!. Questo è il motivo per cui un singolo genoma in continua crescita è svantaggiato rispetto all'organizzazione iperciclica di singoli geni mutanti: la cooperazione distribuisce la funzione catalitica in modo che nessuna singola sequenza lunga debba assorbire l'intero carico mutazionale.

Perché la struttura è importante
Questi limiti derivano dal presupposto di una selezione ben mescolata a organizzazione costante. Senza un'ulteriore struttura spaziale o compartimentale, gli ipercicli più grandi affrontano pressioni parassitarie e mutazionali in costante aumento, e lo stato cooperativo interno non può essere mantenuto indefinitamente.