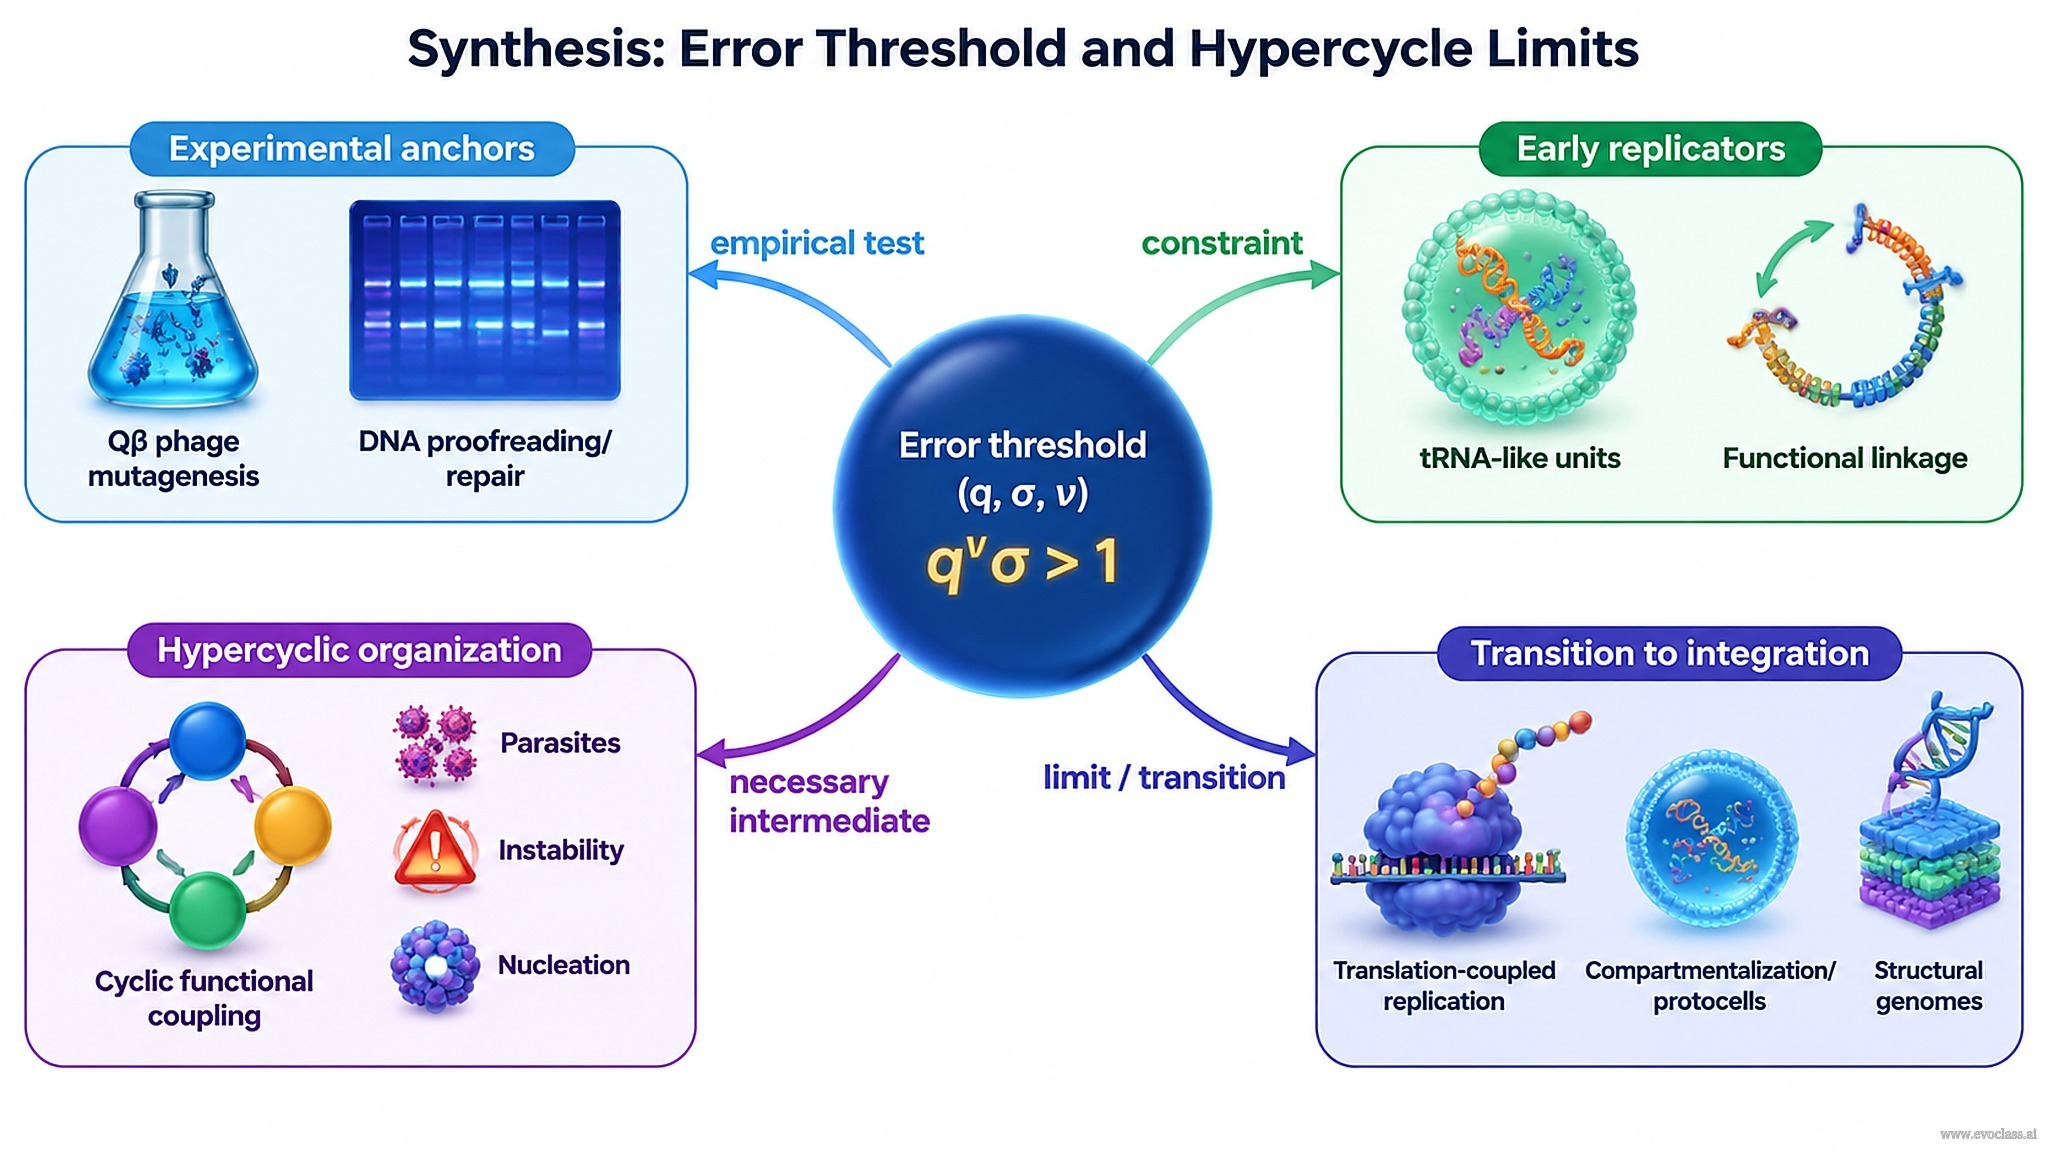
La soglia di errore stabilisce la massima informazione stabile che un replicatore primitivo può mantenere con una data fedeltà di replicazione e un dato vantaggio selettivo. Per una lunghezza di sequenza ν e una superiorità selettiva σ, il mantenimento stabile richiede
Il gioco dell'evoluzione delle frasi
Il gioco dell'evoluzione delle frasi formalizza lo stesso vincolo con tre variabili: q̄m (accuratezza di copiatura), σm (vantaggio selettivo) e vm (lunghezza di sequenza). Insieme predicono se una sequenza significativa viene mantenuta o perduta. Aumentare vm senza migliorare q̄m o σm spinge il sistema oltre la soglia di errore, per cui l'informazione stabile sopravvive solo quando fedeltà, selezione e lunghezza sono bilanciate congiuntamente.
Ancoraggi sperimentali: fago Qβ e correzione di bozze del DNA
Gli esperimenti di mutagenesi del fago Qβ forniscono un ancoraggio empirico: all'aumentare del carico mutazionale, la distribuzione dei mutanti si allarga e la dominanza del wild-type si erode, illustrando l'avvicinamento alla soglia di errore. Al contrario, la correzione di bozze e la riparazione del DNA riducono il tasso di mutazione effettivo μ, spostando il confine e rendendo possibili genomi stabili più grandi. I replicatori a RNA tendono quindi ad avvicinarsi alla soglia di errore, mentre gli organismi con correzione di bozze possono mantenere più informazione.
Replicatori precoci e accoppiamento funzionale
Le prime unità replicative rimasero probabilmente corte e simili a tRNA. La loro fedeltà limitava sia la capacità codificante sia quella catalitica, per cui non potevano portare genomi grandi. Invece della legatura covalente, erano collegate da un accoppiamento funzionale o catalitico: ogni replicatore sosteneva la replicazione o l'attività degli altri, formando una rete cooperativa anziché un singolo cromosoma integrato.
Organizzazione iperciclica: un intermedio necessario
L'organizzazione iperciclica accoppia ciclicamente i replicatori, consentendo la selezione collettiva, l'integrazione di più funzioni e una via verso la traduzione. È quindi un intermedio necessario in condizioni di bassa fedeltà. Tuttavia gli ipercicli hanno dei limiti: sono vulnerabili allo sfruttamento da parte di mutanti parassiti o egoisti, dipendono da una struttura spaziale o compartimentale, soffrono di problemi di stabilità e nucleazione, possono mostrare dinamiche oscillatorie o a ciclo limite e non possono integrare strutturalmente tutti i geni.
Oltre gli ipercicli: traduzione, compartimenti e genomi strutturali
I miglioramenti oltre gli ipercicli coinvolgono la replicazione accoppiata alla traduzione, la compartimentazione o le protocellule e l'integrazione strutturale in genomi unificati. Questi cambiamenti allineano l'ereditarietà con l'intera unità integrata, permettendo alla selezione di agire sull'intero insieme di geni anziché su replicatori debolmente accoppiati.
Mappa concettuale della soglia di erroreLa mappa concettuale è incentrata sulla condizione della soglia di errore. Si dirama verso ancoraggi sperimentali come la mutagenesi del fago Qβ e la correzione di bozze del DNA, verso replicatori precoci simili a tRNA con legame funzionale, verso l'organizzazione iperciclica con i limiti legati a parassiti e instabilità, e verso la transizione a traduzione, compartimentazione e genomi strutturali. Le etichette delle frecce indicano 'verifica empirica', 'vincolo', 'intermedio necessario' e 'limite / transizione'.