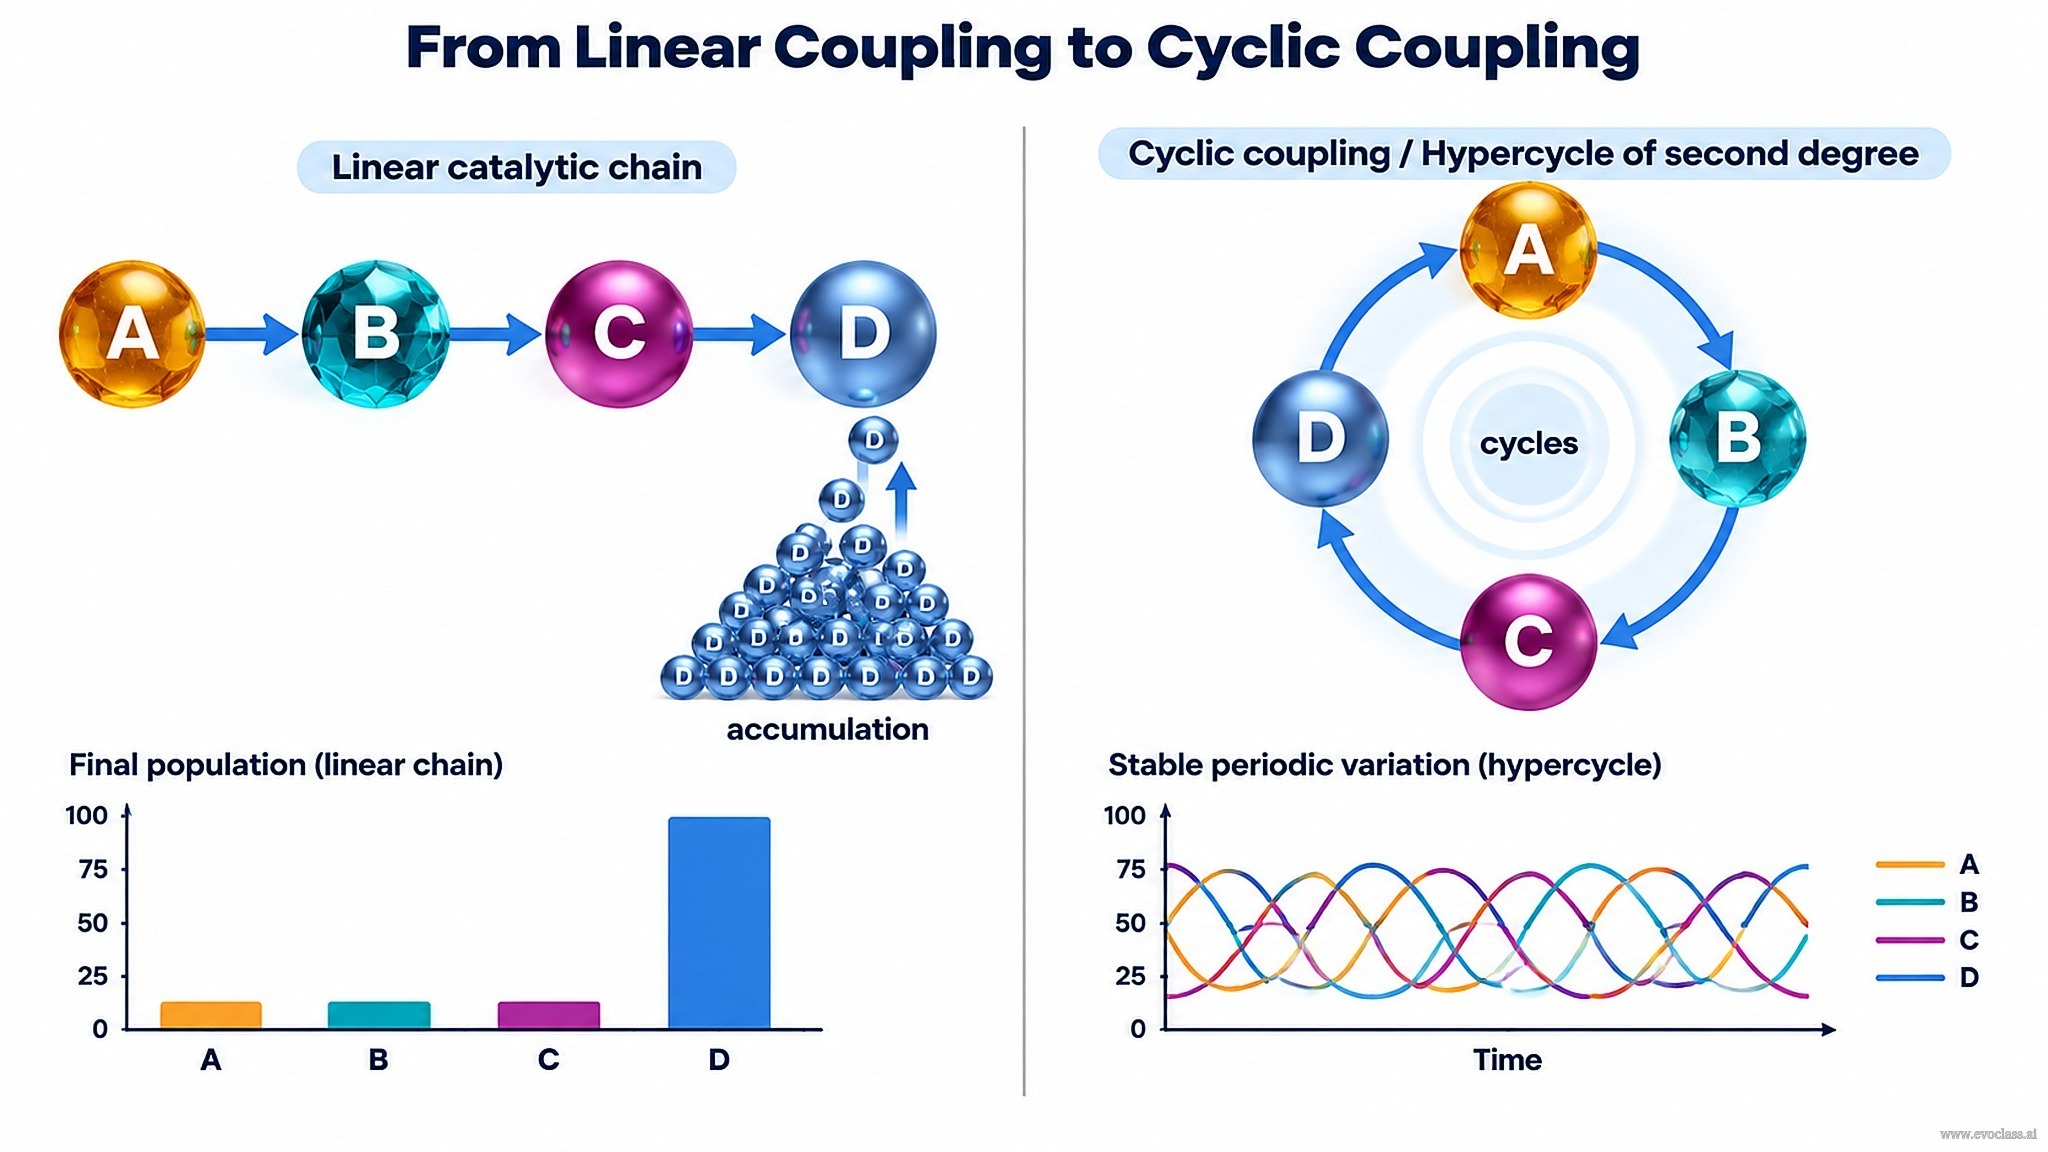
Quando le unità replicative trasmettono in avanti il vantaggio catalitico, l'architettura dell'accoppiamento determina l'esito della selezione. In una catena lineare A → B → C → D, ciascun membro accelera il successivo, ma nessun membro a valle restituisce supporto a uno precedente. Il vantaggio viaggia dunque in una sola direzione e si accumula nel nodo terminale D, che agisce come un pozzo di crescita.
Matematicamente, se la crescita di ciascun componente dipende da se stesso e dal catalizzatore precedente, il caso lineare presenta un grafo catalitico diretto aciclico. D riceve supporto catalitico in entrata ma non ha obblighi catalitici in uscita, perciò la sua concentrazione relativa è favorita dalla selezione. I membri precedenti non ricevono alcun beneficio catalitico di ritorno dai prodotti a valle.
Chiudere la catena
Aggiungendo il collegamento di retroazione D → A si elimina il pozzo terminale. Il grafo catalitico diventa ciclico—fortemente connesso—così ogni membro è sia prodotto sia catalizzatore in un ciclo chiuso. Il sistema è ora un iperciclo di secondo grado: la crescita di ciascun membro dipende dalla propria concentrazione e dal contributo catalitico del membro precedente.
Nell'iperciclo a quattro membri, i quattro componenti mantengono numeri di popolazione stabili e variabili periodicamente. Il risultato è un mantenimento collettivo anziché la monopolizzazione da parte di una singola specie terminale. Questa transizione cambia il regime di selezione da una gerarchia dominata dal pozzo a un'organizzazione ciclica autosufficiente, che costituisce la base per le analisi successive della stabilità dell'iperciclo, delle equazioni di velocità e della sfida parassitaria.
Dall'accoppiamento lineare all'accoppiamento ciclicoConfronto affiancato tra una catena catalitica lineare A → B → C → D, in cui D agisce come pozzo terminale e accumula vantaggio, e una disposizione ciclica chiusa A → B → C → D → A, che forma un iperciclo di secondo grado e mantiene tutti e quattro i membri con numeri di popolazione stabili e variabili periodicamente.