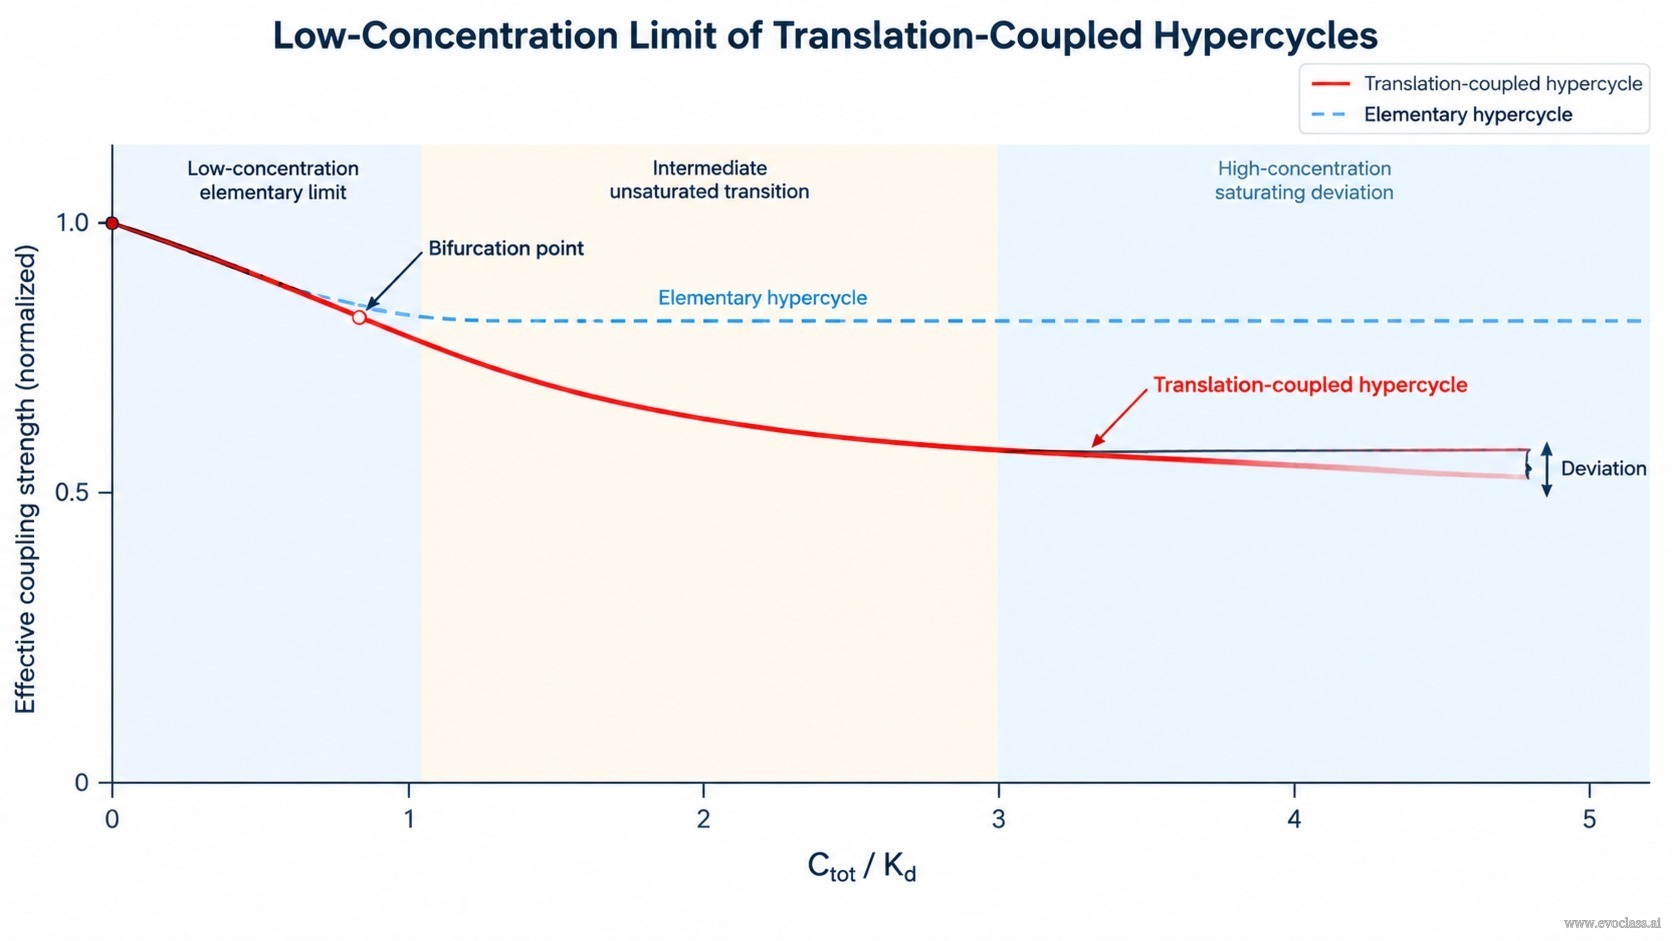
In un iperciclo accoppiato alla traduzione, ciascuno stampo di RNA non viene soltanto replicato ma anche tradotto in un polipeptide che si lega di nuovo all'RNA attraverso la formazione reversibile di un complesso. Questo passaggio di legame, caratterizzato da una costante di dissociazione
Perché una bassa concentrazione totale semplifica la cinetica
Quando la concentrazione totale di RNA e polipeptide è molto inferiore a
- Le specie libere dominano. [complesso] è molto minore di [RNA] e [polipeptide], quindi la dinamica è sostenuta dalle specie libere anziché dal materiale legato.
- Concentrazione bilineare del complesso. [complesso] ≈ [RNA][polipeptide]/Kd, cioè proporzionale al prodotto delle due concentrazioni libere anziché a una sola di esse.
- Flusso catalitico del secondo ordine. Poiché il complesso è il catalizzatore, il flusso mediato kcat[RNA][polipeptide]/Kd ≈ (kcat/Kd)[RNA][polipeptide] è un termine di azione di massa del secondo ordine — esattamente la forma di accoppiamento usata da un iperciclo elementare.
Costanti di velocità efficaci e topologia preservata
La costante di associazione e la costante catalitica compaiono solo attraverso la loro combinazione, quindi possono essere assorbite in un'unica costante di velocità efficace keff = kcat/Kd. Il risultato è un iperciclo elementare con coefficienti rinormalizzati. Fondamentalmente, la topologia di accoppiamento ciclico è preservata: ogni membro catalizza ancora la replicazione del membro successivo lungo l'anello, e la traduzione non introduce alcun accoppiamento dinamico indipendente in questo limite — si limita a riscalare le velocità. È per questo che le analisi di punto fisso, stabilità, ciclo limite e soglia di errore sviluppate per gli ipercicli elementari si trasferiscono direttamente agli ipercicli accoppiati alla traduzione ogni volta che vale la condizione di diluizione, ed è proprio ciò che rende la riduzione così utile per ragionamenti su selezione e soglia di errore.
Dove la riduzione cessa di valere
La riduzione è asintotica, non un'identità. Resta valida solo finché la formazione del complesso è non satura. Man mano che la concentrazione totale sale verso
Limite di bassa concentrazione degli ipercicli accoppiati alla traduzioneForza di accoppiamento efficace di un iperciclo accoppiato alla traduzione in funzione della concentrazione totale adimensionale C_tot/K_d. A valori bassi la curva continua dell'accoppiamento alla traduzione si fonde con il riferimento tratteggiato dell'iperciclo elementare, perché complessi RNA-polipeptide radi e non saturi danno un flusso catalitico bilineare con costante efficace k_cat/K_d; man mano che la concentrazione cresce, i complessi si saturano e le due curve si separano.