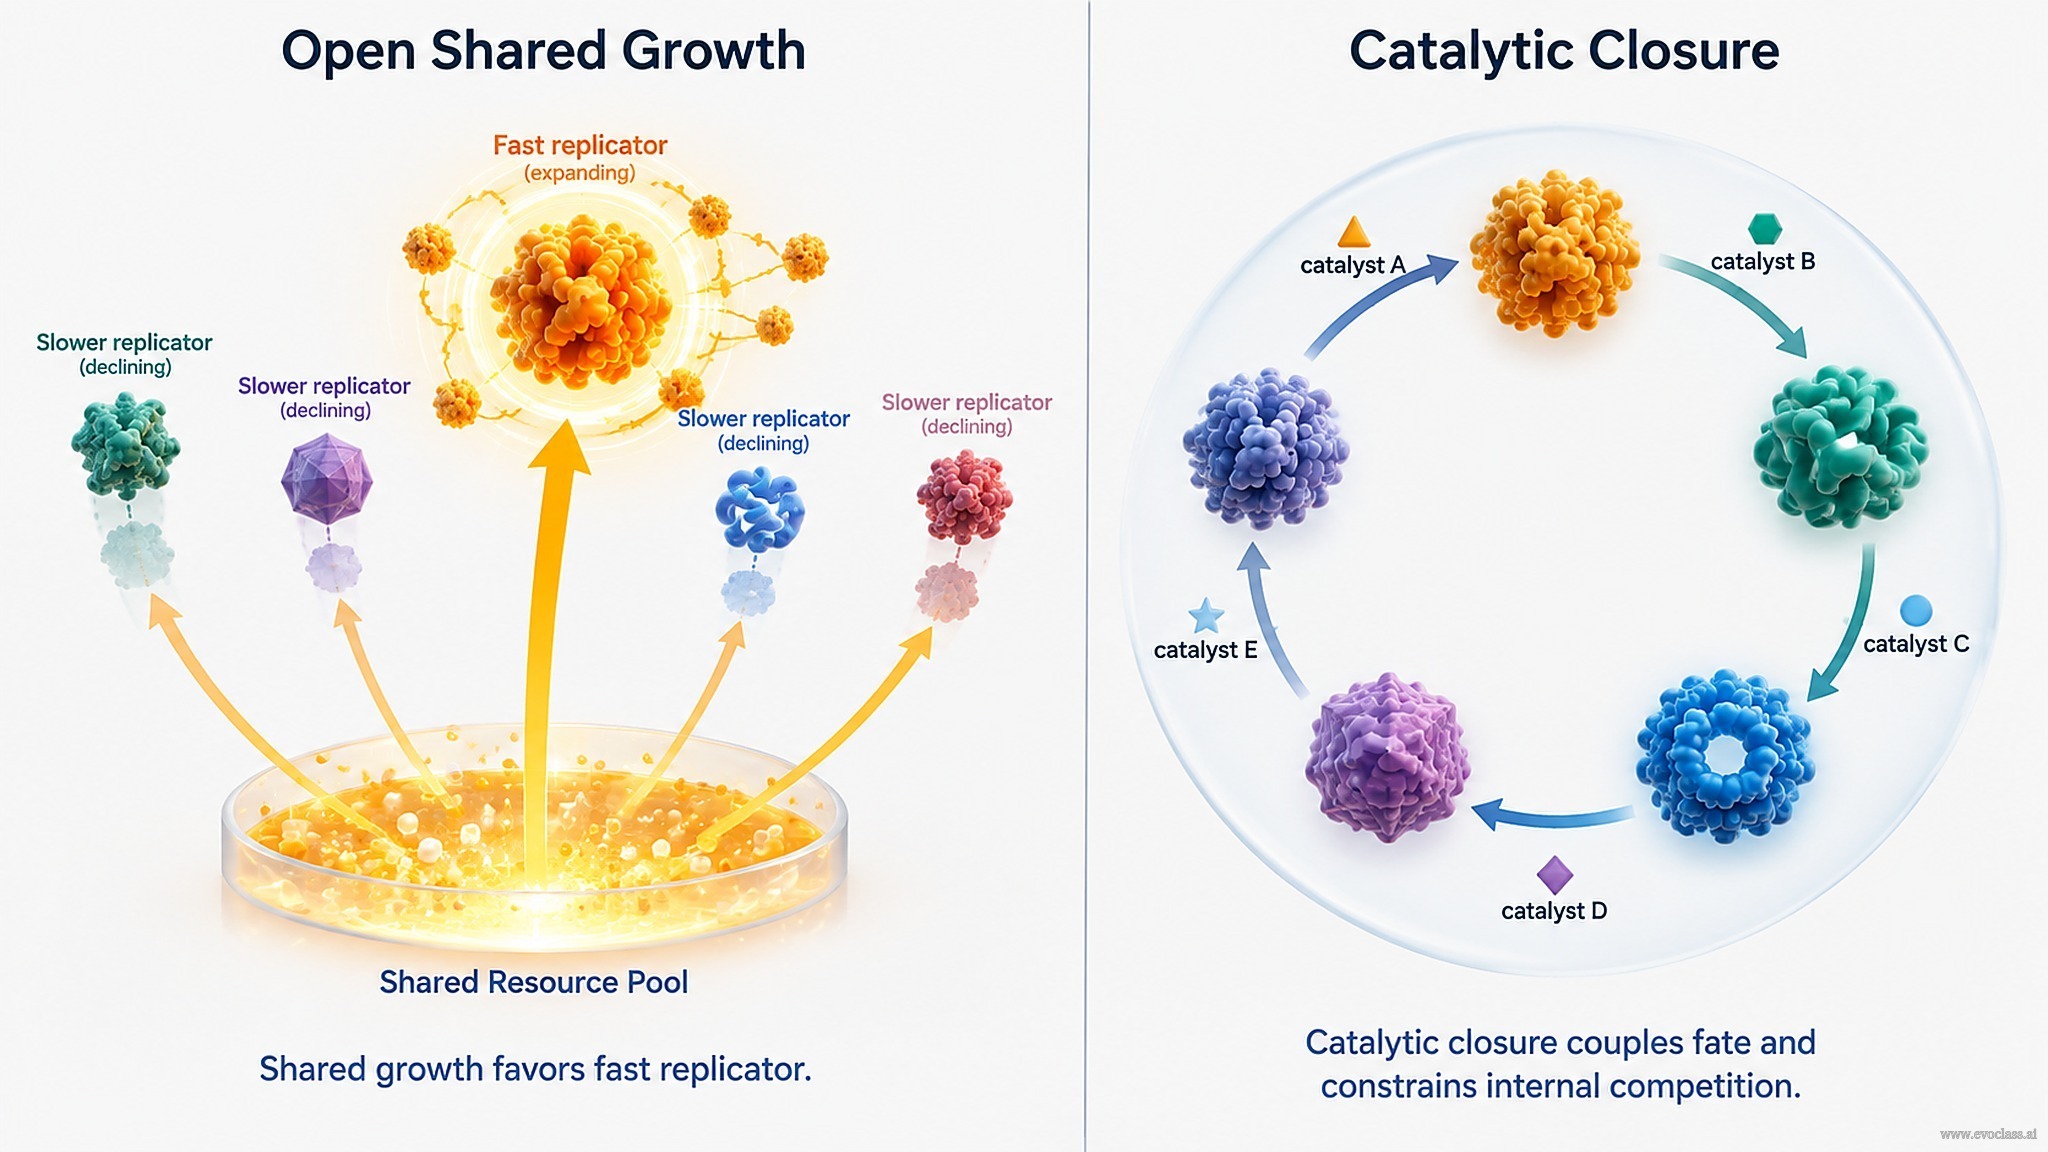
In un iperciclo accoppiato alla traduzione, il solo accoppiamento funzionale non è sufficiente. Supponiamo che un insieme di filamenti di RNA codifichi una replicasi e diverse funzioni sintetasiche, e che tutti i filamenti condividano lo stesso macchinario di replicazione e traduzione. I termini condivisi collassano in una funzione di crescita comune. Allora un filamento che viene replicato più rapidamente—o tradotto in modo più efficiente—può espandersi a scapito degli altri, e l'insieme decade attraverso la competizione interna. Questa è crescita condivisa, non chiusura catalitica.
La chiusura catalitica converte lo stesso insieme in un ciclo reciprocamente dipendente. La replicazione o la traduzione di ciascun membro è catalizzata da almeno un altro membro. La crescita diventa collettiva: un replicatore veloce non può sostenere una crescita rapida a tempo indefinito se il catalizzatore di cui ha bisogno è prodotto solo dal membro che altrimenti vorrebbe soppiantare. La competizione interna persiste per precursori, energia, capacità di traduzione ed efficienza catalitica, ma la dipendenza ciclica la limita.
La stabilizzazione dipende dalla forza dell'accoppiamento rispetto alle differenze di crescita intrinseche. L'analisi perturbativa del valore selettivo è valida quando wkm ≪ Wmm − Wkk (cfr. Tabella 2). Approssimazioni superiori utilizzano
Dalla chiusura iperciclica all'integrazione strutturale
La chiusura iperciclica stabilizza la cooperazione accoppiata alla traduzione, ma ha dei limiti. Mutanti parassiti possono accettare la catalisi senza contribuire, e squilibri interni tra i membri possono destabilizzare il ciclo. Questi limiti aiutano a spiegare il successivo passaggio verso la completa integrazione strutturale di geni/genomi: una volta che i geni sono fisicamente collegati e co-replicati come un genoma, il legame catalitico chiuso è sostituito da un'unità strutturale, riducendo l'opportunità per i parassiti e stabilizzando la cooperazione.
Crescita aperta vs chiusura cataliticaA sinistra: la crescita condivisa aperta permette a un replicatore veloce di espandersi mentre gli altri membri diminuiscono. A destra: un ciclo catalitico chiuso accoppia la replicazione o la traduzione di ciascun membro a un altro membro, così nessun singolo nodo può sostenere da solo una crescita rapida e la competizione interna è limitata.