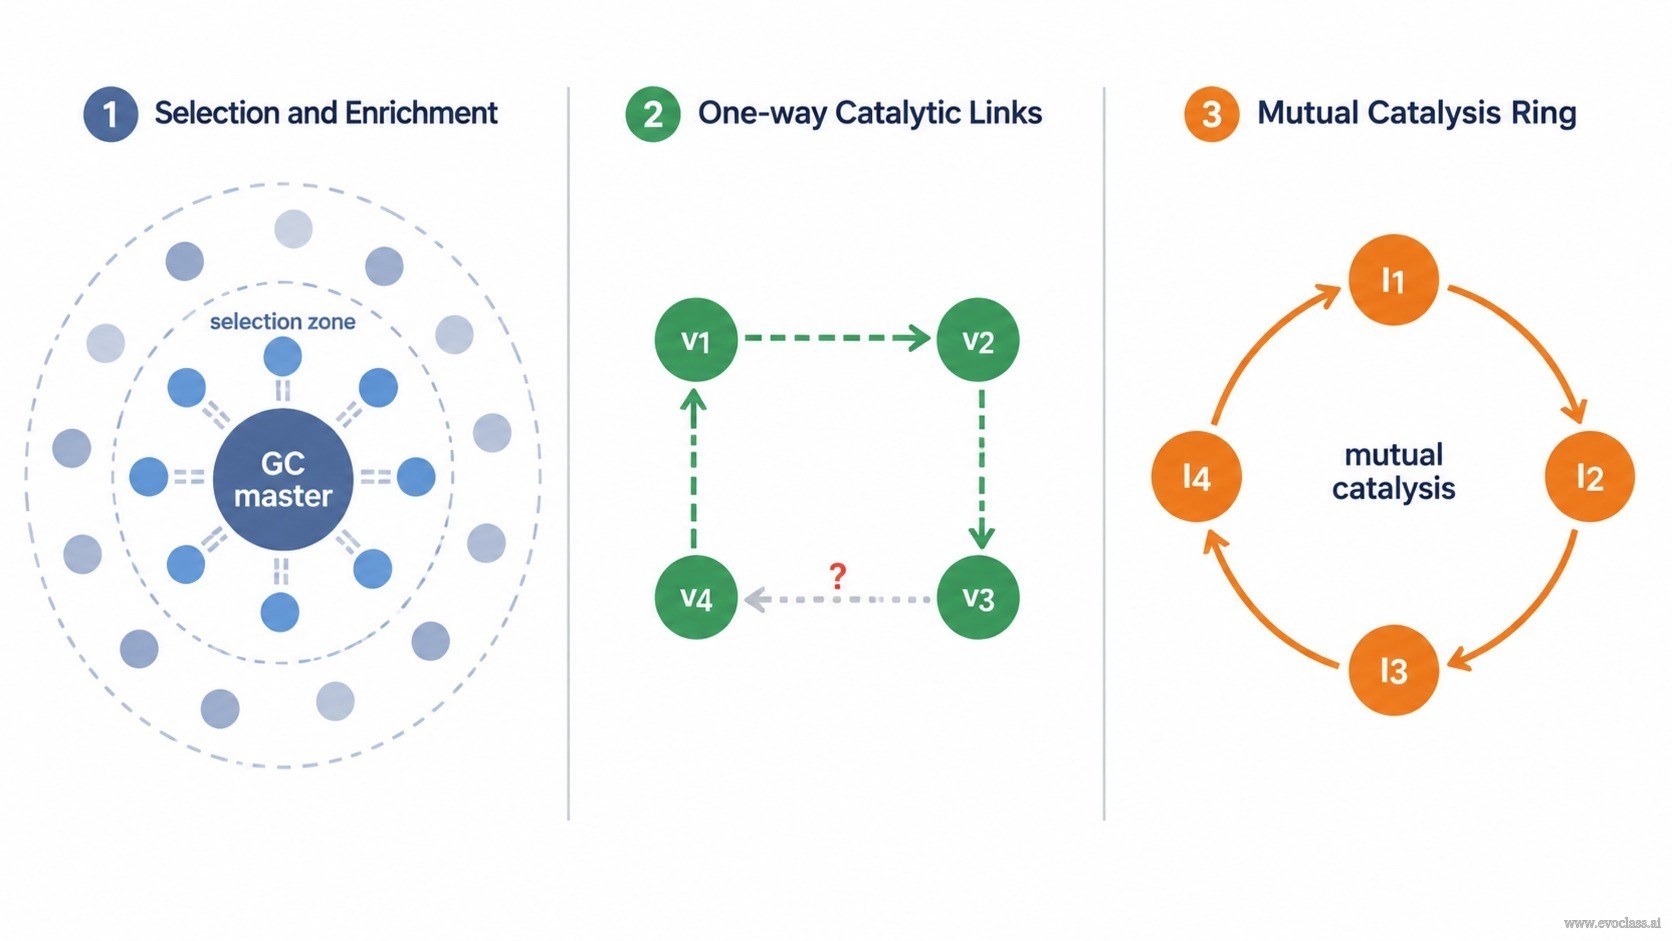
Un iperciclo è un insieme chiuso di replicatori che catalizzano reciprocamente la propria replicazione. Poiché il ciclo è definito da una mutua catalisi tra diverse sequenze distinte, esso non può nucleare da una singola copia stampo: una molecola non contiene l'intera funzione ciclica e la sua prima copia non ha partner catalitici con cui chiudere un anello. L'organizzazione iperciclica non può pertanto comparire all'improvviso; deve essere assemblata gradualmente a livello di popolazione, e la culla più plausibile per tale assemblaggio è una quasi-specie ricca di GC.
Perché un solo stampo non può avviare un ciclo
Un replicatore autocatalitico è autosufficiente: un singolo filamento che fa da stampo alla propria copia cresce esponenzialmente a partire da una sola molecola, perché la molecola e il suo prodotto svolgono la stessa funzione. Un iperciclo non è di questo tipo. La sua proprietà distintiva è un anello chiuso di supporto catalitico in cui il membro i potenzia la replicazione del membro j, che potenzia k, e così via finché l'anello non ritorna a i. Rimuovi un qualsiasi singolo membro e i membri rimanenti non riescono più a rigenerarlo. Di conseguenza, la prima copia di ciascun membro è un vicolo cieco: non ha partner complementari e non esiste alcun ciclo catalitico chiuso che possa amplificarla preferenzialmente.
Una quasi-specie ricca di GC fornisce la materia prima
Una quasi-specie non è una singola sequenza, bensì una nube di sequenze correlate, connesse per via mutazionale, distribuite attorno a una sequenza dominante di tipo master. In un pool ricco di GC questa nube è insolitamente ben rifornita. Ogni coppia G–C aggiuntiva contribuisce con un terzo legame idrogeno, così gli steli ricchi di GC fondono a temperature più alte, si ripiegano in modo più affidabile e tollerano più mutazioni puntiformi prima che la loro struttura secondaria collassi. Il serbatoio combina quindi due cose richieste contemporaneamente dal problema della nucleazione: un'elevata diversità locale di varianti con anse, steli e geometrie di superficie alterati, e una stabilità strutturale sufficiente perché le singole varianti restino funzionali abbastanza a lungo da essere testate dalla selezione.
La mutazione esplora l'accoppiamento, la selezione lo conserva
È l'esplorazione mutazionale a esplorare effettivamente lo spazio delle interazioni. Una sostituzione puntiforme può rimodellare un hairpin, esporre una nuova superficie di legame o reclutare un centro catalitico dipendente da ioni metallici, modificando il debole coefficiente di accoppiamento
Dall'organizzazione a quasi-specie all'organizzazione iperciclica
Man mano che i legami si accumulano, la distribuzione dei mutanti cambia forma. La diversità non è più distribuita attorno a una singola sequenza master; si condensa verso un piccolo sottoinsieme di stampi a catalisi reciproca, e la chiusura dell'anello avviene solo quando esistono abbastanza legami perché la rete sia chiusa anziché semplicemente aperta o ramificata. Prima della chiusura l'insieme si comporta come una quasi-specie con alcune varianti correlate. Dopo la chiusura, la crescita è cooperativa e super-additiva: il ciclo si moltiplica come un'unità e, poiché ogni membro alimenta il successivo, l'insieme accoppiato può superare in crescita una quasi-specie isolata che compete per gli stessi monomeri e la stessa replicasi. Ecco come un iperciclo potrebbe comparire senza alcun genoma multi-gene preesistente — mediante il reclutamento e l'integrazione di geni mutanti già presenti nel serbatoio ricco di GC. L'analisi dei punti fissi sottostante, nel caso a due membri, esprime lo stesso concetto in termini di coefficienti di velocità: se la coppia finisca in esclusione competitiva, nella selezione di un solo membro o in una stabile coesistenza iperciclica dipende unicamente dalle grandezze relative dell'auto-potenziamento e del potenziamento reciproco, e il criterio si generalizza ai cicli a tre e a n membri.
Quando il percorso fallisce
- La fedeltà di replicazione deve restare al di sopra della soglia di errore. Se il tasso di mutazione è troppo alto, il serbatoio si dissolve in una nube diffusa in cui nessuna variante persiste abbastanza a lungo da stabilire un legame.
- La compatibilità funzionale è importante: i membri non devono interferire in modo distruttivo con il ripiegamento o la catalisi altrui, altrimenti i legami che si accumulano si annullano invece di rafforzarsi.
- Il carico di parassiti deve restare basso. Uno stampo egoista che viene replicato efficientemente grazie al ciclo emergente, ma non catalizza nulla in cambio, prosciuga le risorse condivise e può destabilizzare la rete prima che si chiuda.
Esempio svolto. In un pool di RNA ricco di GC, una sequenza dominante simile a GGC/GCC e i suoi mutanti formano una quasi-specie. Un mutante può favorire debolmente la replicazione di una sequenza vicina, e la selezione conserva entrambi i partner perché la loro resa congiunta supera quella che ciascuno raggiunge da solo. Ulteriori mutazioni generano un'assistenza reciproca, il ramo mancante viene completato e un ciclo a due o più membri si chiude. Una volta chiuso, la crescita iperciclica supera in competizione la quasi-specie isolata da cui ha avuto origine.
Emersione da una quasi-specie ricca di GCTre fasi da leggere da sinistra a destra. Innanzitutto, una sequenza master ricca di GC si trova al centro di una nube mutazionale, con una zona di selezione interna che contrassegna le varianti progressivamente arricchite, mentre stabili coppie di basi GC proteggono le loro strutture ripiegate. In secondo luogo, le varianti sopravvissute sono unite da legami catalitici deboli e unidirezionali, e una connessione è ancora tratteggiata perché la rete non è ancora chiusa. In terzo luogo, quei legami divengono reciproci e la rete si chiude in un anello iperciclico in cui ogni membro catalizza il successivo, così l'insieme nel suo complesso può superare in crescita una quasi-specie isolata.