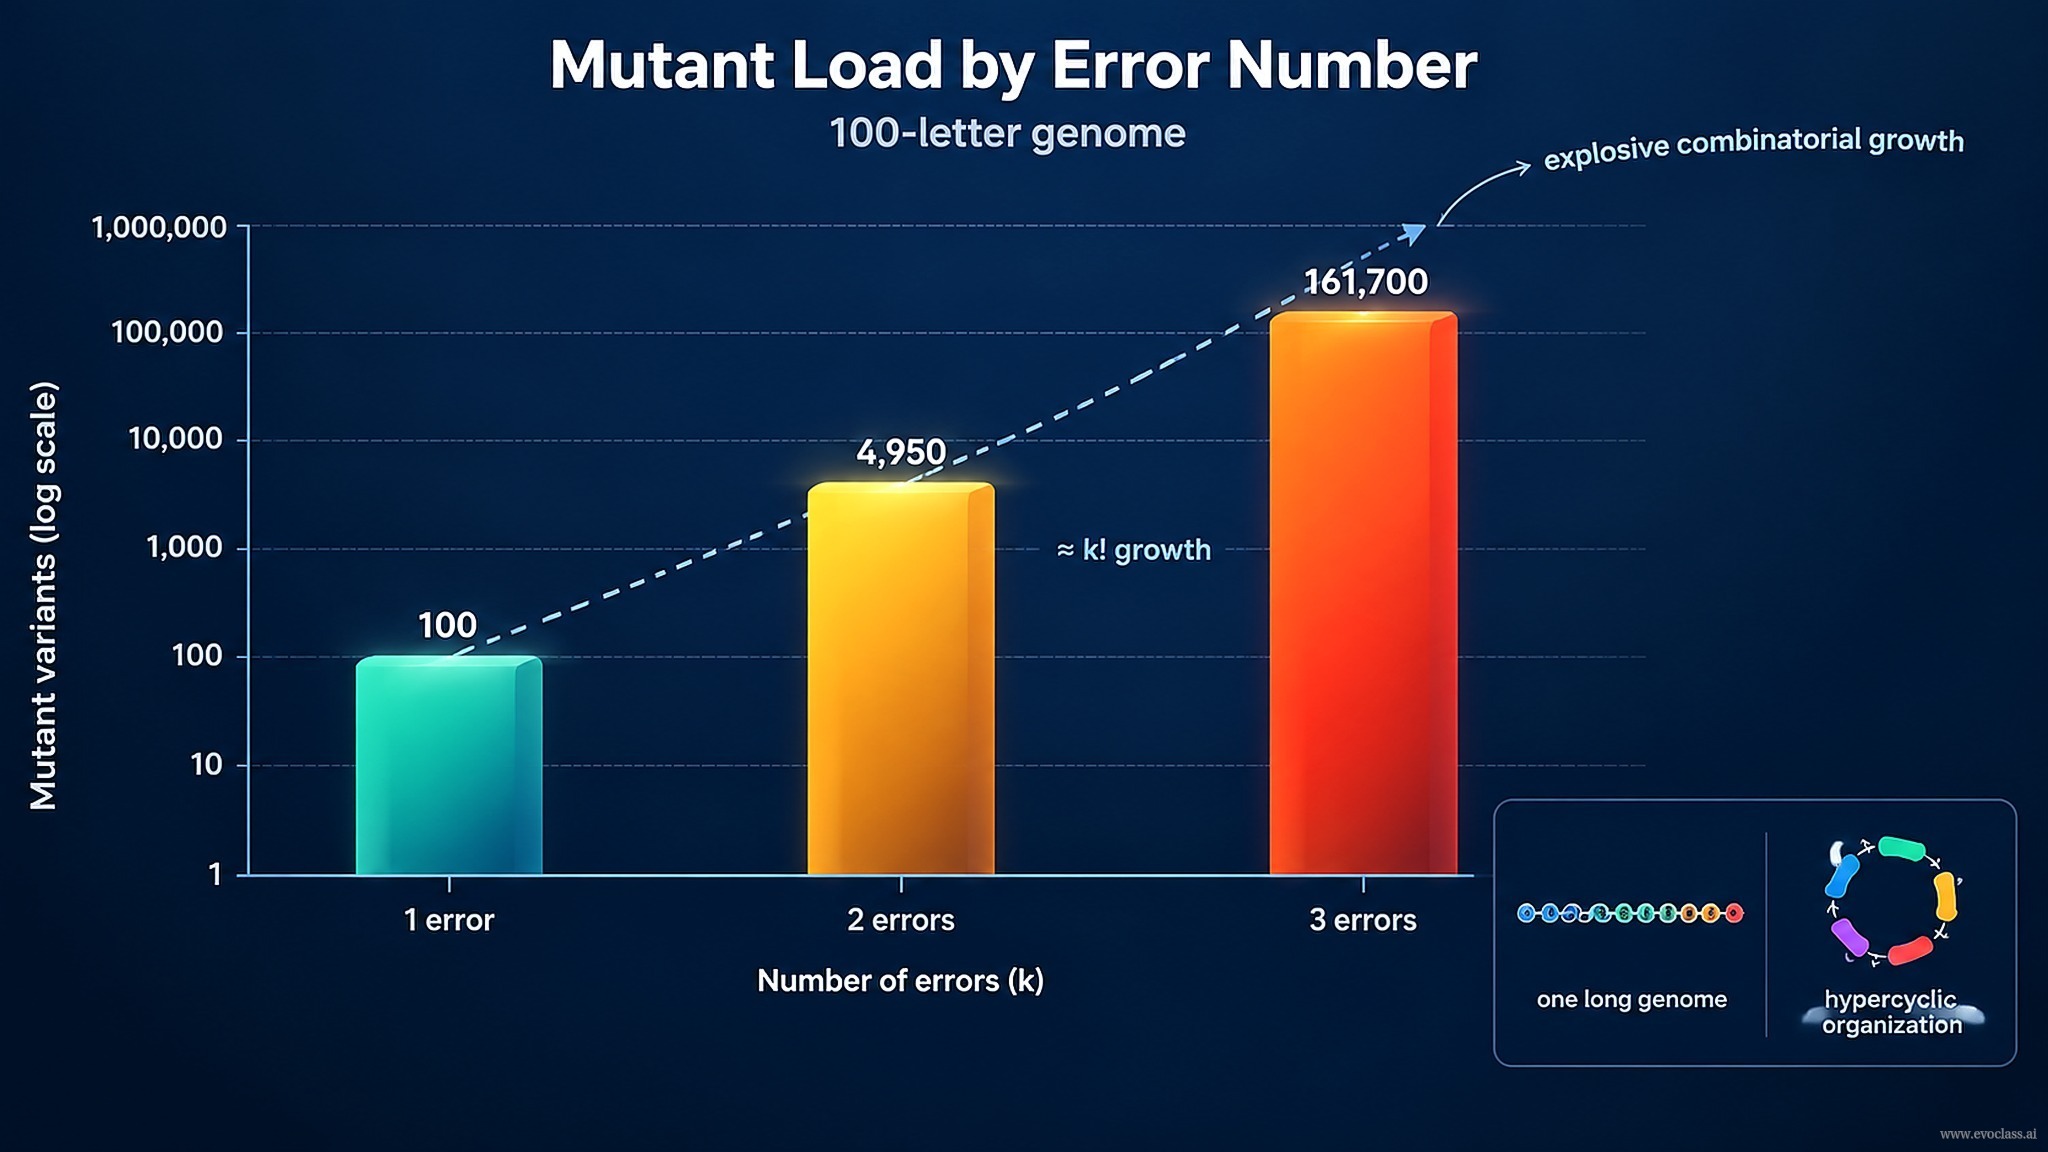
Un genoma di lunghezza n non affronta un solo tasso di errore. Con una fedeltà di replicazione finita, ogni possibile combinazione di posizioni copiate in modo errato crea un mutante distinto. Se esattamente k posizioni sono errate, il numero di possibili mutanti con k errori è Nₖ = C(n, k). Per un genoma di 100 lettere, i conteggi sono 100 mutanti con un errore, 4.950 mutanti con due errori e 161.700 mutanti con tre errori. Il carico mutazionale, quindi, non cresce in modo lineare; cresce in modo combinatorio con k.
Perché un singolo genoma in crescita è vulnerabile
Un genoma in costante crescita deve mantenere la sua sequenza master mentre sopprime un'esplosione di alternative vicine. All'aumentare di n, il numero di possibili mutanti con k errori per k piccoli cresce rapidamente. Anche se il tasso di errore per posizione rimane basso, l'insieme totale delle varianti danneggiate diventa un limite centrale: la selezione deve impedire che l'intera nube combinatoria spiazzi la sequenza funzionale.
L'organizzazione iperciclica come strategia informazionale
L'organizzazione iperciclica offre un'alternativa: distribuire il carico informazionale tra geni più corti a mutante singolo e integrarli attraverso un accoppiamento catalitico ciclico. Unità più corte riducono il carico mutazionale per unità perché ogni gene ha meno posizioni e quindi meno possibili varianti con k errori. L'accoppiamento ciclico consente poi alla selezione di agire sull'iperciclo come unità di livello superiore anziché su un unico genoma lungo. Il caso dell'organizzazione iperciclica è quindi non solo catalitico ma anche informazionale: organizza la diversità mutazionale a un livello superiore.
Per n geni e Nₖ mutanti con k errori disponibili, il numero di modi di distribuire i mutanti tra i geni è approssimativamente (Nₖ + n − 1 su n) ≈ Nₖⁿ / n! per n ≪ Nₖ. Questo mostra come una popolazione di unità più corte possa gestire una diversità che sopraffarebbe un singolo genoma in costante crescita.
Carico mutazionale per numero di erroriIl grafico rappresenta i conteggi combinatori dei mutanti per un genoma di 100 lettere su scala logaritmica: 100 mutanti con un errore, 4.950 mutanti con due errori e 161.700 mutanti con tre errori. La rapida crescita mostra perché un singolo genoma in costante crescita debba affrontare una nube in espansione di varianti danneggiate, mentre l'organizzazione iperciclica distribuisce geni più corti e li integra attraverso un accoppiamento catalitico ciclico.