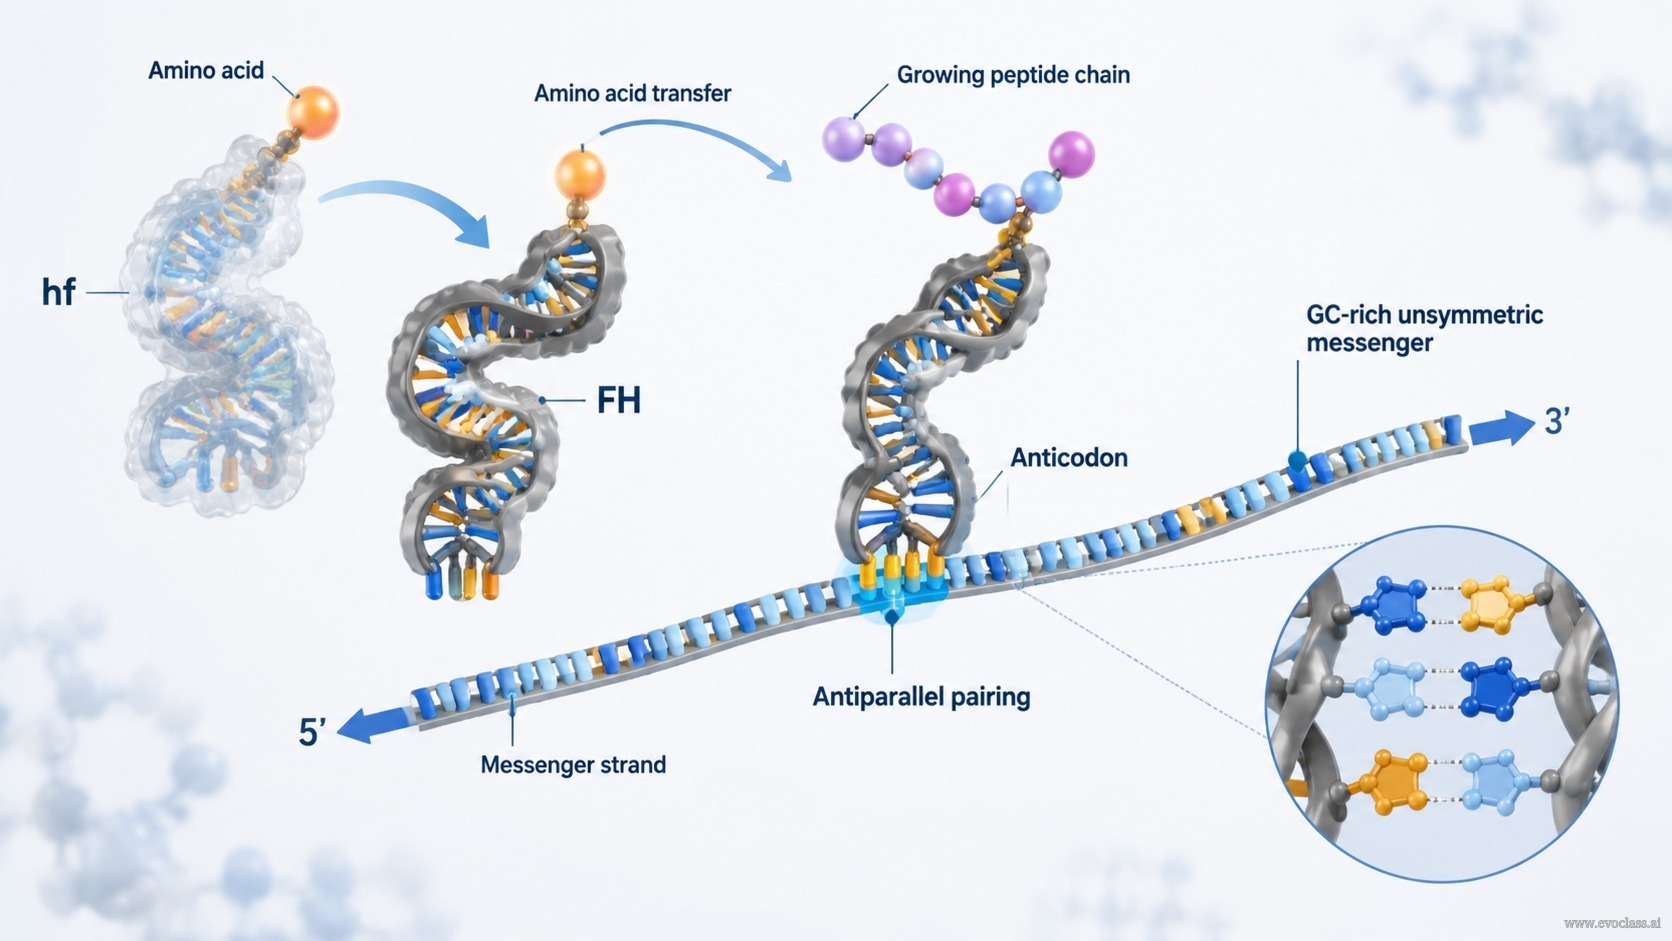
La traduzione nelle prime fasi della vita non deve necessariamente essere iniziata con un ribosoma completamente formato. Il modello propone che semplici adattatori simili al tRNA potessero leggere un messaggero tramite appaiamento complementare e antiparallelo, purché sia disponibile un supporto catalitico per la formazione del legame peptidico. La configurazione dell'adattatore dipende dal suo carico: assume la configurazione hf quando trasporta un amminoacido e la configurazione FH quando trasporta una catena peptidica. Il trasferimento dell'amminoacido alla catena peptidica in crescita fa passare l'adattatore da hf a FH (cfr. Fig. 49).
Poiché l'allineamento adattatore–messaggero è antiparallelo, un messaggio può essere letto senza un apparato di traduzione sofisticato. La scelta di pattern iniziali ricchi di GC è dettata da quattro argomenti, tra cui la stabilità dell'interazione adattatore–messaggero e la fedeltà della replicazione, entrambe a favore delle combinazioni GC come punto di partenza, e la lettura senza virgole nella traduzione che richiede un pattern GC asimmetrico. Così i pattern di messaggero senza virgole derivano da una disposizione GC asimmetrica che consente la lettura senza separatori o un macchinario traduzionale complesso.
Punti meccanicistici chiave
- Supporto catalitico è ancora necessario per le funzioni di traduzione, ma la traduzione primordiale potrebbe utilizzare semplici adattatori anziché un ribosoma completo.
- Conformazione dipendente dal carico: la configurazione del tRNA dipende dal fatto che trasporti un amminoacido o una catena peptidica. Il trasferimento fa passare hf a FH.
- Appaiamento antiparallelo: l'allineamento complementare adattatore–messaggero è antiparallelo, consentendo la lettura senza un apparato sofisticato.
- Pattern ricchi di GC e asimmetrici: la stabilità e la fedeltà della replicazione favoriscono il GC; la lettura senza virgole richiede GC asimmetrico per evitare l'ambiguità da frame sovrapposti.
Lettura adattatore–messaggeroQuesto diagramma mostra adattatori simili al tRNA nelle configurazioni hf e FH, l'appaiamento complementare antiparallelo a un messaggero asimmetrico ricco di GC e il trasferimento dell'amminoacido che fa passare hf a FH, consentendo la lettura senza virgole senza un ribosoma sofisticato.