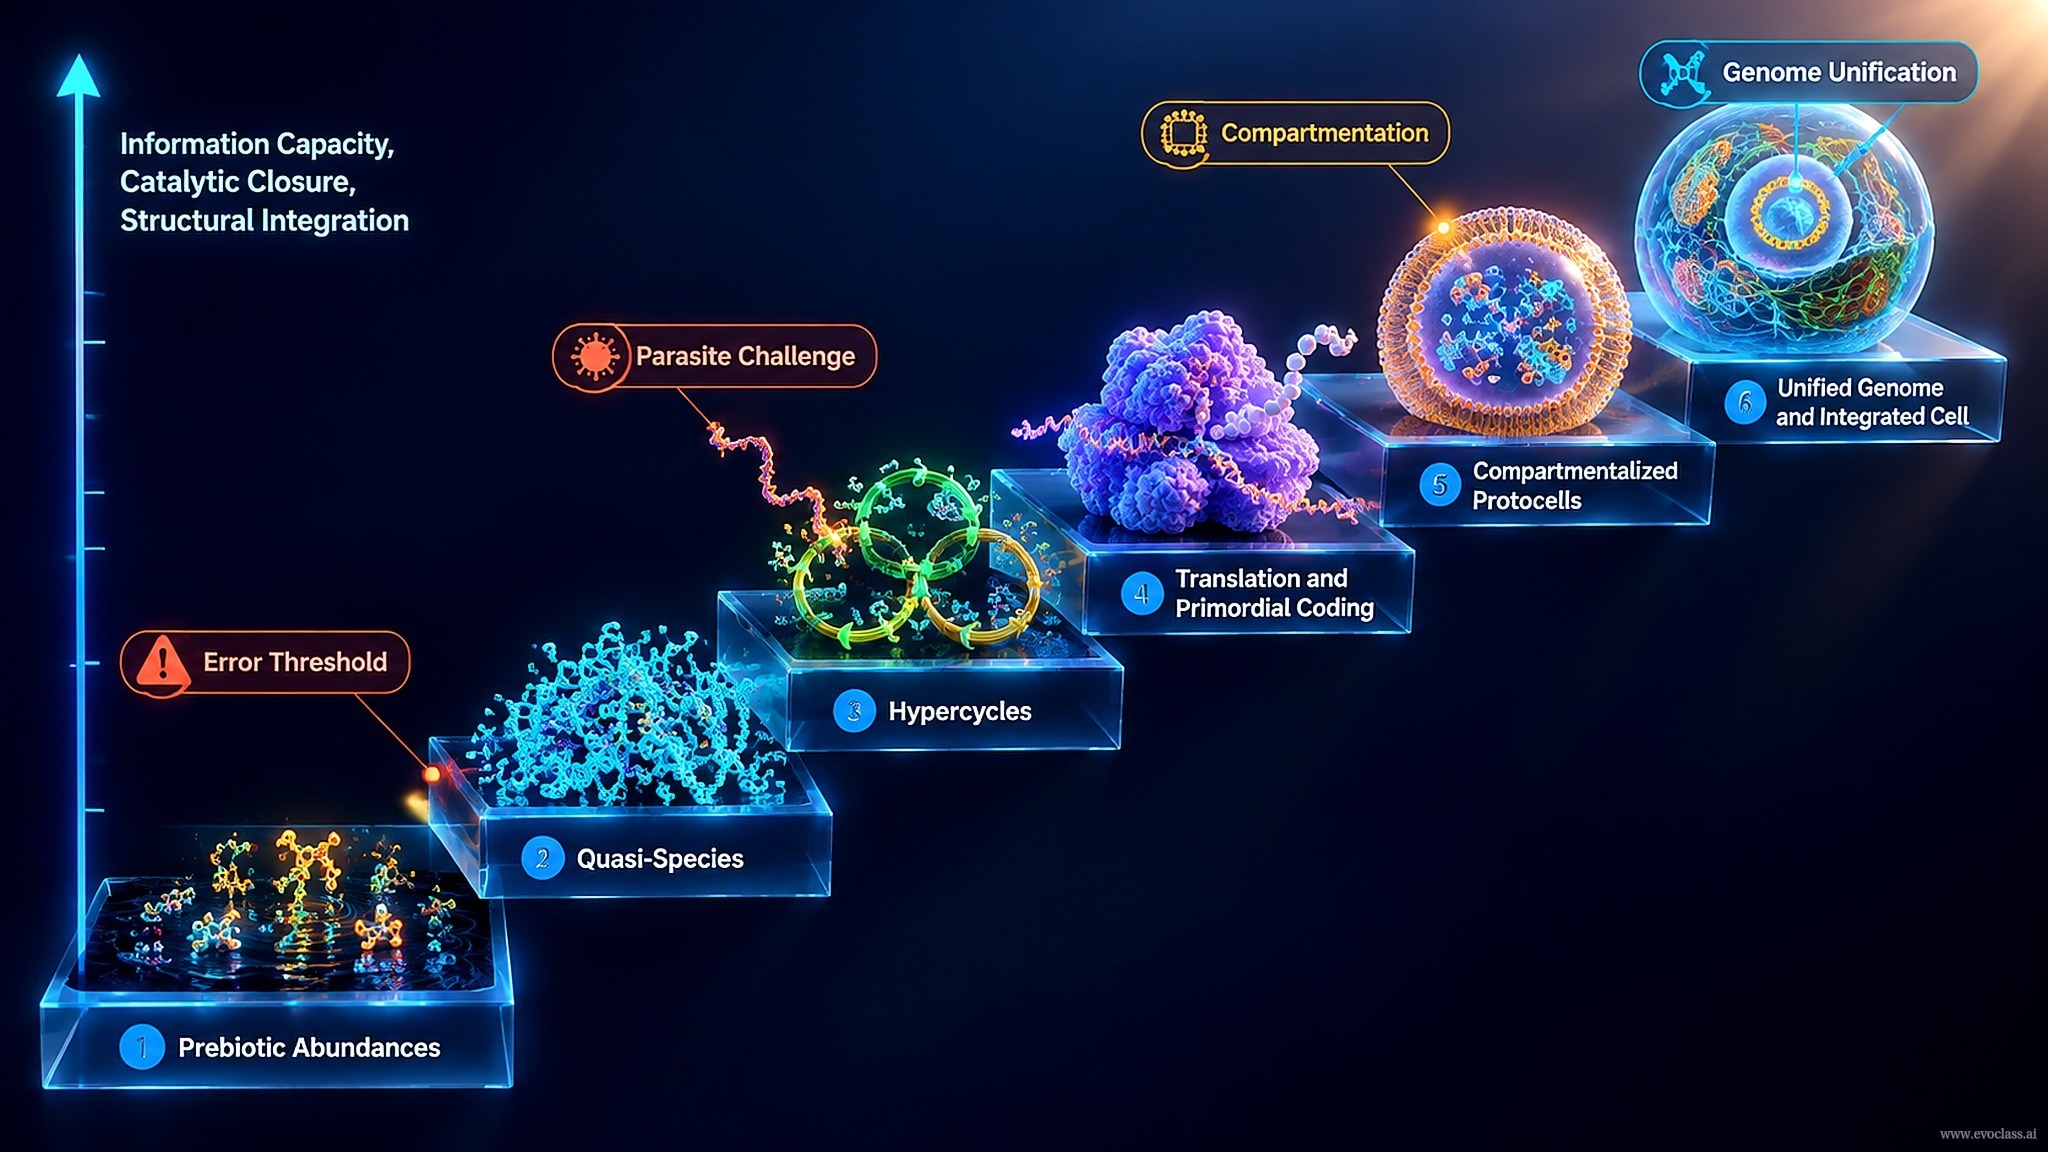
La cellula integrata non rappresenta un'origine separata della vita, ma il punto d'arrivo di un'estensione continua e per tappe dell'auto-organizzazione molecolare. Ogni tappa risolve un problema specifico di informazione, catalisi o parassitismo, mentre la selezione darwiniana continua ad agire a livello molecolare.
- Tappa 1 — Materia prima prebiotica: la sintesi prebiotica produce amminoacidi e polinucleotidi con abbondanze non casuali; i bias composizionali, come la replicazione ricca di GC, vincolano i primi replicatori.
- Tappa 2 — Quasi-specie: mutazione e selezione generano popolazioni di quasi-specie il cui contenuto informativo stabile è limitato dalla fedeltà di replicazione e dalla soglia d'errore; q̄m, σm e vm predicono la perdita o il mantenimento dell'informazione.
- Tappa 3 — Integrazione iperciclica: gli accoppiamenti catalitici, autocatalitici e iperciclici collegano i replicatori in cicli cooperativi con crescita coerente; parassiti, carico mutazionale e fallimento della nucleazione definiscono i limiti dell'organizzazione iperciclica.
- Tappa 4 — Traduzione e codifica primordiale: adattatori/messaggeri di RNA, cornici senza virgola, primi codoni GGC/GCC e trasferimento peptidico senza ribosomi estendono gli ipercicli a polipeptidi funzionali codificati.
- Tappa 5 — Compartimentazione: gli ipercicli compartimentati e le protocellule localizzano replicazione e traduzione accoppiate, reprimono lo sfruttamento parassitario e creano unità di selezione di livello superiore in condizioni al contorno realistiche.
- Tappa 6 — Unificazione del genoma: molteplici replicatori iperciclici sono consolidati in un genoma integrato; la correzione di bozze del DNA, la ricombinazione e una maggiore fedeltà spostano la soglia d'errore e permettono cellule integrate più grandi.
Principio di continuità: le transizioni non sono origini separate, ma incrementi successivi di chiusura catalitica, capacità informativa e integrazione strutturale; modalità di fallimento come la catastrofe d'errore, lo sfruttamento parassitario e il fallimento della funzione congiunta segnano confini che le tappe successive devono superare.
Sintesi formale con la teoria della selezione: l'analisi dei punti fissi e dello Jacobiano, i cicli limite, la biforcazione di Hopf e i regimi di accoppiamento descrivono quando l'integrazione è stabile e quando collassa. La mutagenesi del fago Qβ illustra le distribuzioni dei mutanti e la soglia d'errore, e il gioco dell'evoluzione delle frasi mostra come la fedeltà limiti l'informazione; in seguito la correzione di bozze del DNA e la ricombinazione allentano questo limite, contribuendo a spiegare come genomi unificati possano emergere da precedenti ipercicli RNA/proteine.
Continuità dai polinucleotidi alla cellula integrataUna scala a sei gradini dalle abbondanze prebiotiche al genoma unificato, con l'asse verticale che segna la crescita di capacità informativa, chiusura catalitica e integrazione strutturale; le annotazioni evidenziano la soglia d'errore, la sfida dei parassiti, la compartimentazione e l'unificazione del genoma.