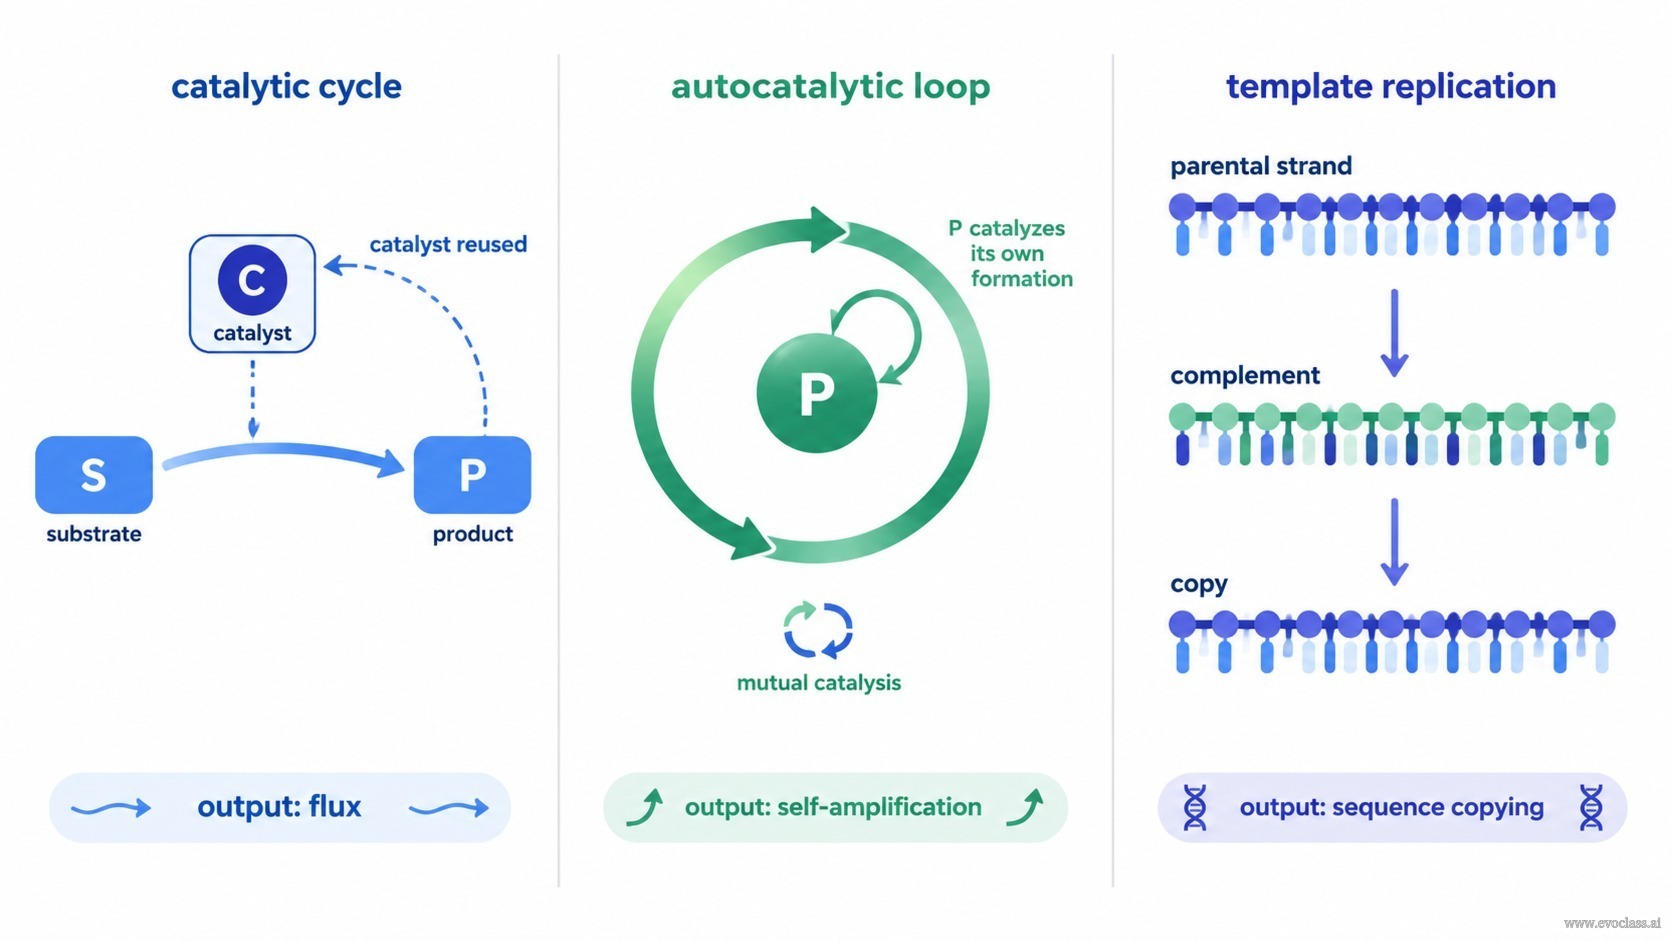
ハイパーサイクル理論は、しばしば混同されながらもまったく異なる役割を担う3つの分子様式を区別する: 単純触媒サイクル(これが生み出すのは 流束)、 自己触媒単位(これが生み出すのは 自己増幅、そして 自己複製テンプレート(これが生み出すのは 遺伝可能な配列コピーである。ハイパーサイクルはこれら3つの挙動を同時に必要とし、これらを混同すると化学的に支持できない主張が生まれる — たとえば、単に反応を加速するだけの触媒を、すでに自己を複製しているかのように扱うことである。
1. 単純触媒サイクル:自己増幅を伴わない共役流束
触媒サイクルは1つ以上の触媒を用いて基質を生成物に変換する。重要なのは、そのサイクルが 出力しない もの、すなわち触媒自身である。触媒は再利用されるが、サイクルの必須生成物として複製されるわけではないため、外部から供給されるか別のプロセスで再生されなければならない。このようなサイクルは定常状態の流束や共役反応ネットワークを容易に確立するが、本質的に自己増幅的ではない。触媒が希釈されたり分解されたりすれば、サイクルに継続的に供給されない限りその濃度は低下する。酵素のターンオーバーや、その反応によって再生されることなく基質変換を促進するリボザイムは、いずれもこの様式の例である。
2. 自己触媒単位:単位自体への正のフィードバック
自己触媒単位は自身の生成を触媒する生成物を生み出すため、その定義的特徴は単位自体の生成に対する正のフィードバックである。これにより自己増幅が生じ、前駆体が続く限り指数関数的な増殖を支えることができる。自己触媒は 直接的な場合(分子が自身の合成を触媒する)と、 集団的な場合(一連の分子が互いを相互に触媒する)がある。決定的なのは、自己触媒だけでは忠実な配列コピーは保証されないということである。単位は定められた配列を伝えることなく増幅しうるため、自己増幅は遺伝とは同義ではない。
3. 自己複製テンプレート:配列情報のコピー
自己複製テンプレートは、自身を鋳型として用いることで相補鎖の合成を指令する。直接の生成物は同一のコピーではなく相補体であるため、元の配列を再生するには通常、相補鎖が鋳型として機能する第2ラウンドが必要となる。したがって、テンプレート複製は触媒サイクルとは機構的に異なる。テンプレート指向性重合は配列情報をコピーし、触媒サイクルは基質を変換し、自己触媒ループは生成物を増幅する。テンプレート様式だけが、コピーの忠実度とエラー閾値によって長さが制限される情報を担うのである。
なぜこの区別がハイパーサイクルにとって重要なのか
これら3つの様式はハイパーサイクル的組織の構成要素である。触媒サイクルは構成要素間の機能的カップリングを提供し、自己触媒単位は増殖を提供し、テンプレートはエラー閾値を下回り続けなければならない遺伝情報を提供する。原始的な翻訳装置は単一の短い自己複製単位だけから組み立てることはできない — カップリング、増殖、情報の統合が必要であり、まさにそのためにハイパーサイクルが自然な自己組織化の単位として提唱されているのである。
境界に関する注意
実際の分子系ではこれらのカテゴリーは重複する。テンプレートが触媒活性も持つことがあり、自己触媒的集合がテンプレート指向性の段階を含むこともある。この区別は分析的なもの — ある段階がどのような寄与をなすかを割り当てるための方法 — であり、互いに排他的な自然種についての主張ではない。
触媒サイクル3つのパネルが、ハイパーサイクル理論で区別される様式を、その定義的出力によって比較している。左:単純触媒サイクルは基質Sを生成物Pに変換し、触媒Cは複製されるのではなく再利用されるため、出力は定常的な流束である。中央:生成物Pが自身の生成を触媒する自己触媒ループで、出力は単位自体の増加(自己増幅)であり、直接的自己触媒でも集団的相互触媒でも同様である。右:親鎖が相補鎖の合成を指令し、その相補体が次に元の配列のコピーの合成を指令するため、出力はコピーされた配列情報である。