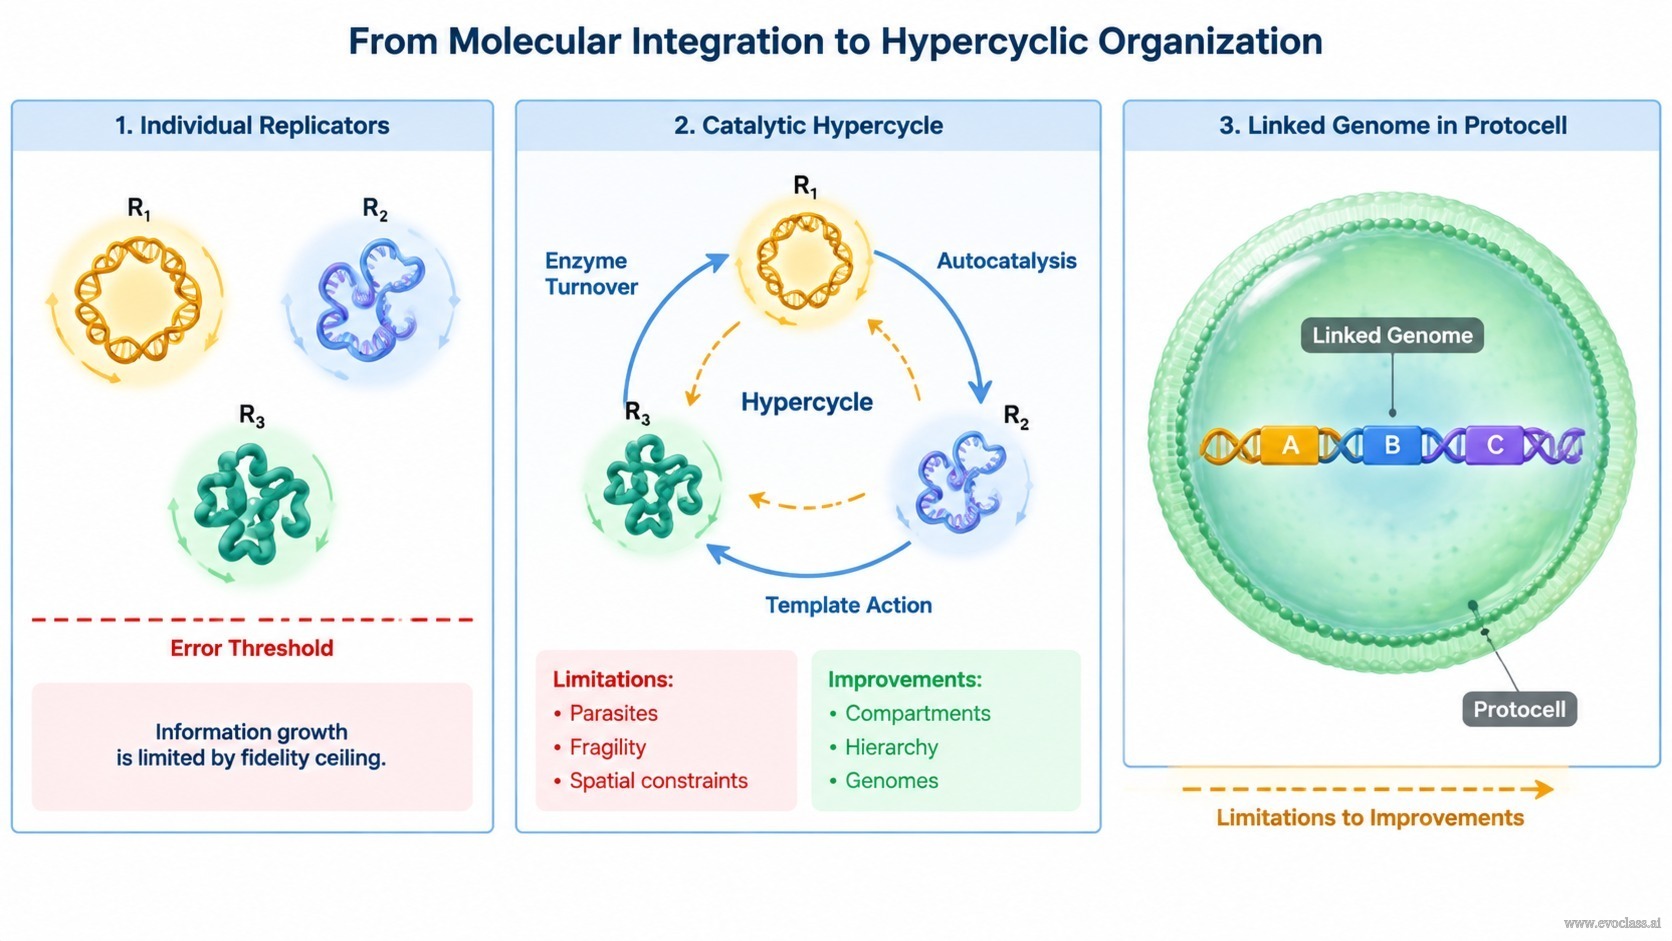
このスライドは、初期分子進化における決定的な転換点を捉えています。すなわち、ひとつの自己複製単位がもはや十分な情報を担えなくなったとき、選択は次を有利に働かせうるということです。 複数の自己複製実体の統合。その理由は エラー閾値にあります。複製子のコピー忠実度は、変異による劣化に抗して維持できる配列長の上限を定めます。その限界を超えると、単一の単位により多くの情報を担わせることは自滅的となります。ほとんどのコピーが誤りを含み、マスター配列が失われてしまうからです。
超循環的組織化 は、複数の自己複製単位を閉じた協調的触媒ネットワークへと連結することで、この制約を解決します。このネットワークでは、各単位が触媒サイクル、自己触媒、鋳型作用、酵素回転を通じて他者の複製を支えます。個々の分子ではなく、その集合体が 選択の単位となります。したがって機能的統合は、最初から遺伝子が物理的に連結されていることを必要としません。必要なのは、それらの触媒産物がネットワーク構成員の複製にフィードバックされることだけです。
なぜ機能的連結が先行するのか
ゲノムが連結構造として存在する以前から、選択は触媒的に協調する複製子の集合に作用しえます。超循環は独立した競争者を協調的ネットワークへと変え、いかなる単独の構成員よりも多くの集合的情報を維持できるようにします。これはまた、初期の翻訳関連機能への道筋をもたらすかもしれません。複数のRNA様単位が、いずれかひとつの単位がその忠実度限界を超えることなく、異なる触媒的あるいはコード化的役割を担えるからです。
機能的統合から構造的統合へ
ゲノムが進化するにつれ、機能的連結は遺伝子の完全な構造的統合に置き換わりえます。知られている最も原始的な細胞でさえ、そのゲノムは構造的単位です。構造的連結は協調的集合を単一の遺伝可能な実体とし、拡散性の触媒的連結への依存を減らし、協調する遺伝子が失われたり別個に搾取されたりするのを防ぎえます。
変異体スペクトルの論拠
中心的な問いは、なぜひとつの着実に成長するゲノムではなく、多くの単一変異遺伝子の超循環的組織化を用いるのかという点です。100個の遺伝子からなる集合の場合、k個のエラーをもつ変異体の数は次のとおりです。
限界と改善
超循環的組織化は最終解ではありません。間接的であり、動的に脆弱で、寄生性あるいは利己的な複製子に対して脆弱であり、空間的あるいは区画的な制約に依存しやすいものです。改善策には区画化、階層的超循環、そして最終的な構造的ゲノム形成が含まれます。これらの変化は協調を安定化させ、拡散性の触媒的連結への依存を減らします。
要点: 超循環は自然の自己組織化における中間的原理です。触媒的協調を通じて自己複製単位を結びつけ、集合体がいかなる単一の複製子の限界をも超えて情報を維持できるようにし、構造的に統合されたゲノムへの道を準備します。
分子統合から超循環的組織化へ段階1は、忠実度の上限に制約された個々の自己複製単位を示しています。段階2は、触媒サイクル、自己触媒、鋳型作用、酵素回転が閉じた超循環ネットワークを形成する様子を示しています。段階3は、プロトセルにおいて機能的連結が構造的に連結されたゲノムに置き換わる様子を示しており、琥珀色の破線矢印が限界と安定化の改善を示しています。