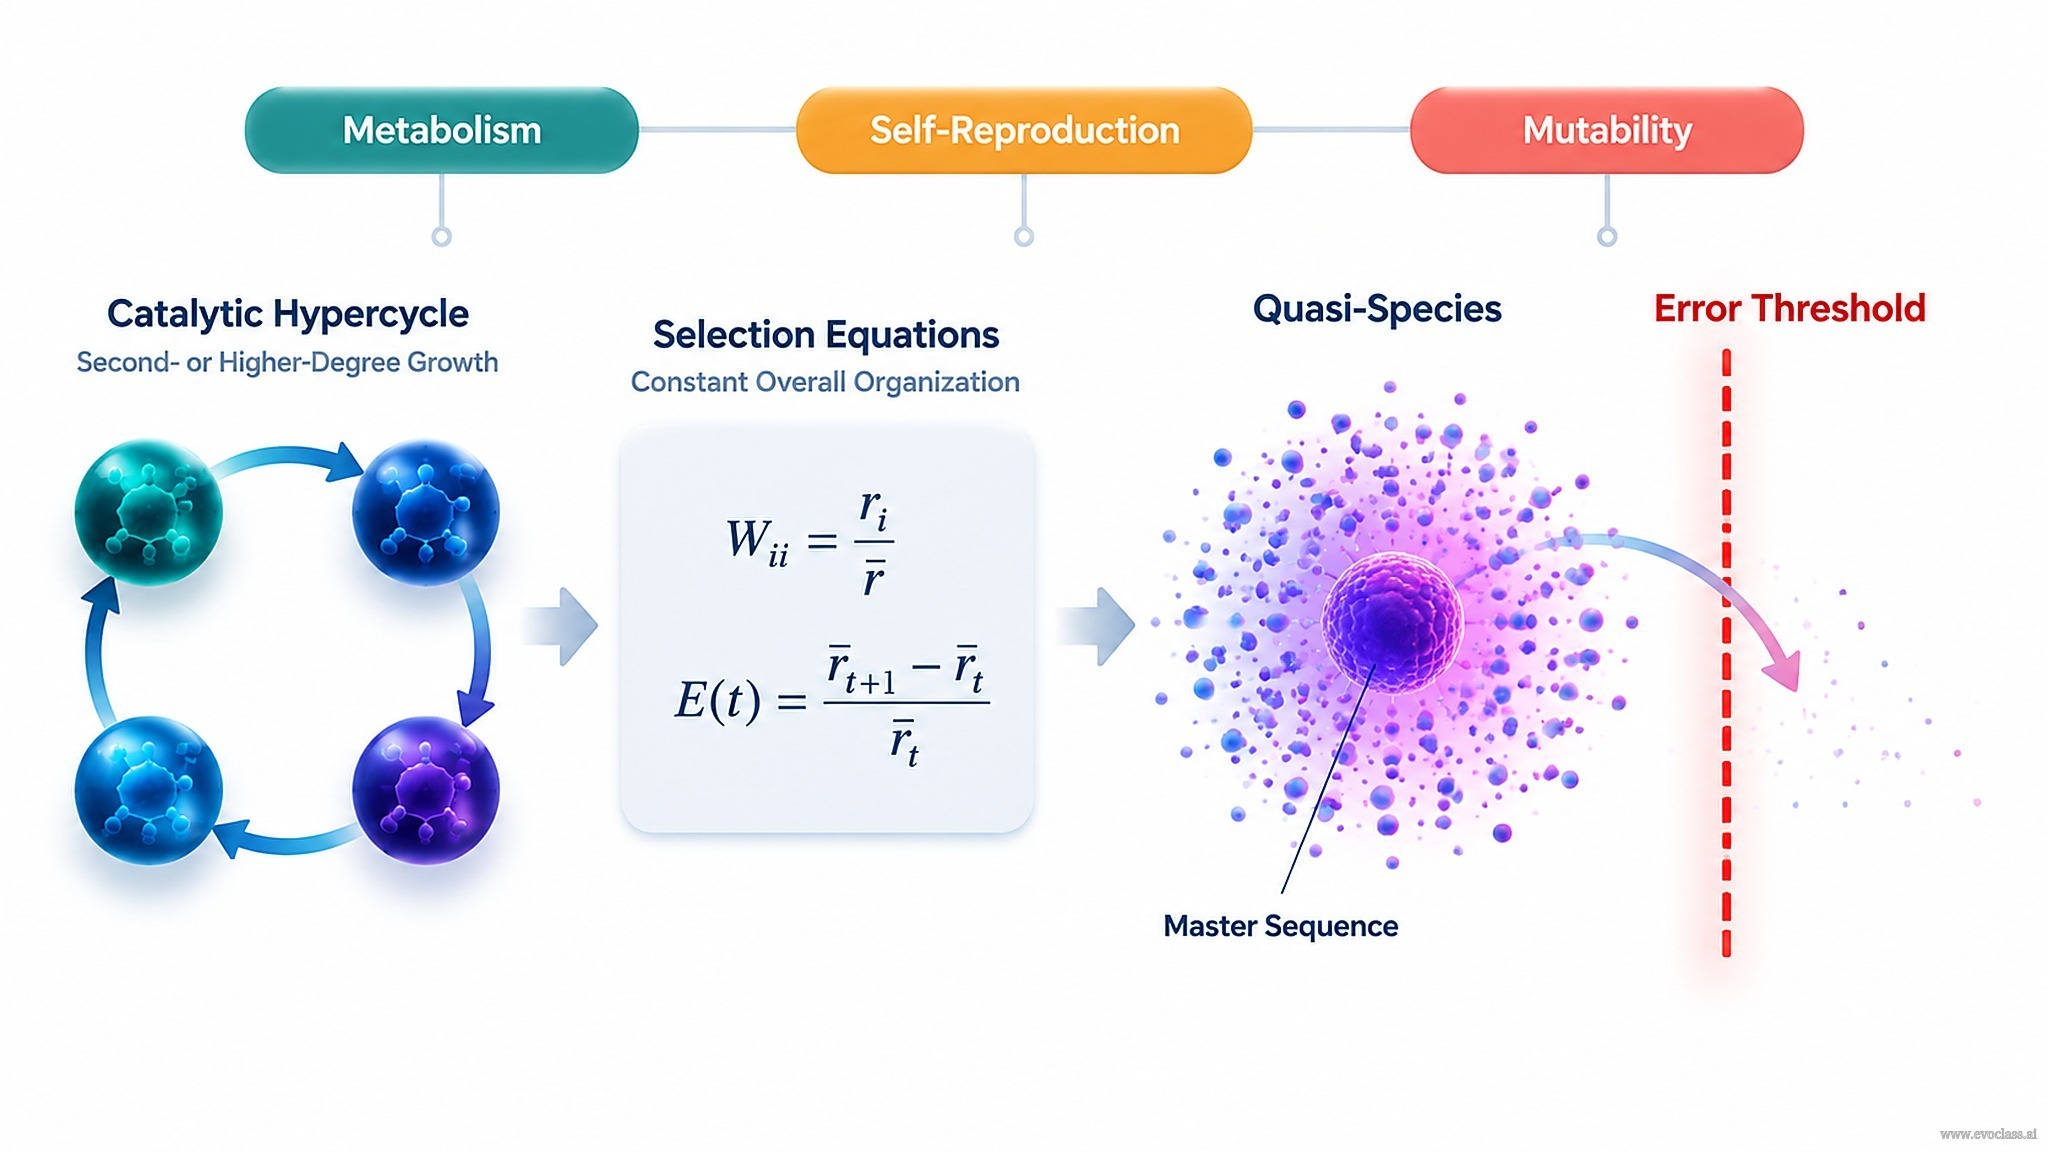
このレッスンは、生命起源論の核心となる問いから始まります。自己複製する分子の集合は、どのようにして 分子選択 を、既存の細胞機構なしに生み出すことができるのでしょうか。ここで展開される答えは 触媒的ハイパーサイクルです。これは自己複製単位の環状結合であり、各単位の複製はサイクルの別の構成要素によって触媒的に支えられます。その結果として生じるのは、独立した複製子の集まりではなく、集合的な自己組織化です。
3つの成長組織
- 単純触媒的成長: 外部の触媒が鋳型の複製を促進しますが、その触媒自体は同じループによって生産されません。成長則は自己増幅的ではありません。
- 自己触媒的成長: 分子が自身または同種の複製を触媒します。成長速度には複製子濃度の1乗に比例する項が含まれます。これが一次の自己増幅です。
- ハイパーサイクル的成長: 複製は A → B → C → ... → A という閉じたサイクルとして組織されます。各構成要素は別の構成要素の触媒作用のもとで生産されるため、全体の成長は少なくとも2つの濃度の積に依存します。これが、触媒的ハイパーサイクルが 二次以上の次数の系である理由です。
この区別が重要なのは、ハイパーサイクル的組織だけが、自己複製を集合的で非線形な動力学に結びつけ、分子レベルでの選択を支えうるからです。
ダーウィン的進化の前提条件
分子選択が起こるためには、3つの条件が満たされなければなりません。
- 代謝: 組織化された状態を平衡から離れて維持するための自由エネルギーと物質の供給源。
- 自己増殖: 有利な変異体が数を増やせるよう、単位が増殖する能力。
- 変異可能性: 遺伝可能な変異。これがなければ選択の基質が存在しません。
これら3つの前提条件は境界条件です。それ自体が定量的な動力学を特定するものではありませんが、ダーウィン的記述が意味を持つ領域を定義します。
全体的組織が一定の下での選択方程式
複製子の総濃度が一定に保たれるとき、頻度
ここで Wii は 選択値 であり、複製子タイプ i の複製速度と分解速度を含みます。 E(t) は 平均過剰生産性であり、選択値の個体群重み付き平均です。あるタイプの W_ii が E(t) を上回ると頻度が増加し、E(t) を下回ると減少します。組織一定の条件により、選択は絶対的な成長競争ではなく相対的な比較となります。
変異と選択の平衡および準種
実際の複製には誤りが伴います。変異と選択の平衡は、単一の支配的な野生型配列をもたらすのではなく、 準種を生み出します。これはマスター配列を中心とした組織化された変異配列の分布です。したがって野生型は、関連配列のクラウドの中で最も確率の高い構成要素であり、選択の唯一の標的ではありません。この分布は、マスター配列の選択的優位性が、そこから離れる変異の流れと釣り合うときに安定します。
誤り閾値
準種が持続できるのは、複製あたりの変異率が十分に低い場合だけです。 誤り閾値を超えると、マスター配列は情報を確実に伝達できなくなり、変異体クラウドは非局在化し、組織化された分布は変異的に無作為化された状態へと崩壊します。このことは、ハイパーサイクルや準種が再現可能に維持できる情報量を制限します。冒頭のロードマップ—触媒サイクル → 選択方程式 → 準種 → 誤り閾値—は、こうして分子の自己組織化を、分子レベルでのダーウィン進化の根本的な情報上限へと結びつけます。
触媒的ハイパーサイクル ロードマップ閉じた触媒的ハイパーサイクルは、選択値 Wᵢᵢ と平均過剰生産性 E(t) を伴う選択方程式へ、次いで準種クラウドと誤り閾値の障壁へとつながります。ダーウィン的進化の3つの前提条件—代謝、自己増殖、変異可能性—が、分子の自己組織化から分子選択への移行を枠づけます。