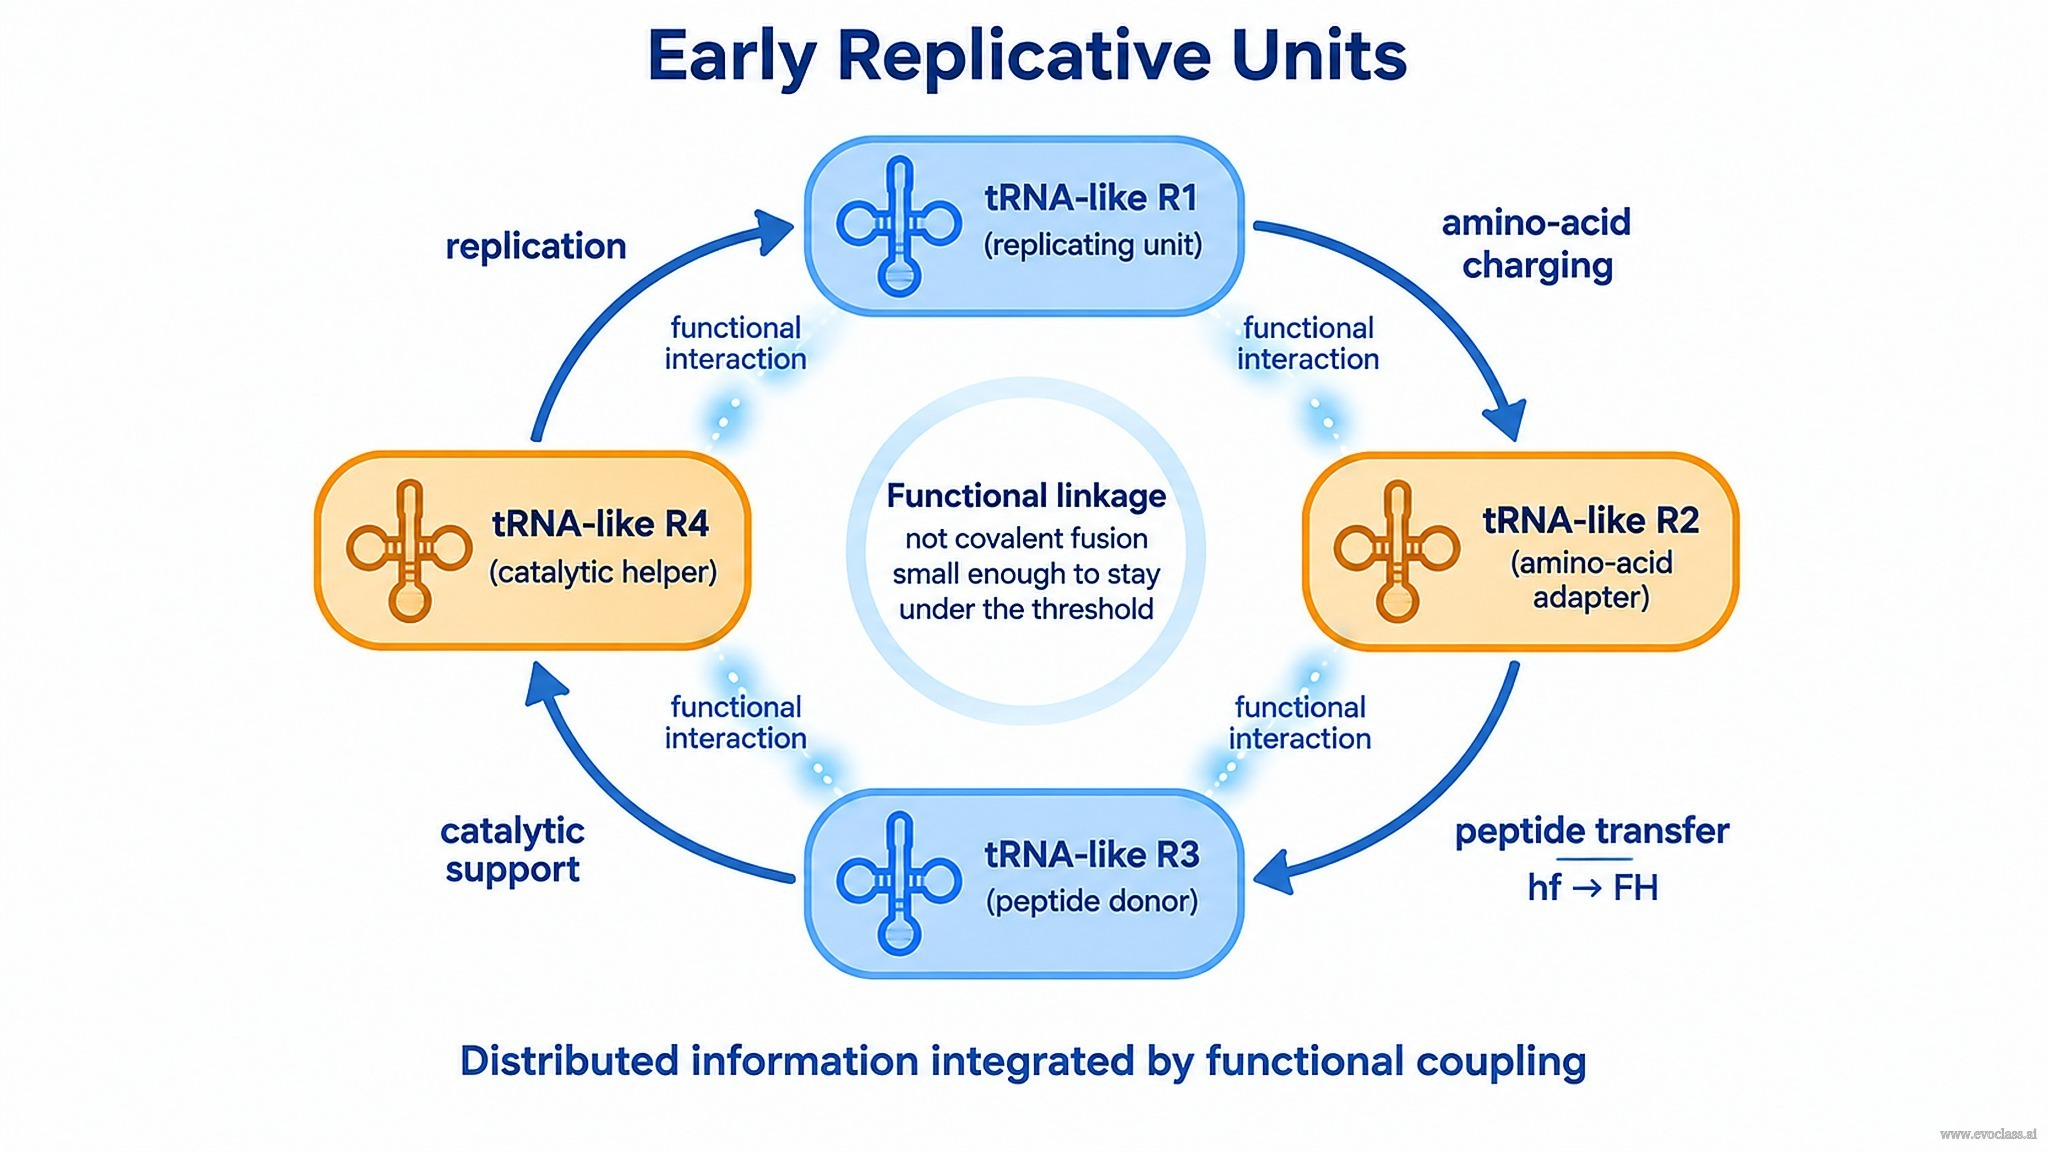
初期の複製単位 は厳しい物理的制約に直面していました。複製は決して完全ではなく、 誤り閾値 は、複製子が保持できる情報量をその複製精度と結びつけます。配列が長いほど、各ラウンドで誤複製にさらされる位置が増え、符号化されたメッセージはより速く損なわれます。したがって、初期の複製子は 実用的な忠実度で複製できるほど小さく ありながら、 意味のある機能を担えるほど構造化されている 必要がありました。両方の要件を同時に満たす分子は驚くほど控えめな大きさで、tRNA程度、すなわちおよそ70~90ヌクレオチドです。
サイズと忠実度のトレードオフ
意味のある配列を維持する条件は q̄m ·
なぜtRNA様分子がこの窓に適合するのか
tRNA様RNAは小さいながらも、形のないものではありません。再現性をもってコンパクトなクローバーリーフ構造に折りたたまれ、さらに安定したL字型構造へと凝縮し、その3′末端にアミノ酸を付加することができます。折りたたみ構造の再現性が決定的な特性です。同じ配列は常に同じ形をもたらすため、一つの分子が同時に鋳型と機能的对象となりえます。小さなサイズは誤り閾値を下回らせ、安定した折りたたみ構造は化学反応——認識、結合、アミノ酸の処理、触媒的支援——を可能にします。
連結なしの統合
全体の情報をいくつかの小さな複製子に分割することは、サイズの問題を解決しますが、新たな問題を生み出します。独立した複製子の集合は競争者の集合であり、最も短いか最も速いものが勝ちます。このスライドの重要な主張は、統合には分子を一つの大きなゲノムに結合する必要はないということです。統合は 機能的でありえます。各分子の産物——RNA、アミノ酸、ペプチド、触媒的表面——が別の分子の資源となるのです。それらの依存関係が環状に閉じると、集合体は一つの協調的单位として振る舞い、この環状の相互支援が超循環的組織の最も単純な実現です。分散した情報を無傷に保つのは、共有結合による融合ではなく、機能的共役なのです。
原始的なペプチド化学のアダプターとしてのtRNA様分子
同じ分子がペプチド合成への橋渡しを提供します。tRNA様RNAはアダプターまたはメッセンジャーとして機能できます。すなわち、特定のアミノ酸を運び、高度な装置なしにそのアミノ酸を成長中のペプチド鎖へと受け渡すことができます。扱う必要があるのはごく限られた数の十分に一般的なアミノ酸のみであり、特異性はRNA自身の配列に存在しうるため、別の理由ですでに存在していた複製子を用いて、原始的な翻訳様化学が想定可能になります。
hf → FH 配置スイッチ
あるtRNAが hf 配置にあるか FH 配置にあるかは、何が結合しているか——アミノ酸かペプチド鎖か——に依存します。アミノ酸をペプチド鎖に転移すると、分子はhfからFHへと反転します。このモデルは、高度な翻訳装置がなくてもメッセージがどのように読み取れるかをよく説明します。tRNA自身の状態が転移ステップが起こったかどうかを記録し、単純な化学平衡ではもたらされない方向性をプロセスに与えるのです。
要点: 小さな分子、安定した折りたたみ構造、そして環状の機能的共役——大きなゲノムではなく——が、初期の情報を誤り閾値のもとで生き残らせるのです。
初期の複製単位4つのtRNA様RNA複製子が環状に配置され、機能的相互作用のみによって結ばれています——アミノ酸の付加、ペプチド転移(その間にキャリアはhfからFH配置へと反転します)、触媒的支援、そして複製です。依存関係が自己に閉じるため、この集合体は一つの統合された単位として振る舞い、分散した情報は単一の大きなゲノムに連結されることなく生き残るのです。