8
超循環組織の限界と寄生体のダイナミクス
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00

超循環組織は複数の触媒単位を単一の自己複製ネットワークに統合できるが、その統合には限界がある。 質量作用・一定組織のダイナミクスの下では、超循環は同時に二つの異なる圧力に直面する。 自己増殖性の寄生体 は触媒作用を享受しても見返りを与えず、また 組合せ的変異体負荷 はゲノムが長くなるにつれて急速に膨らむ。これらが相まって、超循環組織の中心的な限界を画す。

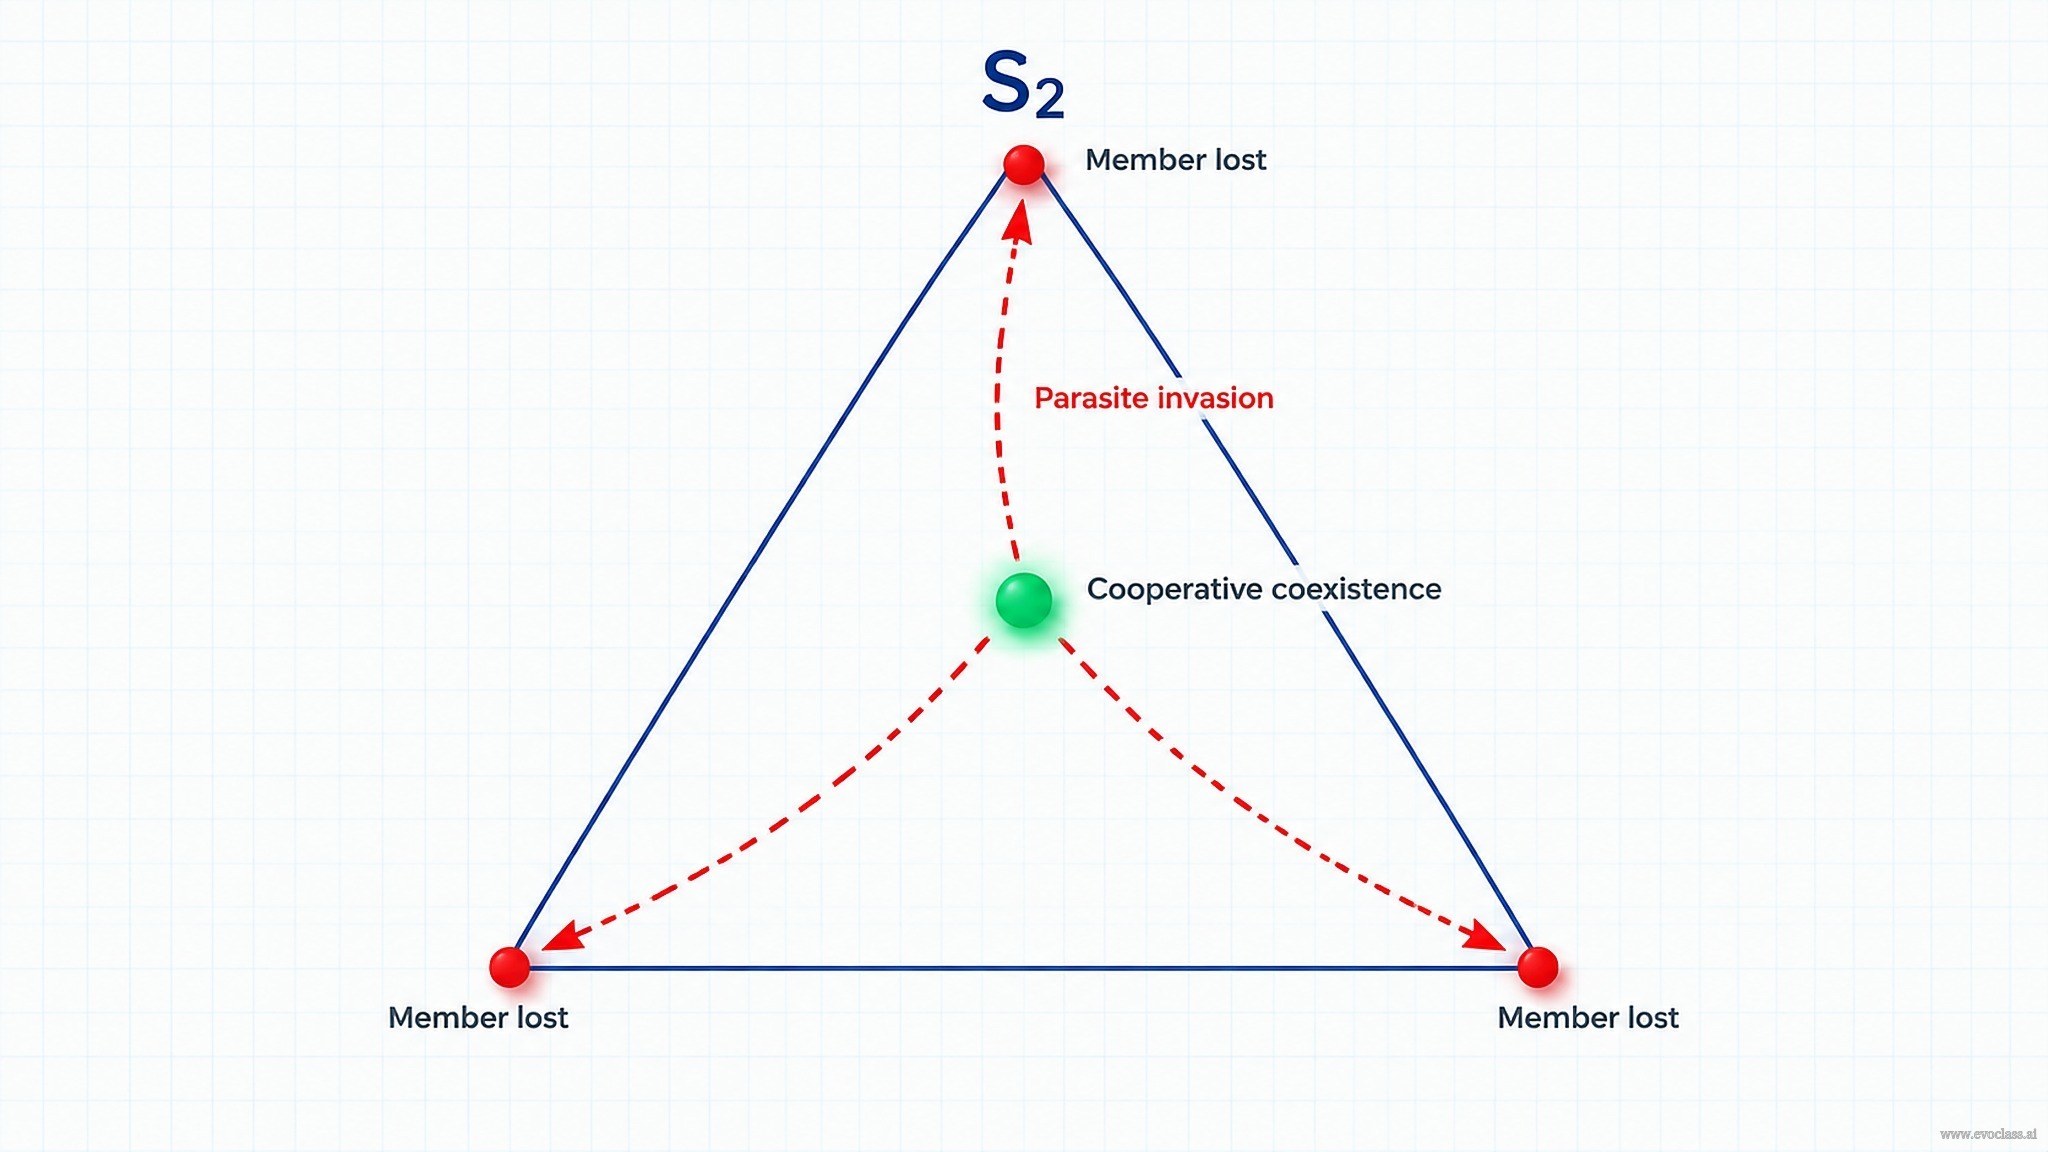
濃度単体 S2:内部共存 対 頂点崩壊寄生体の侵入は協調的内部状態を外側の境界へと押しやる頂点固定点寄生体が支配する頂点サイクル構成員の頂点内部:協調状態凡例内部:全構成員が共存頂点:構成員が失われる寄生体による外側へのドリフト侵入閾値ẋ > 0 ここで c0 < k / kA寄生体は封じ込められるẋ < 0 ここで c0 > k / kA構成員が失われる — 寄生体が侵入

濃度単体上の寄生体

寄生体 と超循環の構成員 x が全濃度 を共有する二成分系を考える。寄生体は自己触媒的に増殖し(速度定数 )、サイクルが供給する触媒作用によって維持される一方、構成員 x は結合 を通じて複製される。一定組織のダイナミクス(T.13.8)は次のとおりである。

ẋ の符号は閾値 において二つの領域を分ける。 のとき構成員は増殖し 、寄生体は封じ込められる。 のとき構成員は減衰し 、寄生体が侵入する。これが、自己増殖性の寄生体がなぜ超循環を不安定化しうるかを定量的に述べたものである。

頂点状態と内部状態

超循環は 濃度単体の頂点に固定点を許容し、各頂点は一つの成分の喪失に対応する。また 内部状態 は全構成員の協調的共存を表す。内部は生産的だが脆弱であり、寄生体の侵入によって軌道が外側の境界へと押しやられ、そこで構成員が永久に失われうる領域である。

ゲノムの成長は組合せ的に高コスト

ゲノムを長くすると変異負荷は急激に増大する。長さ 100 の配列では = (100 choose k) 個の k 重変異体が存在する。1 重変異体 100 個、2 重変異体 4,950 個、3 重変異体 161,700 個などである。n ≪ のとき、これらの組合せ数は ( choose n) ≈ ⁿ / n! で増大する。これが、単一の変異遺伝子を超循環的に組織化するよりも、一つのゲノムが着実に成長する方が不利になる理由である。協調によって触媒機能が分散されるため、単一の長い配列が変異負荷のすべてを負担する必要がなくなる。

なぜ構造が重要か
これらの限界は、十分に混合された一定組織の選択という仮定の下で導かれる。追加の空間構造や区画構造がなければ、より大きな超循環は寄生体圧力と変異圧力の着実な増大に直面し、内部の協調状態を無期限に維持することはできない。