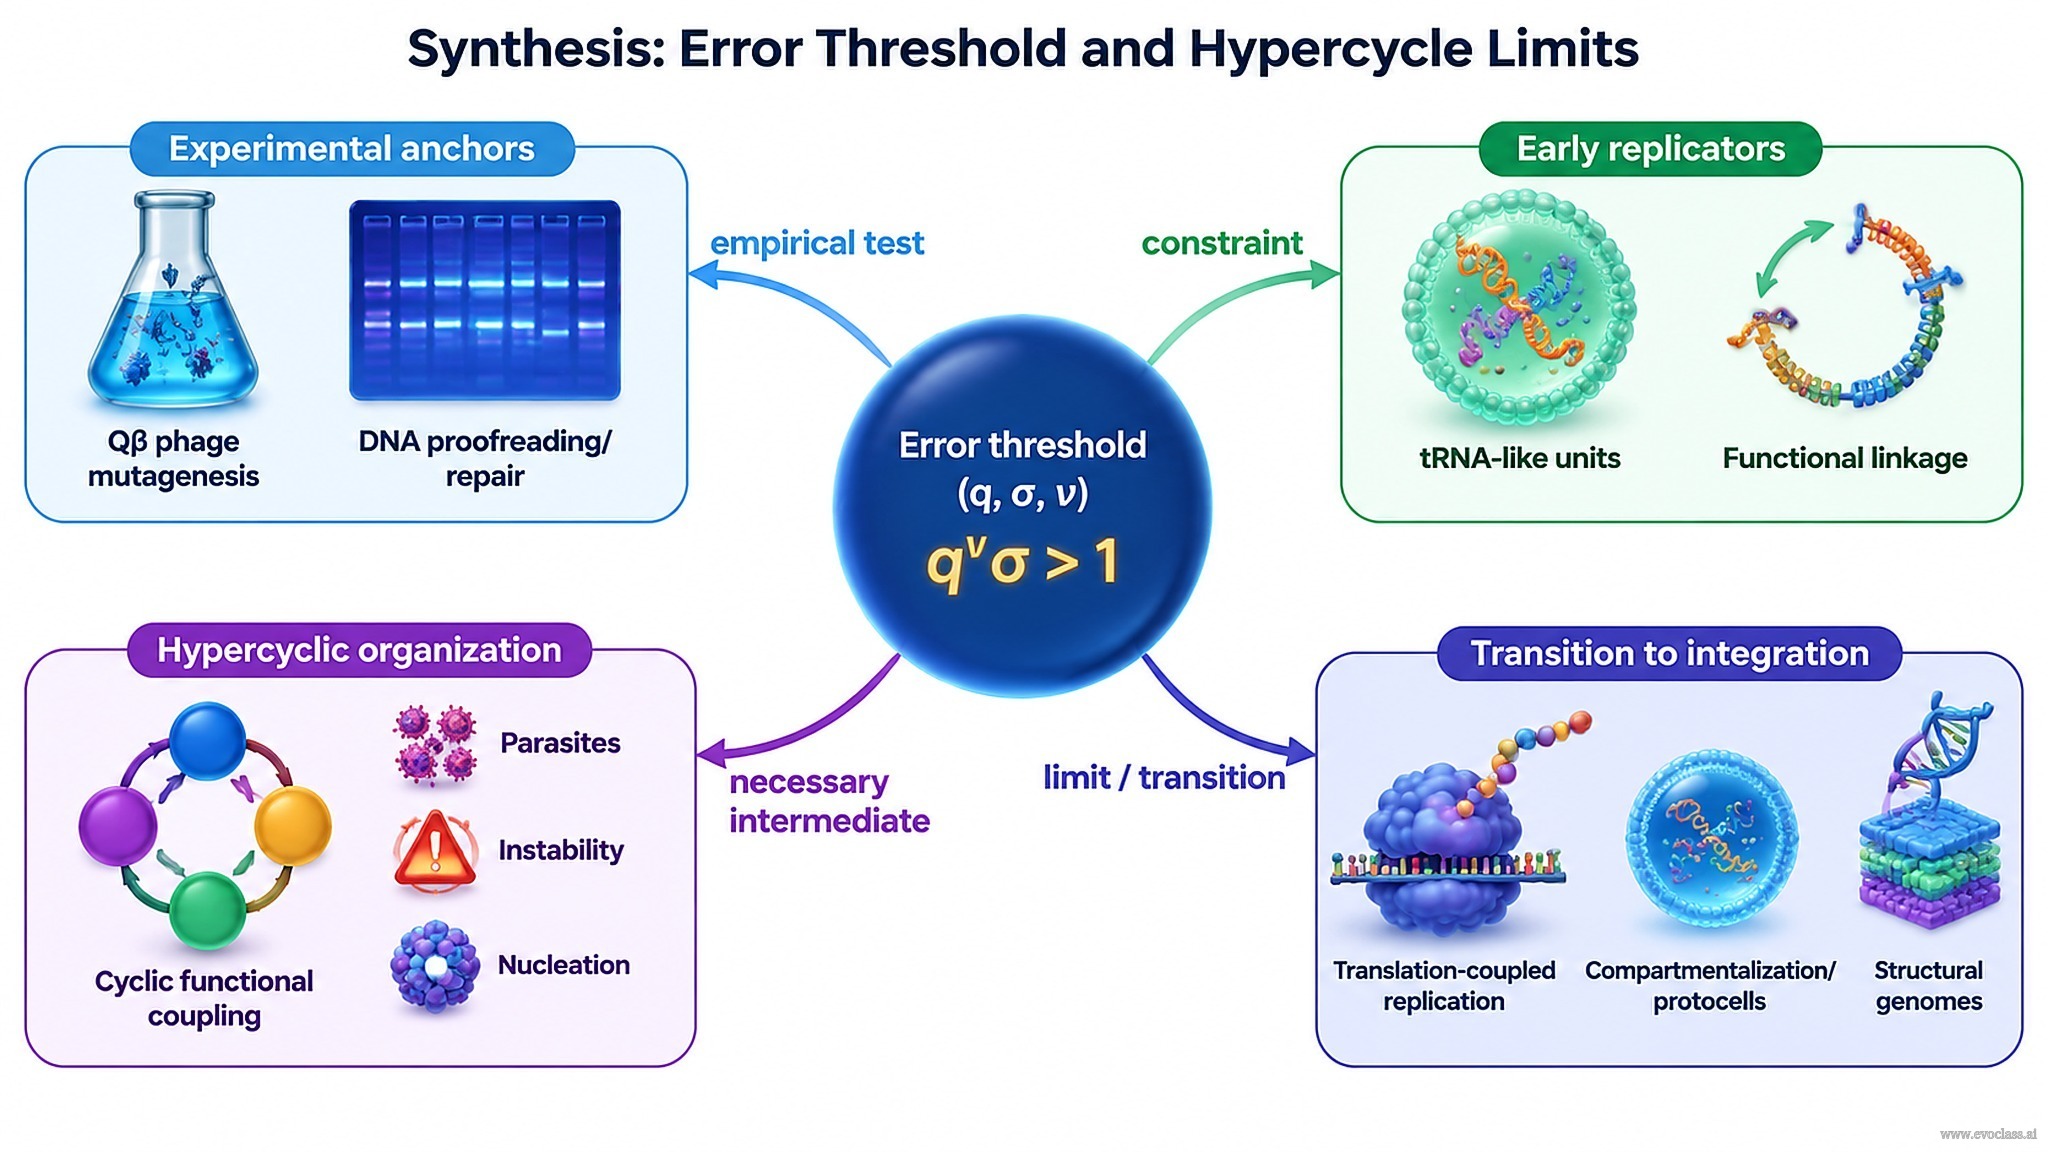
誤り閾値 は、所与の複製忠実度と選択的優位のもとで原始的な複製子が維持できる安定情報量の上限を定める。配列長 ν と選択的優位 σ に対して、安定な維持には次が必要である:
文進化ゲーム
文進化ゲームは同じ制約を3つの変数で定式化する: q̄m (複製精度)、 σm (選択的優位)、および vm (配列長)。これらを合わせることで、意味のある配列が維持されるか失われるかを予測できる。q̄m や σm を改善せずに vm を増加させると、系は誤り閾値を超えてしまうため、安定な情報は忠実度・選択・長さが同時に釣り合っている場合にのみ存続する。
実験的支柱:QβファージとDNA校正
Qβファージの変異誘発実験は実証的支柱を与える。変異負荷が増すにつれ変異体分布が広がり、野生型の優位が侵食され、誤り閾値への接近が示される。対照的に、DNAの校正と修復は実効突然変異率 μ を低下させ、境界を移動させてより大きな安定ゲノムを可能にする。したがってRNA複製子は誤り閾値に近づく傾向があり、校正を行う生物はより多くの情報を維持できる。
初期複製子と機能的連結
初期の複製単位は短鎖でtRNA様のままであった可能性が高い。その忠実度は符号化能力と触媒能力の双方を制約したため、大きなゲノムを担うことはできなかった。共有結合による連結ではなく、機能的あるいは触媒的連結によって結びつけられていた。すなわち各複製子が他者の複製や活性を支え、単一の統合染色体ではなく協調的ネットワークを形成していた。
ハイパーサイクル組織:必要な中間段階
ハイパーサイクル組織は複製子を環状に連結し、集団的選択、より多くの機能の統合、そして翻訳への道筋を可能にする。したがって低忠実度下では必要不可欠な中間段階である。しかしハイパーサイクルには限界がある:寄生体や利己的変異体による搾取に脆弱であり、空間的あるいは区画的な構造に依存し、安定性と核形成の問題を抱え、振動的あるいはリミットサイクル的な動態を示すことがあり、すべての遺伝子を構造的に統合することはできない。
ハイパーサイクルを超えて:翻訳、区画、構造的ゲノム
ハイパーサイクルを超える改善には、翻訳共役型複製、区画化あるいはプロトセル、そして統合ゲノムへの構造的統合が含まれる。これらの変化により遺伝は統合単位全体と一致するようになり、選択は緩やかに連結された複製子ではなく遺伝子全体に作用できるようになる。
誤り閾値の概念マップこの概念マップは誤り閾値の条件を中心に据えている。そこから、Qβファージの変異誘発やDNA校正といった実験的支柱、機能的連関をもつ初期のtRNA様複製子、寄生体と不安定性の限界を抱えるハイパーサイクル組織、そして翻訳・区画化・構造的ゲノムへの移行へと枝分かれする。矢印のラベルは「実証的検証」「制約」「必要な中間段階」「限界/移行」を示す。