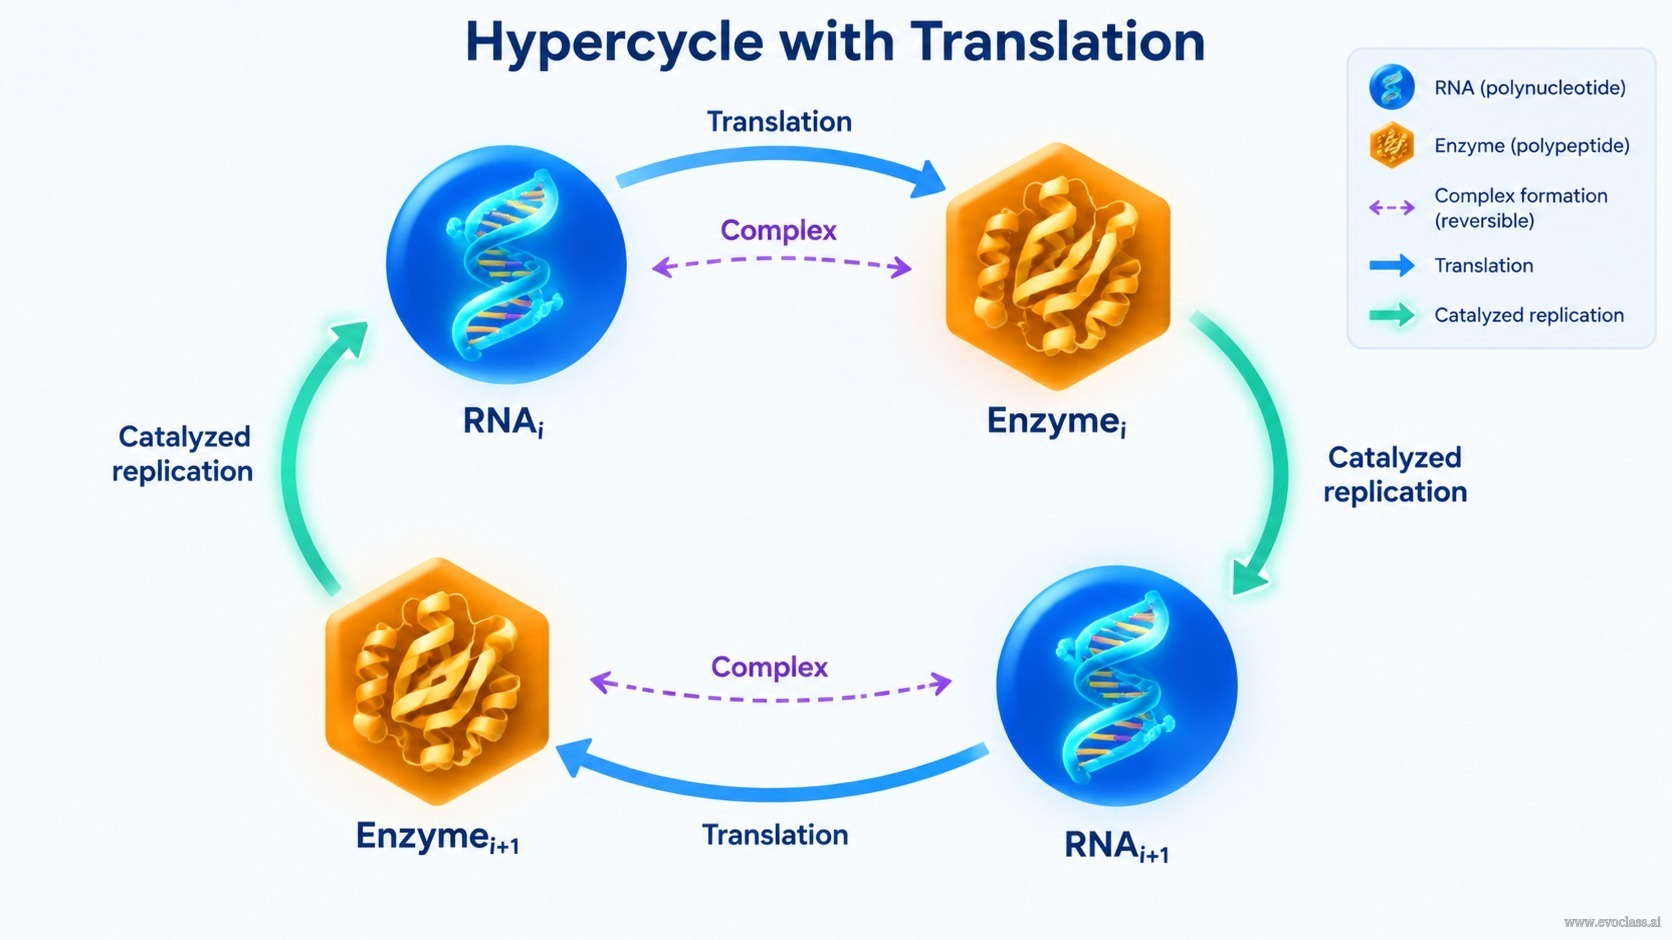
翻訳共役ハイパーサイクル は、すべてのポリヌクレオチドを 複製鋳型 と 翻訳鋳型の両方として機能させることで、基本ハイパーサイクルを拡張したものである。同一のRNA分子がレプリカーゼによって複製され、リボソームによって読み取られるため、複製と翻訳は 競合する 、鋳型を巡って。
分子的・速度論的構造
- 二重鋳型の役割。 メンバー i において、RNAi は複製されてより多くのRNAを産生しi 、翻訳されてポリペプチドを産生する
。2つの過程は同じ遊離RNAプールを利用するi。 - サイクルの閉鎖。 メンバー i から翻訳されたポリペプチドは、通常 i+1 である別のメンバーの複製を触媒する。この組織は純粋な自己触媒ではなくハイパーサイクル的である。なぜなら
は自身の鋳型RNAを触媒しないためであるi。 - 共役する化学種。 速度論的状態には、遊離ポリヌクレオチド、遊離ポリペプチド、およびポリヌクレオチド–ポリペプチド複合体が明示的に含まれる。複合体は触媒活性型または複製活性型であり得る。例えばRNAi+1·
。 - 速度論的構造。 鋳型依存的な複製と翻訳は、触媒フィードバックと相互に連結している。ポリペプチドの情報は、それをコードするポリヌクレオチド鋳型を通じてのみ維持され、ポリペプチド自体は独立して複製されない。
- システムレベルの帰結。 翻訳共役ハイパーサイクルは、複製サイクルに翻訳と複合体形成のステップを追加するため、単純な触媒ハイパーサイクルに還元することはできない。これらの追加ステップは、後の濃度限界と安定性の解析の基盤となる。
基本的な速度論的ステップ
サイクルメンバー i について、簡潔なスキームは次のとおりである:
- 翻訳:RNAi → RNAi +
。 - 複合体形成:
+ RNAi+1 ⇌ (RNAi+1· )。 - 触媒複製:(RNAi+1·
) → 2 RNAi+1 + 、または + RNAi+1 → 2 RNAi+1 + (複合体が明示的に示されていない場合)。
RNAの複製はi はEによって触媒されるi−1。i について繰り返すことで、翻訳共役ハイパーサイクルが閉じる。複製と翻訳は同じRNA鋳型を共有するため、それらの相対速度が、複製に使われるRNAの量と触媒として利用可能なポリペプチドの量を決定する。この共役が、基本ハイパーサイクルとの決定的な構造的違いである。
学習目標
ポリヌクレオチド–ポリペプチドの共役と複合体形成を含む、翻訳を伴うハイパーサイクルの構造と速度論的仮定を説明する。
翻訳共役ハイパーサイクル交互に配置されたRNAとポリペプチドのノードは、RNA_i が
翻訳共役ハイパーサイクル
交互に配置されたRNAとポリペプチドのノードは、RNA_i が